


Kirjanduse põhjal tümosiini beeta-fragment 4 (1-4) (Ac-SDKP) võimalike mõjude kirjeldus. (See ei ole tootekirjeldus, disclaimer lehe allosas)
Ac-SDKP (N-atsetüül-serüül-aspartüül-lüsüül-proliin) on väga väike valgufragment, mis on saadud teisest looduslikust valgust nimega tümosiin β4. Kehas lõikavad spetsiaalsed ensüümid tümosiin β4 väiksemateks tükkideks ja üks selle protsessi tulemustest on Ac-SDKP [1]. See väike molekul on oluline, sest see aitab kaitsta organeid armistumise (fibroosi) eest, mis tekib siis, kui pärast vigastust või haigust koguneb liiga palju jäika kude. Probleem on selles, et Ac-SDKP ei püsi organismis väga kaua.
- lagundab kiiresti ensüüm nimega ACE (angiotensiini konverteeriv ensüüm). Huvitaval kombel võivad ACE-d blokeerivad ravimid (nagu mõned hüpertensiooniravimid) suurendada Ac-SDKP taset kuni viis korda, suurendades selle kaitsvat toimet [1].
Esialgu arvasid teadlased, et Ac-SDKP peamine roll on hoida vere tüvirakke liiga kiirest kasvust. Hilisemad uuringud näitavad siiski, et selle suurem roll on kudede paranemisel ja kaitsmisel. See aitab peatada liigset armistunud kudede paljunemist sellistes organites nagu süda, kopsud, maks ja neerud. Näiteks vähendab see teatud signaalide aktiivsust, mis panevad rakke tootma liiga palju kollageeni (armi peamine valk), ja takistab parandavate rakkude (fibroblastide) muutumist armi moodustavateks rakkudeks. Neeruhaiguste puhul on Ac-SDKP tõeliselt paljutõotav. See mitte ainult ei aita neerudel paremini toimida, vaid vähendab ka armistumist, blokeerides liiga paljude immuunrakkude juurdepääsu ja leevendades kahjulikke protsesse, mis tavaliselt kahjustusi süvendavad. Lühidalt, Ac-
SDKP toimib organismis loomuliku "armistumisvastase" ja "kudesid kaitsva" molekulidena. See soodustab paranemist, vähendab põletikku ja võib olla kasulik selliste haiguste ravis, kus armistumine ja koekahjustus mängivad olulist rolli.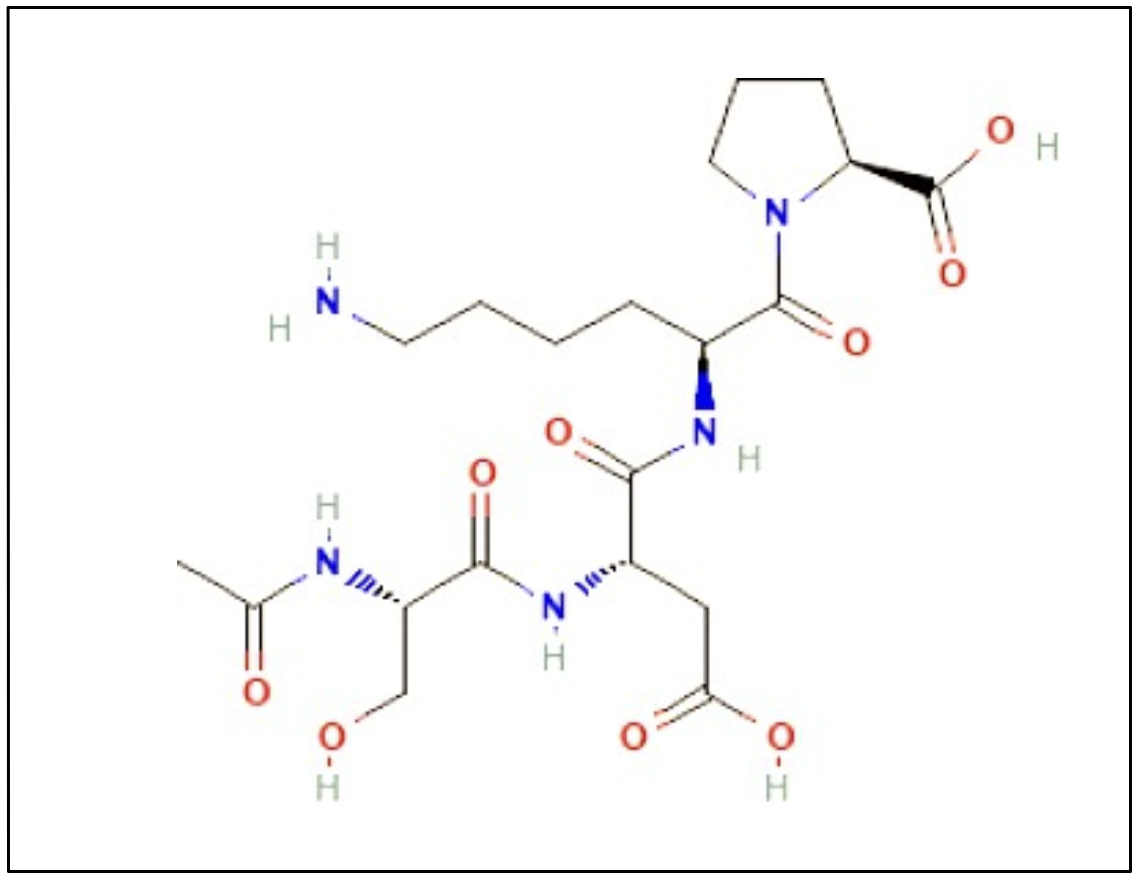
Ac-SDKP kaitseb südant (loomkatsete põhjal).
Mitmed teaduslikud uuringud on kirjeldanud Ac-SDKP potentsiaali südame tervisele nii erakorraliste kui ka pikaajaliste probleemide korral. Nakagawa et al. manustasid hiirte müokardiinfarkti mudelis Ac-SDKP-d annuses 1,6 mg/kg/päevas väikese nahaaluse pumba kaudu ja leidsid selget kasu: südame seina rebendid (südame rebendid) vähenesid 51,0%-lt 27,3%-le ja suremus langes 56,9%-lt 31,8%-le. Näis, et peptiid toimib, rahustades "esimese abistaja" immuunrakke, mis võivad kahjustusi süvendada (M1-makrofaagid), kuid ei muuda kasulikke remondimakrofaage (M2) ega neutrofiile. Samuti aeglustas see infarktijärgselt südamekude lagundava ensüümi (MMP-9) toimet, samas kui teine marker (MPO) jäi muutumatuks, mis viitab sihipärasele, tahtlikule toimele [2]. Peng et al. näitasid pikaajalise kõrge vererõhu põhjustatud südame armistumise puhul, et Ac-SDKP võib vähendada olemasolevat armkoe teket, mitte ainult ennetada seda. Rottidel, kellel oli väljakujunenud hüpertensiooni mudel, vähendas Ac-SDKP igapäevane manustamine annuses 400-800 µg/kg (nahaaluselt) 8 nädala jooksul annusest sõltuvalt kollageeni hulka südames, mis on peamine märk armistumisest (suurem annus oli tõhusam). Vererõhk iseenesest ei langenud ning normaalne vastus angiotensiin I-le ja bradükiniinile jäi muutumatuks, nii et kasu ei olnud tingitud ainult vererõhu langusest. Ac-SDKP tase veres tõusis 2-5 korda ja peamised "armi tekitavad" signaalid südames (TGF-β ja CTGF) vähenesid, mis kinnitab otsest armistumise vastast toimet [3].
Pärast müokardiinfarkti võib püsiv turse ja armistumine viia südamepuudulikkuseni. Yang et al. testisid Ac-SDKP-d nii varakult (kahjustuste ennetamiseks) kui ka hiljem (kahjustuste tagasipööramiseks). Mõlemal juhul vähenes südame kollageeni kogusisaldus (näiteks ~24 µg/mg-lt ~15 µg/mg-ni ennetusgrupis ja ~23 µg/mg-ni
~14 µg/mg pöördrühmas). Vähenes ka immuunrakkude kahjulik kuhjumine: makrofaagid vähenesid igas rühmas ligikaudu kolmandiku võrra ja TGF-β-positiivsed rakud vähenesid paralleelselt. Need eelised saavutati ilma vererõhku langetamata või südame suurust vähendamata ning pumba võimsus ei paranenud profülaktikarühmas märgatavalt. Sellegipoolest viitab armistumise ja põletiku pidev vähenemine südame struktuuri paranemisele aja jooksul [4].
Ac-SDKP võib seletada ka mõningaid "täiendavaid" koe-eeliseid, mida on täheldatud AKE-inhibeerivate ravimite puhul. Rasoul et al. võrdlesid angiotensiin II-indutseeritud hüpertensiooni mudelit gruppidega, mis said kaptopriili või Ac-SDKP-d (400-800 µg/kg/päevas). See tõstis vere taset mitu korda ja kordas paljusid ACE-inhibiitoritega sarnaseid kaitseomadusi: vähem rakkude hüpertroofiat südames, vähem makrofaage ja nuumrakkusid, madalam TGF-β ja CTGF tase ning vähem kollageeni akumuleerumist. Oluline on see, et need eelised ilmnesid ilma vererõhku alandamata või südame paksenemist vähendamata, mis viitab
otsene kaitsev mõju südamekoes [5]. Ac-SDKP aeglustab armi teket südames raku tasandil. Rhaleb et al. katsetasid laboris kasvatatud roti südame tugirakkudes (fibroblastides) väga väikeseid Ac-SDKP annuseid (0,05-100 nmol/l) ja leidsid kaks peamist mõju: rakkude kasvu (DNA kopeerimine) vähenemine normaalseks umbes 1 nmol/l juures ja kollageeni (peamine "armi" valk) vähenemine vastusena endoteliin-1-le, mis on tugev armide tekkimise signaal. Madalamad annused toimisid kollageeni puhul kõige paremini; väga suured annused olid vähem tõhusad. Peptiid näis vaigistavat levinud rakulise signaali lüliti (p44/42 MAPK/ERK) ja tuntud MAPK-blokaator andis sama kasu. Lihtsamalt öeldes, Ac-SDKP annab fibroblastidele käsu aeglustada nii proliferatsiooni kui ka liigset armide moodustumist, eeldatavasti vähendades ühe põhilise kasvurada aktiivsust [6].
Lisaks kaitseb see südant galektiini-3 põhjustatud kahjustuste eest. Liu jt. manustasid täiskasvanud rottidel tehtud uuringus galektiini-3 (valk, mis põhjustab põletikku ja armistumist) nelja nädala jooksul ning täheldasid rohkem põletikulisi rakke, paksemaid südameseinu, tugevamat armistumist veresoonte ümber ja rakkude vahel, suuremat TGF-β/Smad3-signalisatsiooni taset (rada, mis soodustab armistumist) ja nõrgemat pumpamist ehhokardiograafias. Ac-SDKP lisamine (800 µg/kg/päevas) hoidis ära enamiku neist muutustest: põletikulised rakud, armistumine ja südameseina paksenemine vähenesid ning südamefunktsioon paranes. Andmed viitavad sellele, et see kaitseb südant, lülitades välja TGF-β/Smad3 "armistumise lüliti" ja leevendades põletikku [7]. Lisaks vähendab see südame armistumist pikaajalise hüpertensiooni korral, muutmata vererõhku ennast. Rhaleb et al. kasutasid klassikalist veresoonte mudelit (2 neeru, 1 klamber) rottidel, manustades Ac-SDKP-d (400 µg/kg/päevas, subkutaanselt). Kuigi vererõhk ja südame hüpertroofia püsisid kõrgenenud, vähendas ravi peptiidiga oluliselt nii põletikuliste kui ka proliferatsioonirakkude hulka müokardis. Oluline on see, et see normaliseeris interstitsiaalse kollageeni fraktsiooni, vähendades seda hüpertensiivsetel rottidel umbes 10,1%-lt umbes 5,4%-le, mis on peaaegu identne kontrollloomade tasemega (≈5,3%). Lühidalt öeldes vähendas see kahjulikke koekahjustusi isegi siis, kui rõhukoormus jäi muutumatuks, mis viitab otsesele rollile kudede paranemisel [8]. Lisaks soodustab Ac-SDKP koos tümosiin-β4-ga koe taastumist pärast müokardiinfarkti. Cavasin et al. leidsid narratiivses ülevaates, et timosiin-β4 soodustab nii rakkude migratsiooni kui ka ellujäämist. Selle derivaat, Ac-SDKP, pakub täiendavat kasu, toimides fibroosiavastase vahendina hüpertensiooni korral. Müokardiinfarkti mudelites on näidatud, et Ac-SDKP pöördub tagasi armi moodustumise suunas ja vähendab põletikku. Samuti soodustab see angiogeneesi, nagu on näidatud nii in vivo kui ka ex vivo uuringutes. Lisaks vähendas Ac-SDKP hiirtel südame seina rebenemise riski, mis näitab selle terapeutilist potentsiaali südame-veresoonkonna taastamisel. Kasu kattub palju, mis viitab sellele, et Ac-SDKP kannab osa tümosiini β4 terapeutilisest toimest. Teadlane mainis siiski, et nende laboratoorsete tulemuste ja loomkatsete kinnitamiseks on veel vaja inimuuringuid [9].
Lisaks vähendab Ac-SDKP IL-1β poolt vallandatavate koe lagundavate ensüümide aktiivsust. Rhaleb et al. näitasid täiskasvanud rottide südame fibroblastide puhul, et interleukiin-1β (IL-1β), mis on põletikuvastane tsütokiin,
suurendas märkimisväärselt maatriksi metalloproteinaaside (MMP-2, MMP-9 ja MMP-13) ekspressiooni. Need ensüümid lagundavad rakuvälise maatriksi komponente ja aitavad kaasa ebasoodsale remodelleerimisele. Ac-SDKP ei muutnud MMP-de basaalset ekspressiooni. Siiski pärssis see tugevalt IL-1β-indutseeritud nende ensüümide taseme tõusu. Samal ajal suurendas Ac-SDKP metalloproteinaaside koeinhibiitorite (TIMP-1 ja TIMP-2), mis on MMP aktiivsuse loomulikud inhibiitorid, ekspressiooni. See aitas tasakaalustada maatriksi käivet. Ac-SDKP vähendas ka kahe peamise põletikku ja proliferatsiooni juhtiva signaalirada aktiveerimist: NF-κB ja ERK/MAPK. Huvitaval kombel ei suurendanud IL-1β stimulatsioon selles mudelis kollageeni tootmist. Ac-SDKP ei mõjutanud ka kollageeni sünteesi. See viitab sellele, et selle kaitsev roll tuleneb pigem kudede ümberkujundamise selektiivsest tasakaalustamisest kui kollageeni tootmise üldisest muutusest. Kokkuvõttes näitavad need tulemused, et Ac-SDKP võib kaitsta müokardi patoloogilise remodelleerimise eest, tasakaalustades maatriksi regulatsiooni [10].
Ac-SDKP kaitseb autoimmuunse südamekahjustuse eest rottidel. T-rakkudest põhjustatud müokardiidi mudelis ravisid Nakagawa jt immuniseeritud Lewis'i rotte Ac-SDKP-ga ja täheldasid südamefunktsiooni säilimist, nii süstoolset kui ka diastoolset. Ravi vähendas ka südame laienemist, vähendas armi teket ja säilitas tervema müokardi struktuuri. Histoloogiline analüüs näitas infiltreerivate immuunrakkude, sealhulgas makrofaagide, dendriitrakkude ja T-lümfotsüütide väiksemat arvu. Samal ajal vähenesid oluliselt peamised põletikuvahendajad, sealhulgas tsütokiinid (IL-1α, TNF-α, IL-2, IL-17), kemokiinid (CINC-1, IP-10), adhesioonimolekulid (ICAM-1, L-selektiin) ja maatriksi metalloproteinaasid. Huvitaval kombel ei muutnud Ac-SDKP müosiinispetsiifiliste autoantikehade või antigeenispetsiifiliste T-rakkude vastuste taset. See näitab, et selle kardioprotektiivne toime tuleneb peamiselt immuunrakkude värbamise vähenemisest ja põletikuvahendajate inhibeerimisest, mitte autoantikehade tootmise või T-rakkude aktiveerimise muutumisest [11].
Ac-SDKP vähendab põletikku ja kollageeni ristsidemete moodustumist angiotensiin II-indutseeritud hüpertensioonis. González et al. manustasid rottidele kolme nädala jooksul angiotensiin II ja eraldi rühma raviti Ac-SDKP-ga. Vererõhk ja südame hüpertroofia jäid mõlemas rühmas kõrgeks, kuid Ac-SDKP takistas nii kollageeni kui ka ristseotud kollageeni koguhulga suurenemist. See kaitsev toime oli tingitud lüsioksüdaasi (LOX) mRNA ja LOXL1 valgu - ensüümide, mis vastutavad kollageeni ristseotuse ja armi jäigastumise eest - pärssimisest. Lisaks vähendas Ac-SDKP TGF-β ekspressiooni, pärssis NF-κB aktiveerimist ja vähendas CD4⁺ ja CD8⁺ T-lümfotsüütide ja CD68⁺ makrofaagide infiltratsiooni südamekoes. Oluline on, et CD4⁺ T-rakkude sissevool korreleerus LOXL1 ekspressiooniga, mis viitab mehhaanilisele seosele immuunrakkude aktiivsuse ja fibroosi vahel. Need leiud rõhutavad, et Ac-SDKP avaldab tugevat anti-fibrootilist ja põletikuvastast toimet sõltumata selle mõjust vererõhule [12].
Lisaks kaitseb see südant pärast müokardiinfarkti varases ja hilisemas staadiumis hiirtel. Peng et al. manustasid Ac-SDKP (1,6 mg/kg/päevas) C57BL/6J hiirtele pärast müokardiinfarkti. Esimesel nädalal vähendas ravi surmaga lõppevate seina rebenemiste arvu, vähendas ICAM-1 taset, vähendas makrofaagide sissevoolu ja želatiini lagundamise aktiivsust, inhibeeris p53 ja vähendas müokardi rakkude surma; samal ajal suurenes väikeste veresoonte arv vigastuse servas, mis viitab uute veresoonte paremale kasvule. Viiendal nädalal ilmnes südames vähem interstitsiaalset kollageeni, säilinud struktuur, madalam endoplasmilise retikulumi stressi tase (CHOP) ja säilinud SERCA2 (oluline kaltsiumi ainevahetuse jaoks), samuti üldine parem funktsioon. Lühidalt, see vähendab varajasi kahjustusi ja soodustab tervislikumat pikaajalist remodelleerimist [13].
Teises uuringus vähendas Ac-SDKP südame armistumist ja parandas diabeetilise kardiomüopaatia diastoolset funktsiooni. Castoldi et al. tekitasid rottidele diabeedi ja kaks kuud hiljem alustati Ac-SDKP (1 mg/kg/päevas minipumba abil) kaheksa nädala jooksul. Diabeediga rottidel tekkis kõrge suhkrusisaldus, märgatav interstitsiaalne ja perivaskulaarne fibroos ning kõrgemad TGF-β1 ja fosfo-Smad2/3 tasemed südames. Ac-SDKP vähendas mõlemat tüüpi fibroosi ja vähendas TGF-β/Smad-signalisatsiooni, samuti ACE-inhibiitor ramipriili saavatel loomadel. Südame ultraheliuuring näitas, et diabeet kahjustas süstooli ja diastooli; insuliin ja ramipriil taastasid mõlemad funktsioonid, samas kui Ac-SDKP parandas osaliselt diastooli (diastoolilist funktsiooni). Need andmed rõhutavad antifibrootilist kasu koos funktsiooni mõõduka suurenemisega selles mudelis [14]. Lisaks kaitseb see koronaarseid veresooni kiirguskahjustuse eest ja säilitab verevoolu. Sharma et al. manustasid rindkere kiirgusega rottide mudelis Ac-SDKP-d nahaaluselt 18 nädala jooksul. Kiiritus vähendas rahulikku verevoolu, tappis endoteelirakke, suurendas koronaarfibroosi ja häiris tihedaid ühenduskohti (claudin-1, JAM-2). See taastas verevoolu normaalseks, säilitas endoteelirakud, vähendas fibroosi ja taastas tihedad ühendused. Laboratoorsed uuringud näitasid, et Ac-SDKP tungib endoteelirakkudesse ja vähendab kiirgusest põhjustatud reaktiivsete hapnikuliikide taset; elusloomadel kontsentreerus märgistatud peptiid endoteelirakkudes tundide jooksul. Need tulemused viitavad veresoonte kaitsele, väiksemale oksüdatiivsele kahjustusele ja paremale mikrovaskulaarsele terviklikkusele pärast kiiritamist [15]. Lisaks vähendab see stressist põhjustatud armi teket südame tugirakkudes. Inimese südame fibroblastide rakke eeltöödeldi Ac-SDKP-ga (10 nM) ja seejärel raviti neid tunicamütsiiniga (0,25 µg/ml), mis põhjustab rakuvabriku (endoplasmilise retikulumi) sees "valgu stressi". Ac-SDKP aitas peatada, et stressis olevad rakud ei toodaks liiga palju kollageeni. See toimis raku stressireaktsiooni rahustamise kaudu, vähendades stressivalgu CHOP aktiivsust ja vähendades põletikukatkestuse lüliti NF-κB aktiivsust. Samuti vähendas see IL-6 taset, mis on põletikku vallandav signaal. Kui CHOPi vähendati geneetiliselt, jätkas see NF-κB ja I tüüpi kollageeni aktiivsuse vähendamist nii valgu kui ka mRNA tasandil, mis kinnitab sama teekonda [16]. Lihtsustatult öeldes: stressitingimustes aitab see rakkudel vältida liigset armi valkude tootmist.
Lisaks vähendab see TNF-α poolt esilekutsutud veresoonte limaskesta põletikku. Inimese koronaararterite endoteelirakkudes indutseeris TNF-α stimulatsioon ICAM-1 ekspressiooni märkimisväärset suurenemist. See adhesioonimolekul mängib võtmerolli leukotsüütide adhesiivsuse edendamisel veresoonte pinnale. Eeltöötlus Ac-SDKP-ga vähendas ICAM-1 taset märkimisväärselt annusest sõltuvalt. Mehhanistiline analüüs näitas, et seda toimet vahendas IKK → IκB → NF-κB signaalkaskaadi inhibeerimine, mis on põletikulise geeniekspressiooni aktiveerimiseks ülioluline. Huvitaval kombel ei muutunud kaks muud signaalirada, p38 MAPK ja ERK, mis näitab, et Ac-SDKP interakteerub selektiivselt NF-κB-radaga, et avaldada põletikuvastast mõju endoteelirakkudes [17]. Ac-SDKP aitab hoida veresoonte limaskesta rahulikuna ja vähendab selle "kleepuvust" põletiku ajal. Lisaks takistab see suurte arterite armistumist angiotensiin II poolt põhjustatud hüpertensiooni korral, isegi ilma rõhku ise langetamata. Angiotensiin II-ga ravitud rottidel vähendas Ac-SDKP kollageeni kogunemist aordis ja vähendas signaale (I ja III tüüpi kollageeni mRNA), mis põhjustavad armistumist. Samuti vähendas see proteiinkinaas C üliaktiivsust, oksüdatiivset stressi, ICAM-1 ja makrofaagide sisenemist veresoonte seina. Vähenesid fibroosi signaalid (vähem TGF-β1 ja Smad2 aktiivsust), samas kui selle raja loomulik inhibiitor (Smad7) suurenes. Vererõhk ja aordi paksus jäid kõrgeks, seega olid need eelised veresoonte seinale tingitud pigem otsestest koemõjudest kui rõhu muutustest [18].
Ac-SDKP kaitseb südant ka kiirguskahjustuste eest. Rottidel, kes said sihipärast rindkere kiiritust, säilitas 18 nädalat kestnud Ac-SDKP südame funktsiooni, vähendas rakuvälise maatriksi kuhjumist ja fibroosi, vähendas makrofaagide sissevoolu ja vähendas südame rakkude surma. Vähenes ka makrofaagide makrofaalvalgu Mac-2 (galektiin-3) tase ja vabanemine, mis vastutab fibroosi eest. Ac-SDKP-d täheldati makrofaagide sees rakutuuma lähedal ja see takistas kiirguse poolt vallandatavat Mac-2 vabanemist; kui fibroblastidel puudus Mac-2, põhjustas kiirgus palju nõrgemaid armistumise signaale [19]. See aitab säilitada tervemat veresoonkonda ja südamekude pärast kiiritamist, vähendades põletikku ja armi teket.
Ac-SDKP kopsutervise jaoks (loomkatsete põhjal)
Ac-SDKP avaldas kopsumudelites tugevamat antifibrootilist toimet kui tümosiin-β4. Esiteks, laboratoorsetes uuringutes, kus kasutati idiopaatilise kopsufibroosiga (IPF) inimeste kopsurakke, aeglustas see rakkude ülemäärast kasvu ja vähendas kahte TGF-β-indutseeritud fibroosisignaali: α-SMA ja kollageeni. Samal ajal hiirtel, kellele anti kopsukahjustuse tekitamiseks bleomütsiini, aitas tümosiin-β4 varases staadiumis (7. päev) vähendada põletikku ja varajast armistumist, kuid ei peatanud fibroosi hilisemas staadiumis (14.-21. päev). Need leiud viitavad sellele, et Ac-SDKP blokeerib rakkude armistumise algstaadiume ja võib pakkuda stabiilsemat ja kauakestvamat fibroosiavastast kasu kui selle eelkäija, tümosiin-β4 [20]. Lisaks sellele pärsib see ränidioksiidiga seotud kopsu armistumist, taastades KIF3A ja lülitades β-kateniini signalisatsiooni välja.
. Eelkõige silikoosi puhul oli KIF3A tase patsientide proovides ja rottide kopsudes madal. Kui KIF3A taastati, vähenes β-kateniini ja selle allavoolu juhtide MRTF-A ja SRF aktiivsus, aeglustades seeläbi epiteeli ja müofibroblastide vahelist üleminekut (EMyT), mis on seotud armistumisega. See suurendas järjekindlalt KIF3A funktsiooni ja vähendas järelikult β-kateniini/MRTF-A/SRF-signalisatsiooni. Kui aga KIF3A elimineeriti, kaotas Ac-SDKP selle kasu, mis kinnitab, et KIF3A on selle fibrosioonivastase toime jaoks oluline [21].
Ühes teises uuringus vähendas Ac-SDKP koos VIPiga hiirtel sigarettide suitsetamisest põhjustatud KOK-i muutusi. See vähendas oksüdatiivset kahjustust (madalam MDA tase), armistumist (madalam hüdroksüproliini tase) ja fibroosi peamist põhjustajat (madalam TGF-β tase). Samal ajal vähenesid põletikulised tsütokiinid (TNF-α, IL-1β, IL-6) ja paranes antioksüdantide kaitse (suurem SOD aktiivsus). Vastavalt sellele ilmnes kopsukoes mikroskoobi all vähem põletikku ja vähem struktuurset ümberkujundamist. Nende ainete kombinatsioon andis antioksüdantset, põletikuvastast ja anti-fibrootilist kasu suitsukahjustuse mudelis [22, 23]. Ac-SDKP näitas samuti märkimisväärseid tulemusi nii bleomütsiinist põhjustatud kopsufibroosi ennetamisel kui ka ravimisel. CD-1 hiirtel manustati Ac-SDKP (0,6 mg/kg, i.p.) alates 0. päevast. või 7. päeval paranes elulemus ja vähenes bleomütsiiniga seotud kehakaalu langus. Lisaks ilmnes kopsudes vähem turset ja vähem invasiivseid immuunrakke, tervem koestruktuur ja vähem fibroosi: vähenesid nii kollageeni värvus kui ka lahustuva kollageeni tase. Mehhanistiliselt vähenesid pro-fibrootilised IL-17 ja TGF-β signaalid ning α-SMA vähenes, mis viitab väiksemale hulgale müofibroblastidele. Oluline on, et kasu ilmnes nii varajase (profülaktilise) kui ka hilisema (terapeutilise) skeemi korral [24]. Lisaks vähendab see P-HSP27/SNAI1 raja kaudu silikoosi põhjustatud kopsufibroosi. Rottidel põhjustas silikoos kopsukoes P-HSP27, SNAI1, α-SMA ja kollageeni I/III sisalduse suurenemist. Seevastu Ac-SDKP, mida manustati kas enne kokkupuudet või pärast haiguse algust, vähendas kõiki neid markereid ja vähendas nii P-HSP27 kui ka α-SMA suhtes positiivsete rakkude arvu pildistamisel. Oluline on see, et selle manustamine tervetele kontrollidele ei muutnud valkude ekspressiooni, mis viitab sellele, et selle mõju on selektiivne haigete kopsude suhtes [25].
Lisaks on see mitmes loomkatses näidanud tugevat antifibrootilist toimet. Metaanalüüsis, mis hõlmas 18 randomiseeritud uuringut (428 looma, 2008-2021), leiti, et Ac-SDKP vähendas mitmeid fibroosi signaale võrreldes ravimata mudelitega: α-SMA (SMD -2,44), I tüüpi kollageen (SMD -5,36), III tüüpi kollageen (SMD -3,07), TGF-β (SMD -2,88) ja pulmonaalsete sõlmede pindala (SMD
-1,80); kõik P<0,001. Lisaks sellele muutus oluliselt ka hüdroksüproliin, mis on kollageeni keemiline näitaja [SMD 7,62; 95% CI 4,90-10,33; P=0,000], mis on kooskõlas kollageeni käibe mõjuga. Need tulemused näitavad, et Ac-SDKP aeglustab järjekindlalt fibroosi kopsuhaiguse mudelites [26]. Teises uuringus vähendas see TGF-β ja CTGF taset, pärssides ränidioksiidiga seotud kopsu armistumist rottidel. Rottidele manustati ränidioksiidi fibroosi esilekutsumiseks, millele järgnes profülaktiline või terapeutiline Ac-SDKP (800 µg/kg/ööpäevas). Võrreldes silikoosi kontrollrühmaga vähenesid TGF-β1 (~0,244 ± 0,016) ja CTGF (~0,241 ± 0,017) valkude tasemed ravitud kopsudes märkimisväärselt. Samamoodi oli mRNA tase
vähenes ja CTGF mRNA oli märgatavalt madalam võrreldes mudelrühmadega (P<0,05). Profülaktikarühmas olid nii TGF-β1 valgu kui ka mRNA tasemed oluliselt madalamad kui 8-nädalase silikoosi mudelis (P<0,05). Lõpuks kinnitas kopsu histoloogia vähem fibroosi [27]. Lisaks sellele pärsib see kollageeni akumuleerumist ja parandab kopsude struktuuri silikoosi korral. Silikoosiga kokkupuutunud rotid said Ac-SDKP-d kas pärast vigastust (ravi) või 48 tundi enne kokkupuudet (profülaktika). Ravigruppides vähenes silikoosimudelitega võrreldes silikoosi sõlmede pindala 84,28% ja 67,93%, hüdroksüproliin 70,89% ja 58,18%, I tüüpi kollageen 71,08% ja 58,13% ning III tüüpi kollageen 80,13% ja 70,70% (vastavatel ajahetkedel). Profülaktilistes rühmades vähenesid võrreldes 8-nädalase silikoosi mudeliga sõlmed 61,13%-ni, hüdroksüproliin 60,27%-ni ning I ja III tüüpi kollageen 40,13%-ni ja 65,77%-ni. Vastavalt sellele näitas HE ja VG värvimine kergemat fibroosi. See vähendas nii kollageeni sisaldust kui ka nähtavat armistumist [28].
Lisaks kaitseb see kopsusid ja luid, rahustades makrofaagiradu ränidioksiidiga kokkupuutel. Rottidel ja rakumudelites aktiveeris ränidioksiid TLR4 ja RANKLi, põhjustades kopsupõletikku ja luu resorptsiooni osteoklastide poolt. Seevastu Ac-SDKP-ravi pärssis TLR4 ja RANKLi signaaliülekannet, kaitses kopsuelastiini, vähendas kopsupõletikku ja vähendas makrofaagide aktiveerumist. Samal ajal blokeeris Ac-SDKP luudes osteoklastide diferentseerumist ning aitas säilitada luutihedust ja mikroarhitektuuri. Need tulemused viitavad kahekordsele kaitsele: tervemad kopsud ja stabiilsemad luud ränidioksiidiga seotud haiguste korral [29]. Samuti vähendab see kopsude armistumist, kuna pärsib armi moodustavate rakkude küpsemist. TGF-β1 stimuleerib tavaliselt kopsu tugirakke (fibroblaste) muutuma müofibroblastideks ja tootma täiendavat kollageeni. Kui Ac-SDKP-d manustati enne TGF-β1 manustamist, vähenesid α-SMA ja kollageeni tasemed ning TGF-β1 ja selle retseptori tasemed. Seejärel vähendas Ac-SDKP manustamine enne või pärast kokkupuudet ränidioksiidi põhjustatud kopsukahjustusega rottidel TGF-β1 taset, RAS-signaale ja SRF-i aktiivsust ning vähendas α-SMA-positiivsete müofibroblastide arvu kopsukolletes. Selle tulemusena vähenes kollageeni akumulatsioon, mis näitab kaitset fibroosi eest [30, 31]. Lisaks kaitseb Ac-SDKP alveoolide limaskesta, takistades epiteelirakkude muutumist armi moodustavateks rakkudeks. Kahjustussignaalide, nagu silikoosi ja TGF-β1, mõjul vähenevad epiteeli markerid (E-kadheriin, SP-A), samas kui mesenhüümilised ja fibroosi markerid (vimentiin, α-SMA, kollageen I/III) suurenevad. Ac-SDKP kasutamisel pöördus see kahjulik muutus vastupidiseks: epiteeli identiteet säilis, fibroosi markerid vähenesid ja TGF-β1/ROCK1 rada nõrgenes. Sellest tulenevalt jäi õrn alveoolne pind normaalsele lähemale ja oli vähem altid armistumisele [32]. Lisaks leevendas see "valgu tehase" stressi ja rakusurma alveolaarrakkudes, mis omakorda vähendab kopsu armistumist. Silikoosi tekkimisel ilmnevad rakkudes kõrged ER stressisignaalid (GRP78, fosforüülitud PERK ja eIF2α), CHOP ja kaspaas-12 ning paljud rakud surevad. Ac-SDKP - nagu ka ER-stressi blokaatori 4-PBA - kasutamisel vähenesid need stressimarkerid, rakusurm vähenes rakuanalüüsides ja rottidel ning kopsu kollageen vähenes. Kokkuvõttes aitab Ac-SDKP PERK/eIF2α/CHOP raja ja kaspaas-12 rahustamisega kaitsta epiteelikihti ja aeglustab fibroosi progresseerumist [33].
Ac-SDKP neerutervise jaoks (loomkatsete põhjal)
Ac-SDKP kaitseb lupuse korral neerusid, ilma et see langetaks vererõhku. Nakagawa et al (2017) näitasid, et lupusesse kalduvatel NZBWF1-hiirtel säilitas see neerufiltrid (vähem glomerulaarskleroosi) ja vähendas üldist kahjustust, ilma et see langetaks süstoolset vererõhku. Raske hüpertensiooni, uriinialbumiini ja enneaegse surma tekkimine toimus Ac-SDKP puhul hiljem, kuid need viivitused ei olnud statistiliselt olulised [34]. Aine kaitseb neerufunktsiooni ka soolastressi ajal. Worou jt (2015) uurisid soolatundlikke Dahli rotte, keda raviti kuue nädala jooksul 800 või 1600 µg/kg/päevas. Vererõhk tõusis soolase dieedi tagajärjel jätkuvalt, kuid neerud näitasid vähem põletikku, vähem fibroosi ja tervemaid filtreid. Ainult suurem annus vähendas soolatundlikel rottidel uriinialbumiini taset. Resistentsemal tüvel (SS13BN) hoidsid mõlemad annused ära albumiini lekke ja struktuurikahjustuse [35]. See näitab, et kaitsev toime oli vererõhust sõltumatu. Peptiid vähendab ka immuunsüsteemi poolt vahendatud neerukahjustusi luupuse korral. Liao jt (2015) leidsid, et 20 nädala pärast oli ravitud luupuse-ohtlikel hiirtel parem neerufunktsioon, kuigi luupuse autoantikehade tase ei muutunud. Neerudes oli vähem invasiivseid immuunrakke, nagu makrofaagid ja T-rakud. Põletikusignaalid, nagu tsütokiinid ja kemokiinid, olid väiksemad ning komplemendi valkude (C5-9), RANTES, MCP-5 ja ICAM-1 aktiveerumine oli pärsitud. Selle tulemusena säilitati filtratsioonifunktsioon ja vähenesid mikroskoopilised kahjustused [36].
Teises uuringus ennetas see hüpertensiooniga seotud neerukahjustusi, hoolimata püsivalt kõrgest vererõhust. Rhaleb jt (2011) näitasid, et DOCA-soolaga ravitud hiirtel vähendas Ac-SDKP (800 µg/kg/päevas 12 nädala jooksul) neerude armistumist (kollageeni), filtratsioonimaatriksi laienemist ja monotsüütide/makrofaagide sissevoolu, samas kui vererõhk jäi kõrgenenud. Oluline on, et uriini albumiini tase normaliseerus - 41 ± 5 µg-lt 13 ± 3 µg-le 10 g kehakaalu kohta päevas, lähenedes kontrolltasemele - ja nefriini (peamine filtratsioonilõhevalk) kadu taastati osaliselt [37]. Seega kaitses Ac-SDKP filtratsioonibarjääri ja vähendas armistumist sõltumata vererõhust. Lisaks kaitseb see armistumise ja diabeedist põhjustatud neerufunktsiooni häire eest. Shibuya jt (2005) näitasid, et 2. tüüpi diabeediga db/db-hiirtel põhjustas Ac-SDKP kaheksanädalane manustamine minipumpade kaudu plasma Ac-SDKP kontsentratsiooni ligikaudu kolmekordset tõusu ilma veresuhkru taseme muutuseta. Selle tulemusena välditi glomerulaarödeem, mesangiaalse maatriksi ülemäärane proliferatsioon ja rakuvälise maatriksi kuhjumine ning plasma kreatiniini tase lähenes normaalsele tasemele. Albuminuuria vähenes samuti, kuigi vähenemine ei olnud statistiliselt oluline. Mehhanistiliselt blokeeris see Smad3 sisenemist rakutuuma, vähendades seeläbi fibroosiga seotud TGF-β/Smad-signalisatsiooni [38]. Lisaks vähendab Ac-SDKP diabeedi korral neeru armistumist ja on lisaks AKE inhibeerimisele täiendavaks eeliseks. Castoldi jt (2013) tekitasid rottidel diabeeti ja manustasid seejärel Ac-SDKP-d (1 mg/kg/päevas), ramipriili (3 mg/kg/päevas), mõlemat ravimit koos või platseebot. Esmalt tekkisid ravimata diabeetilistel rottidel kõrge veresuhkru tase, kõrgem uriinialbumiini tase (albuminuuria), neerufibroosi
neerufibroos ja vähenenud glomerulaarse nefriini tase. Ainult Ac-SDKP kasutamisel vähenes neerufibroos, kuid albuminuuria ei paranenud. Ramipriili manustamisel vähenesid nii albuminuuria kui ka fibroos ja nefriini tase taastus. Oluline on, et Ac-SDKP ja ramipriili kombinatsioon vähendas fibroosi rohkem kui ramipriil üksi, kuigi albuminuuria ei paranenud veelgi. Ac-SDKP vähendab diabeetilise nefropaatia korral fibroosi ja suurendab AKE-inhibiitorite fibroosivastast kaitset ilma albuminuuriale lisakasu andmata [39].
Huvitaval kombel töötasid Zhang et al (2022) välja bioinspireeritud topeltvõrgustiku hüdrogeeli, mis koosneb želatiinist ja kurkumiini-tsingist, mis on kaetud DOPAga ja funktsionaliseeritud immobiliseeritud Ac-SDKP-ga. See süsteem loodi selleks, et ületada vabade ravimite piirangud, sealhulgas halb lahustuvus, imendumine ja stabiilsus. In vivo kasutamine osaliselt nefrektaalselt eemaldatud roti neerude puhul näitas, et hüdrogeel vähendas järjekindlalt kohalikku fibroosi, soodustas angiogeneesi ja stimuleeris uute neerutorude moodustumist. Materjalide katsetamine kinnitas piisavat poorsust, mehaanilist tugevust ja bioloogilist kokkusobivust, mis toetab veelgi selle terapeutilist potentsiaali [40]. Võrdlevad uuringud rõhutavad ka tümosiin-β4 (Tβ4) erinevat ja staadiumist sõltuvat mõju. Zuo jt (2013) kasutasid ühepoolse ureteri obstruktsiooni mudeleid metsikut tüüpi ja PAI-1-geeni välistatud hiirtel, et hinnata Ac-SDKP, Tβ4 ja Tβ4 kombinatsioonis prolüül-oligopeptidaasi (POP) inhibiitoriga. Ac-SDKP vähendas järjekindlalt fibroosi mõlemas genotüübis, mida näitas väiksem kollageeni ja fibronektiini ladestumine, vähem aktiveeritud müofibroblastide ja makrofaagide arv ning vähenenud pro-fibrootiline signalisatsioon [41]. Lisaks näitasid Wang et al (2010), et Ac-SDKP pärsib neerupõletikku ja obstruktsioonist põhjustatud fibroosi. Ühepoolse uretriobstruktsiooniga rottidel vähendas 14-päevane ravi tubulointerstitsiaalset armistumist ja põletikulisi muutusi histoloogilisel uurimisel. Peptiid vähendas neerude makrofaagide infiltratsiooni (ED-1) ja vähendas MCP-1, NF-κB, α-SMA ja TGF-β1 valkude taset tubulaarsetes ja interstitsiaalsetes rakkudes. Vähenes ka MCP-1 ja TGF-β1 geeniekspressioon, mis näitab, et see vähendas nii põletikulise transpordi kui ka rakuvälise maatriksi aktiveerimist, mis on neerufibroosi peamised tegurid [42]. Täiendavad tõendid pärinevad kroonilise neerukahjustusega hüpertensiooni mudelitest. Liao jt (2010) manustasid rottidele pärast 5/6 nefektoomiat Ac-SDKP-d annuses 800 µg/kg/päevas kas enne kahjustust (ennetamine) või pärast kahjustust (pöördumine). Vaatamata püsivale hüpertensioonile ja vasaku vatsakese hüpertroofiale vähendas ravi mõlemas rühmas albuminuuriat, makrofaagide infiltratsiooni ja neerukollageeni taset. Nefriini kadu glomerulites oli samuti osaliselt säilinud või taastunud, mis viitab filtratsioonibarjääri terviklikkuse paranemisele. Need leiud rõhutavad, et peptiid pakkus neerukaitset nii haiguse varajases kui ka kaugelearenenud staadiumis, peamiselt põletikuvastase ja fibrootilise toime, mitte vererõhu kontrolli kaudu [43].
Aldosteroon-soola hüpertensiooni korral vähendas peptiid nii südame kui ka neerude armistumist, ilma et see mõjutaks vererõhku. Peng et al (2001) uurisid rottidel, kellel oli eemaldatud üks neer, mis olid
anti aldosterooni ja soola kuue nädala jooksul. See ravi tõstis vererõhku, suurendas südant ja neerusid ning suurendas armkoe (kollageeni) koos rakkude kasvumarkeritega (PCNA). Ac-SDKP manustamine, eriti suuremas annuses 800 µg/kg/päevas, vähendas oluliselt kollageeni ja PCNA-d annusest sõltuvalt. Oluline on, et vererõhk ja elundite suurenemine jäid muutumatuks, samas kui väiksem annus (400 µg/kg/ööpäevas) andis osalise kasu [44]. Immuunvahendatud neeruhaiguse korral parandas peptiid neerufunktsiooni ja vähendas fibroosi. Omata jt (2006) ravisid GBM-vastase nefriidiga rottidel, alustades 14 päeva pärast haiguse algust, Ac-SDKP-d 1 mg/kg/päevas nelja nädala jooksul. Võrreldes ravimata loomadega vähendas see uriinivalgu taset, vähendas plasma uurea ja kreatiniini kontsentratsiooni ning parandas kreatiniini kliirensit. Kudede analüüs näitas vähem glomerulaarskleroosi ja interstitsiaalset fibroosi. Mehhanistiliselt vähendas see fibronektiini, kollageeni ja TGF-β1 taset, vähendas Smad2-signalisatsiooni, suurendas Smad7 ja vähendas makrofaagide kogunemist neerukoes [45]. Diabeedi korral blokeeris peptiid neeru armistumist, takistades veresoonte rakkude muutumist armi moodustavateks rakkudeks. Nagai et al (2014) näitasid, et Ac-SDKP taastas loomulikud kaitserajad, sealhulgas let-7 mikroRNA ja FGF retseptori signalisatsiooni, mis olid diabeedi poolt pärsitud. Selle tulemusena vähendas see fibroosi ja endoteeli-mesenšümaatilist üleminekut (EndMT). Oluline on, et selle kombinatsioon ACE-inhibiitoriga parandas neerude kaitset isegi rohkem kui ACE inhibeerimine üksi [46].
Teises uuringus taastas peptiid neerude ainevahetuse ja vähendas fibroosi. Srivastava jt (2020) võrdlesid ACE-inhibiitoreid, ARBsid, Ac-SDKP-d ja nende kombinatsioone diabeediga hiirtel. Samuti blokeerisid nad selle loomulikku moodustumist proliini oligopeptidaasi inhibiitoriga (POPi). Tulemused näitasid, et Ac-SDKP vahendas ACE-inhibiitorite mõju neerude ainevahetuse ümberprogrammeerimise kaudu: SIRT3 taastati, mitokondriaalne rasvhapete oksüdatsioon paranes ja ebanormaalne glükoosi kasutamine vähenes. Seevastu POPi vähendas loomulikku taset, kiirendas fibroosi ja häiris metaboolset tasakaalu. Oluline on, et ACE inhibiitorid (kuid mitte ARB-d) taastasid osaliselt selle taseme ja vähendasid fibroosi. Nii AKE-inhibiitorid kui ka Ac-SDKP vähendasid diabeetiliste neerude mesenhüümset remodelleerimist ning vähendasid kollageeni I ja fibronektiini taset [47].
Vähiravis aitas Ac-SDKP analoog säilitada vererakke keemiaravi ajal. Carde jt (1992) testisid seraspeniidi topeltpimedas, ristuva faasi I-II uuringus, milles osales 53 patsienti, kes said tsütarabiini või ifosfamiidi. Võrreldes kontrollperioodidega oli seraspeniidiga ravitud patsientidel perifeersete vererakkude parem kaitse keemiaravi toksilisuse eest. See oli hästi talutav ja ei avaldanud kõrvaltoimeid. Need tulemused viitavad sellele, et Ac-SDKP-taolised peptiidid võivad kaitsta luuüdi tsütotoksilise ravi ajal [48]. Teises uuringus ei vähendanud peptiid vere toksilisust, kuid oli ohutu. Cappelaere et al (1995) uurisid 84 kaugelearenenud lamerakk-kartsinoomiga patsienti, kes said karboplatiini ja 5-fluorouratsiili pidevat annust koos
platseebo või goralatid (Ac-SDKP) annuses 12,5 või 62,5 µg/kg/päevas. 221 keemiaravi tsükli jooksul ei olnud rühmade vahel erinevusi leukotsüütide, granulotsüütide, trombotsüütide või hemoglobiini madalaimates vereanalüüsides. Ka toksilisuse kestus jäi muutumatuks. Aneemia ja lümfopeenia esinesid goralatidiga siiski sagedamini. Üldiselt oli ravim hästi talutav, kuid nende annuste juures ei takistanud keemiaraviga seotud vererakkude kadu [49].
Nii 1. kui ka 2. tüüpi diabeedi puhul parandas peptiid armistumist ja neerufunktsiooni. Nitta jt (2016) ravisid CD-1 hiiri streptozototsiiniga indutseeritud 1. tüüpi diabeediga ja db/db hiiri 2. tüüpi diabeediga suukaudse Ac-SDKP, imidapriili (ACE inhibiitor) või mõlema ravimi kombinatsiooniga. Suukaudne ravi, kas üksi või kombinatsioonis, vähendas glomerulaarskleroosi ja tubulointerstitsiaalset fibroosi. Plasma tsüstatiin C tase, mis on neeruhaiguse korral kõrgenenud, langes normaalseks. Kõik ravimeetodid taastasid fibroosiavastased mikroRNAd (miR-29 ja let-7), kusjuures suurim paranemine täheldati kombineeritud ravi saanud rühmas. Peptiidide tase uriinis oli kõrgeim kombinatsioonravi saanud rühmas, mis viitab paremale süsteemsele ekspositsioonile [50]. Immuunvahendatud neeruhaiguse puhul vähendas see uriinivalkude taset ning vähendas põletikku ja fibroosi. Tan jt (2012) manustasid luupusega hiirtel MRL/lpr 1,0 mg/kg/päevas 8 nädala jooksul. Võrreldes ravimata luupushiirtega oli peptiidi saanud hiirtel vähem proteinuuriat ja parem neerufunktsioon. Neerukoes oli vähem infiltreerivaid T-rakke ja makrofaage. Mehhanistiliselt vähenes NF-κB aktiveerumine ja TNF-α tootmine, samuti vähenesid pro-fibrootilised markerid (TGF-β1, α-SMA ja fibronektiin). Smad2/3 fosforüülimine oli pärsitud ja Smad7 suurenenud. Oluline on see, et immuunkomplekside ladestumine ja anti-dsDNA antikehade tase ei muutunud, mis viitab sellele, et kasu tulenes pigem põletiku ja fibroosi vähenemisest kui antikehade moodustumise muutusest [51].
Ülekaalulisuse ja suure soolatarbimise korral kaitses see neerusid, vähendades põletikku, fibroosi ja isegi vererõhku. Maheshwari et al. (2018) uurisid Zucker lahja (ZL) ja Zucker rasvunud (ZO) rotte, keda toideti 8 nädala jooksul tavalise soolaga (0,4%) või kõrge soolasisaldusega (4%), kusjuures ZO alarühm sai
1,6 mg/kg/päevas. Kõrge soola sisaldus halvendas neerupõletikku ja fibroosi mõlemas rühmas, kusjuures rasvunud rottidel oli makrofaagide infiltratsioon kõige tõsisem (87,8 ± 10,8 võrreldes 19,14 ± 1,5 rakku/mm² lahja rottidel). Ravi vähendas rasvunud rottidel makrofaagide infiltratsiooni 32,18 ± 2,4 rakku/mm² (P<0,05) ja vähendas glomerulaarskleroosi ning interstitsiaalset fibroosi nii cortexis kui ka medullas (P<0,05). Süstoolne vererõhk vähenes soolaga toidetud rasvunud rottidel samuti 164 ± 6,9-lt 144,05
± 14,1 mmHg (P=0,004). Albuminuuria oli rasvunud rottidel suurem kui lahjadel rottidel, kuid seda ei muutnud oluliselt soola tarbimine ega ravi [52].
Ac-SDKP aju ja närvide tervisele (loomkatsete põhjal)
Kaitse Parkinsoni tõve mudelites
See peptiid aitab kaitsta dopamiini tootvaid neuroneid ning soodustab Parkinsoni tõve mudelites paremate motoorsete oskuste ja mälu tekkimist. Kamarehei ja Zahednasab (2025) näitasid esimesena rakukatsetes, et SH-SY5Y närvirakkude eeltöötlemine 20 nM selle peptiidiga kaitses neid 6-OHDA eest, mis on tavaliselt Parkinsoni tõve jäljendamiseks kasutatav toksiin. Rottidel tehtud uuringutes säilitasid 800 µg/kg päevased annused pärast 6-OHDA ajukahjustust rohkem dopamiini neuroneid ja vähendasid rakusurma, vähendades kaspaas-3 ja kaspaas-12 aktiivsust. Ravitud rottidel ilmnes ka parem motoorne koordinatsioon, paranenud ruumiline mälu ning vähem ärevuse ja depressiooni sümptomeid. Mehhanistiliselt oli kasu tingitud vähenenud oksüdatiivsest stressist, leevendatud endoplasmilise võrkkesta (ER) stressist ja vähenenud põletikusignaalidest ajus, mis soodustab neuronite ellujäämist ja regeneratsiooni [53].
Taastumine pärast seljaaju vigastust
Samuti kiirendab see taastumist ja suunab põletiku paranemise suunas pärast seljaaju vigastust. Hashemizadeh jt (2022) manustasid Wistar-rottidele 0,8 mg/kg subkutaanselt üks kord päevas seitsme päeva jooksul, alustades kaks kuni kuus tundi pärast seljaaju vigastust, mis oli põhjustatud kehakaalu langusest. Võrreldes ravimata loomadega paranes ravitud rottidel parem kõndimisvõime, nad kaotasid vähem motoorseid neuroneid ja neil oli madalam TNF-α (pro-inflammatoorne signaal) ja kaspaas-3 tase. Samal ajal suurenes vananemist soodustavate M2-makrofaagide markeri CD206 mRNA tase. Kudede uuringud näitasid väiksemaid kahjustuspiirkondi. Kokkuvõttes muutis ravi immuunvastuse kahjustavast M1-tüüpi aktiivsusest kaitsvaks M2-tüüpi aktiivsuseks, millest oli nii funktsionaalset kui ka struktuurset kasu [54].
Kaitse pärast traumaatilist ajukahjustust (TBI)
Ac-SDKP aitab kaitsta aju ja soodustab aju taastumist, kui seda manustatakse varsti pärast vigastust. Zhang jt (2017) tekitasid rottidel kontrollitud kortikaalkahjustusi ja manustasid neile seda ainet (0,8 mg/kg/päevas) minipumba kaudu kolme päeva jooksul, alustades tund aega pärast vigastust. Alates 7. päevast kuni 35. päevani paranesid sensomotoorsete testide tulemused ning 33.-35. päeval oli ka ruumiline õppimine parem võrreldes kontrollrühmaga (p < 0,05). Uuringu lõpuks oli koore kahjustuste hulk ja hipokampuse neuronite kadu vähenenud, samas kui veresoonte kasv, uute neuronite moodustumine ja dendriitide spiketihedus olid suuremad. Varajane ravi vähendas ka fibriini kogunemist ja nõrgestas immuunsüsteemi rakkude aktiveerimist. Mehhanistilised testid näitasid, et TGF-β1/NF-κB-signalisatsiooni blokeerimine selgitas suurt osa põletikuvastasest toimest [55].
Kasu sclerosis multiplex'ile (MS) sarnase haiguse korral
Samuti vähendab see aju stressi ja põletikku hulgiskleroosi mudelites. Pejman jt (2020) tegid C57BL/6 hiirtele eksperimentaalse autoimmuunse entsefalomüeliidi (EAE). Tavaliselt suurendab EAE ER-stressi markerid (kaspaas-12, CHOP, PDI), oksüdatiivset stressi ja immuunrakkude sissevoolu hipokampusesse. Ravi korral vähenesid kaspaas-12 ja CHOP tasemed oligodendrotsüütides, vähenes kaspaas-3 aktiveerumine, ROS oksüdatsioon ja lipiidide peroksüdatsioon vähenesid, antioksüdantide maht paranes ja IL-6/IL-1β tasemed vähenesid. Aju skaneeringud kinnitasid, et hipokampus on vähem kahjustatud ja immuunsüsteemi rakkude infiltratsioon on väiksem, mis viitab haiguse aeglasemale progresseerumisele [56].
Ac-SDKP maksa tervisele (loomkatsete põhjal)
Keemiast tingitud maksa armistumise aeglustamine
Ac-SDKP peptiid aitab kaitsta maksa keemiliste kahjustuste eest, reguleerides olulist geenikontrolli lülitit ja kasvurada. Wei et al. (2022) uurisid rottidel süsiniktetrakloriidist (CCl₄) põhjustatud maksakahjustusi ja leidsid, et stellaatrakud - peamised armi moodustavad rakud maksas - surevad vähem. Samuti vähenes fibroos. Mehhanistlikud katsed näitasid, et ravi vähendas WTAPi (ensüüm, mis lisab RNA-le m⁶A-markerid) taset. See muutus stabiliseeris RNA Ptch1 ja reguleeris Hedgehogi raja, mis on peamine armi tekkimise mootor, aktiivsust. Kokkuvõttes rõhutavad tulemused anti-fibrootilist toimet WTAP/m⁶A/Ptch1 raja kaudu, mis reguleerib Hedgehogi signalisatsiooni [59].
Kaitse sapiteede põhjustatud fibroosi korral
Ac-SDKP kaitseb maksa ka siis, kui sapi ummistumine põhjustab armistumist. Zhang et al (2012) kasutasid rottidel sapiteede ligatsiooni (BDL) mudelit ja ravisid neid pidevalt kahe nädala jooksul. Võrreldes ravimata loomadega oli peptiidi saanud loomadel inhibeeritud TGF-β1 signaalimine ja madalam aktiveeritud stellataatsete rakkudega seotud markerite (α-SMA, FSP-1) tase. Samuti vähenes kollageeniga seotud geenide (Col I, Col III) ja turnover-ensüümide (MMP-2, TIMP-1, TIMP-2) ekspressioon. Maksafunktsiooniga seotud vere markerid paranesid, ALT, AST, bilirubiin ja protrombiini aeg lähenesid normile. Kudepreparaatidel täheldati vähem masti rakke, vähem kollageeni kogunemist ning fibroosi ja põletiku üldist vähenemist [60].
Loomuliku kaitse ja remondisignaalide säilitamine
See aitab maksal säilitada oma loomulikku vastupanuvõimet pikaajalise keemilise kahjustuse ajal. Chen jt (2010) leidsid, et pideva CCl₄-ga kokkupuute korral vähenes selle peptiidi loomulik tase aja jooksul. Selle asendamine infusiooniga (800 µg/kg/päevas kaheksa nädala jooksul) säilitas algtaseme ja vähendas maksakahjustust, põletikku ja fibroosi. Maksaensüümide tase veres vähenes, CD45⁺ põletikurakud vähenesid.
ning kollageeni ja α-SMA ladestumine vähenes. Pro-fibrootilised signaalid, nagu TGF-β1 ja fosfo-Smad2/3, vähenesid, samas kui parandamisega seotud signaalid, BMP-7 ja fosfo-Smad1/5/8, suurenesid. Rakukatsetes blokeeris see otseselt stellatiivsete rakkude aktiveerimist, mis kinnitab anti-fibrootilist toimet raku tasandil [61].
Ac-SDKP naha ja kudede taastamiseks (loomkatsete põhjal) H3. Hüdrogeelne nahaliim paranemise kiirendamiseks ja armistumise vähendamiseks
Ac-SDKP kandmiseks ja vabastamiseks töötati välja spetsiaalne tselluloosipõhine nahaliim (Dopa-OCMC-PAA, võrreldes OCMC-PAA-ga). Mõlemad versioonid näitasid head paisumis- ja lagunemisprofiili, suurt mehaanilist tugevust ja ohutust rakkudega kasutamiseks, kuid Dopa-OCMC-PAA näitas parimaid tulemusi. Maksaverejooksuga hiirtel peatas see liim verejooksu kiiremini. Katsetes fibroblastidega suurendas see koe ümberkujundamise eest vastutavate ensüümide (MMP-1 ja MMP-3) taset, vähendades samal ajal kollageeni geenide aktiivsust. Küülikutel, kellel olid paksenenud kõrvaarmid, vähendas Dopa-OCMC-PAA koos peptiidiga armide arvu, vähendas rakkude arvu, parandas kollageeni struktuuri ja näitas jällegi kõrgemat MMP-1/MMP-3 taset koos kollageenide aktiivsuse vähenemisega. Kokkuvõttes näitasid need tulemused paremat haava paranemist ja väiksemat armistumist [62].
Paikne manustamine parandab naha säilimist ja parandamist.
Rottidel teostatud nahalappide operatsioonidel (kõhu- ja seljaosa) suurendas Ac-SDKP süstimine annuses 5 µg/kg kaks korda päevas kolme päeva jooksul terve naha säilimist. Elujõulise lappide pindala suurenes 50,9 ± 19,3%-lt 66,4 ± 7,5%-le ventraalsete lappide puhul ja 53,4 ± 4,2%-lt 74,7 ± 6,6%-le dorsaalsete lappide puhul. UVB-kahjustatud nahakoe puhul parandas paikselt manustatuna säilimine. Paikne manustamine kiirendas ka uue naha kasvu, suurendas keratiin-14 taset (nahka moodustavate rakkude marker) ja suurendas fibronektiini taset, mis näitab selle rolli veresoonte arengus ja taastumises [63].
Vere moodustumise kaitsmine keemiaravi ajal
Hiirtel, kes said kemoteraapia ravimit doksorubitsiini, vähendas Ac-SDKP manustamine annuses 2,4 µg/päevas (pidevalt või jagatult), alustades 48 tundi enne ravi, suremust ja kaitses vere moodustamise eest vastutavaid tüvirakke (LTRC, CFU-S, HPP-CFC ja CFU-GM). G-CSF-i lisamine kiirendas CFU-GM-i taastumist veelgi. Manustamise ajastus oli otsustava tähtsusega - lühiajalise luuüdi kahjustuse ja pikaajalise tüvirakkude kadumise eest kaitsmiseks oli vaja alustada manustamist enne keemiaravi [64].
Tugevam anti-fibrootiline toime tänu täiustatud analoogidele ja ACE-inhibiitorite kombinatsioonile.
Katsetes kopsufibroblastidega vähendas ACE-resistentne Ac-SDKP vorm armistumise signaale (TGF-β/Smad3) ja kollageeni akumuleerumist paremini kui looduslik vorm. Lühendatud fragment (Ac-DKP) avaldas vaid nõrka mõju ja lagunes ACE poolt aeglaselt. Kombineerituna ACE inhibiitoritega inhibeeris peptiid hüdroksüproliini (kollageeni marker) rohkem kui üksinda, näidates tugevamat toimet ja kliinilist potentsiaali. Annustes 10-⁶ kuni 10-¹⁷ M vähendasid nii tümosiinβ4 (Tβ4) kui ka peptiid mastiiride kasvu (kõige paremini 10-¹⁴ M juures) ja kutsusid esile ebatavalisi tuumamuutusi, mis olid seotud rakutsükli peatumisega. Kontsentratsioonil 10-⁸ M indutseerisid nad ka kemikaalide vabanemist nuumrakkudest (degranulatsioon), kusjuures peptiidi mõju oli tugevam (~89%) kui Tβ4 (~57%). Teised Tβ4-fragmendid ei avaldanud mingit mõju, mis näitab, et mõju oli spetsiifiline intaktsele Tβ4-le ja peptiidile [65, 66].
Ac-SDKP annus
Prekliinilistes uuringutes manustatakse Ac-SDKP-d kõige sagedamini minipumba kaudu nahaaluselt annuses ligikaudu 0,8 mg/kg/päevas, et vähendada fibroosi ja põletikku südames/vaskulaarsuses ja neerudes. Uuringutes hiirtel pärast müokardiinfarkti kasutatakse mõnikord annust 1,6 mg/kg/päevas, et tagada varajane kaitse. Aju/neuronite puhul kasutatakse tavaliselt annust ligikaudu 0,8 mg/kg/päevas 3-7 päeva jooksul lühikeste tsüklitena, mis algavad mõne tunni jooksul pärast vigastuse tekkimist. Rakuuuringutes on tavaline eelravi annusega ligikaudu 10 nM. Maksas antakse fibrootilise ravi protokollides kroonilise vigastuse ajal sageli annust ligikaudu 0,8 mg/kg/päevas. Kopsu puhul kasutati bleomütsiini mudelis annust 0,6 mg/kg intraperitoneaalselt, kusjuures korduvaid annuseid alustati 0. või 7. päeval. Naha/haavade parandamisel kasutati paikset annustamist 5 µg/kg süsti kohta kaks korda päevas kolme päeva jooksul või peptiide sisaldavaid hüdrogeele paikseks vabastamiseks. Hematoloogias/luuüdi taastamisel kasutatakse väga väikeseid mikrogrammi annuseid, näiteks 2,4 µg/päevas hiirtel enne keemiaravi ja lühikesi annuseid µg/kg/päevas varajastes kliinilistes uuringutes.
Vastutusnõue
Käesolev artikkel on kirjutatud hariduslikel eesmärkidel ja selle eesmärk on tõsta teadlikkust arutatavast ainest. Oluline on märkida, et artikkel käsitleb ainet üldiselt - see ei ole konkreetse toote (keemilise reaktiivi) kirjeldus. Me ei soovita keemiliste reagentide kasutamist inimestel - see on seadusega keelatud, raviks kasutamiseks peab toode olema registreeritud ravimina. Tekstis sisalduv teave põhineb olemasolevatel teaduslikel uuringutel ja ei ole mõeldud meditsiinilise nõustamisena ega enesearstiabi propageerimiseks. Lugeja peaks konsulteerima kvalifitseeritud tervishoiutöötajaga kõigi tervise- ja raviotsuste tegemisel.
Viited
- Wang, W., Jia, W. ja Zhang, C. (2022). Tβ4-POP-Ac-SDKP telje roll elundifibroosis. Rahvusvaheline molekulaarteaduste ajakiri, 23(21), 13282. https://doi.org/10.3390/ ijms232113282
- Nakagawa, P., Romero, C. A., Jiang, X., D'Ambrosio, M., Bordcoch, G., Peterson, E. L., Harding, P., Yang, X. P. ja Carretero, O. A. (2018). Ac-SDKP vähendab suremust ja südame rebenemisriski pärast ägedat müokardiinfarkti. PLoS One, 13(1), e0190300. https://doi.org/10.1371/ journal.pone.0190300 https://pubmed.ncbi.nlm.nih.gov/29364896/
- Peng, H., Carretero, O. A., Brigstock, D. R., Oja-Tebbe, N. ja Rhaleb, N. E. (2003). Ac-SDKP pöördub südame fibroosiks neeruvaskulaarse hüpertensiooniga rottidel. Hüpertensioon, 42(6), 1164–1170. https://doi.org/10.1161/01.HYP.0000100423.24330.96 https://pubmed.ncbi.nlm.nih.gov/14581293/
- Yang, F., Yang, X. P., Liu, Y. H., Xu, J., Cingolani, O., Rhaleb, N. E., & Carretero, O. A. (2004). Ac-SDKP muudab põletiku ja fibroosi südamepuudulikkusega rottidel pärast müokardiinfarkti. Hüpertensioon, 43(2), 229-236. https://doi.org/10.1161/01.HYP.0000107777.91185.89 https:// pubmed.ncbi.nlm.nih.gov/14691195/ pubmed.ncbi.nlm.nih.gov/14691195/
- Rasoul, S., Carretero, O. A., Peng, H., Cavasin, M. A., Zhuo, J., Sanchez-Mendoza, A., Brigstock,
D. R. ja Rhaleb, N. E. (2004). Ac-SDKP ja angiotensiini konverteeriva ensüümi inhibeerimise fibrosioonivastane toime hüpertensiooni korral. Journal of Hypertension, 22(3), 593-603. https://doi.org/ 10.1097/00004872-200403000-00023 https://pubmed.ncbi.nlm.nih.gov/15076166/
- Rhaleb, N. E., Peng, H., Harding, P., Tayeh, M., LaPointe, M. C. ja Carretero, O. A. (2001). N-atsetüül-serüül-aspartüül-lüsüül-proliini mõju DNA ja kollageeni sünteesile roti südame fibroblastides. Hüpertensioon, 37 (3), 827-832. https://doi.org/10.1161/01.hyp.37.3.827 https:// pubmed.ncbi.nlm.nih.gov/11244003/
- Liu, Y.-H., D'Ambrosio, M., Liao, T.-D., Peng, H., Rhaleb, N.-E., Sharma, U., André, S., Gabius, H.-J. ja Carretero, O. A. (2009). N-atsetüül-serüül-aspartüül-lüsüül-proliin takistab imetajate adhesiivsust/kasvu reguleeriva lektiini galektiin-3 poolt esile kutsutud südame remodelleerimist ja düsfunktsiooni. American Journal of Physiology-Heart and Circulatory Physiology, 296(2), H404-H412. https://doi.org/ 10.1152/ajpheart.00747.2008 https://pubmed.ncbi.nlm.nih.gov/19098114/
- Rhaleb, N. E., Peng, H., Yang, X. P., Liu, Y. H., Mehta, D., Ezan, E. ja Carretero, O. A. (2001). N-atsetüül-serüül-aspartüül-lüsüül-proliini pikaajaline mõju vasaku vatsakese kollageeni ladestumisele rottidel, kellel on hüpertensioon, mis on põhjustatud kahe neeru kahjustusest ja ühe neeru sulgemisest. Ringlus, 103(25), 3136-3141. https://doi.org/ 10.1161/01.cir.103.25.3136 https://pubmed.ncbi.nlm.nih.gov/11425781/
- Cavasin M. A. (2006). Tümosiin beeta4 ja selle N-atsetüül-serüül-aspartüül-lysüül-proliini (Ac-SDKP) derivaadi terapeutiline potentsiaal südame ravis pärast müokardiinfarkti. American journal of cardiovascular drugs : ravimid, seadmed ja muud sekkumised, 6(5), 305-311. https://doi.org/ 10.2165/00129784-200606050-00003 https://pubmed.ncbi.nlm.nih.gov/17083265/
- Rhaleb, N. E., Pokharel, S., Sharma, U. C., Peng, H., Peterson, E., Harding, P., Yang, X. P. ja Carretero, O. A. (2013). N-atsetüül-Ser-Asp-Lys-Pro inhibeerib maatriksi metalloproteinaasi aktiveerimist interleukiin-1β poolt südame fibroblastides. Pflügers Archiv - European Journal of
Füsioloogia, 465(10), 1487-1495. https://doi.org/10.1007/s00424-013-1262-8 https:// pubmed.ncbi.nlm.nih.gov/23652767/
- Nakagawa, P., Liu, Y., Liao, T. D., Chen, X., González, G. E., Bobbitt, K. R., Smolarek, D., Peterson, E. L., Kedl, R., Yang, X. P., Rhaleb, N. E. ja Carretero, O. A. (2012). N-atsetüül-serüül-aspartüül-lüsüül-proliini ravi takistab rottidel eksperimentaalset autoimmuunset müokardiiti. American Journal of Physiology-Heart and Circulatory Physiology, 303(9), H1114-H1127. https:// doi.org/10.1152/ajpheart.00300.2011 https://pubmed.ncbi.nlm.nih.gov/22923621/
- González, G. E., Rhaleb, N. E., Nakagawa, P., Liao, T. D., Liu, Y., Leung, P., Dai, X., Yang, X. P. ja Carretero, O. A. (2014). N-atsetüül-serüül-aspartüül-lüsüül-proliin vähendab südame kollageeni ristseotust ja põletikku angiotensiin II-indutseeritud hüpertensiivsetel rottidel. Kliiniline teadus, 126(1), 85-
- Peng, H., Xu, J., Yang, X. P., Kassem, K. M., Rhaleb, I. A., Peterson, E. ja Rhaleb, N. E. (2019). N-atsetüül-serüül-aspartüül-lysüül-proliini ravi kaitseb südant ülemäärase müokardi kahjustuse ja südamepuudulikkuse eest hiirtel. Canadian Journal of Physiology and Pharmacology, 97(8), 753-765. https://doi.org/10.1139/cjpp-2019-0047. https://doi.org/10.1139/cjpp-2019-0047 https://pubmed.ncbi.nlm.nih.gov/30998852/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Perego, C., Perego, L., Mancini, M., Leopizzi, M., Corradi, B., Perlini, S., Zerbini, G. ja Stella, A. (2009). Müokardi fibroosi ennetamine N-atsetüül-serüül-aspartüül-lüsüül-proliini abil diabeetilistel rottidel. Kliiniline teadus, 118(3), 211-220. https:// doi.org/10.1042/cs20090234 https://pubmed.ncbi.nlm.nih.gov/20310083/
- Sharma, U. C., Sonkawade, S. D., Baird, A., Chen, M., Xu, S., Sexton, S., Singh, A. K., Groman, A., Turowski, S. G., Spernyak, J. A., Mahajan, S. D. ja Pokharel, S. (2018). Uue Ac-SDKP peptiidi mõju kiiritusest põhjustatud koronaaride endoteeli kahjustusele ja müokardi rahulikule verevoolule. Kardioonkoloogia, 4, 8. https://doi.org/10.1186/s40959-018-0034-1 https:// pubmed.ncbi.nlm.nih.gov/31057947/
- Suhail, H., Peng, H., Matrougui, K. ja Rhaleb, N. E. (2024). Ac-SDKP leevendab ER-stressi stimuleeritud kollageeni tootmist südame fibroblastides CHOP-i poolt vahendatud NF-κB ekspressiooni inhibeerimise kaudu. Frontiers in Pharmacology, 15, 1352222. https://doi.org/10.3389/fphar.2024.1352222 https://pubmed.ncbi.nlm.nih.gov/38495093/
- Zhu, L., Yang, X. P., Janic, B., Rhaleb, N. E., Harding, P., Nakagawa, P., Peterson, E. L. ja Carretero, O. A. (2016). Ac-SDKP pärsib TNF-α-indutseeritud ICAM-1 ekspressiooni endoteelirakkudes IκB kinaasi ja NF-κB aktiveerimise inhibeerimise kaudu. American Journal of Physiology-Heart and Circulatory Physiology, 310(9), H1176-H1183. https://doi.org/10.1152/ajpheart.00252.2015 https://pubmed.ncbi.nlm.nih.gov/26945075/
- Lin, C. X., Rhaleb, N. E., Yang, X. P., Liao, T. D., D'Ambrosio, M. A. ja Carretero, O. A. (2008). Aordi fibroosi ennetamine N-atsetüül-serüül-aspartüül-lüsüül-proliini abil angiotensiin II-indutseeritud hüpertensiooni korral. American Journal of Physiology-Heart and Circulatory Physiology, 295(3), H1253-H1261. https://doi.org/10.1152/ajpheart.00481.2008 https://pubmed.ncbi.nlm.nih.gov/18641275/
- Sharma, U. C., Sonkawade, S. D., Spernyak, J. A., Sexton, S., Nguyen, J., Dahal, S., Attwood, K. M., Singh, A. K., van Berlo, J. H. ja Pokharel, S. (2018). Väike peptiid Ac-SDKP inhibeerib
kiiritusest põhjustatud kardiomüopaatia. Circulation: südamepuudulikkus, 11(8), e004867. https://doi.org/ 10.1161/CIRCHEARTFAILURE.117.004867 https://pubmed.ncbi.nlm.nih.gov/30354563/
- Conte, E., Iemmolo, M., Fruciano, M., Fagone, E., Gili, E., Genovese, T., Esposito, E., Cuzzocrea, S. ja Vancheri, C. (2015). Tümosiin β4 ja selle N-terminaalse fragmendi Ac-SDKP mõju TGF-β-ga töödeldud inimese kopsufibroblastidele ja bleomütsiinist põhjustatud kopsufibroosi hiire mudelis. Bioloogilise ravi ekspertarvamus, 15(Suppl 1), S211-S221. https://doi.org/ 10.1517/14712598.2015.1026804 https://pubmed.ncbi.nlm.nih.gov/26098610/
- Liu, S., Jin, R., Zheng, G., Wang, Y., Li, Q., Jin, F., Li, Y., Li, T., Mao, N., Wei, Z., Li, G., Fan, Y.,
Xu, H., Li, S. ja Yang, F. (2023). Ac-SDKP soodustab KIF3A-vahendatud β-kateniini inhibeerimist tsiliaarse mehhanismi kaudu, et piirata ränidioksiidist põhjustatud epiteeli-müofibroblastilist transformatsiooni. Biomeditsiin ja farmakoteraapia, 166, 115411. https://doi.org/10.1016/j.biopha.2023.115411 https://pubmed.ncbi.nlm.nih.gov/37651800/
- Cai, J., Chen, Q., Mehrabi Nasab, E. ja Athari, S. S. (2022). N-atsetüül-serüül-aspartüül-proliini ja vasoaktiivse soolepeptiidi immunomoduleeriv mõju kroonilise obstruktiivse kopsuhaiguse patofüsioloogiale. Fundamentaalne ja kliiniline farmakoloogia, 36(6), 1005-1010. https:// doi.org/10.1111/fcp.12811 https://pubmed.ncbi.nlm.nih.gov/35763864/
- Wang, J., Qian, Y., Gao, X., Mao, N., Geng, Y., Lin, G., Zhang, G., Li, H., Yang, F. ja Xu, H. (2020). Uue Ac-SDK (biotiin) proliinpeptiidi süntees ja identifitseerimine, mis võib indutseerida silikoosi all kannatavatel rottidel fibrootilist toimet. Ravimite kavandamine, väljatöötamine ja ravi, 14, 4315–4326. https://doi.org/10.2147/DDDT.S262716 https://pubmed.ncbi.nlm.nih.gov/33116418/
- Conte, E., Fagone, E., Gili, E., Fruciano, M., Iemmolo, M., Pistorio, M. P., Impellizzeri, D., Cordaro, M., Cuzzocrea, S., & Vancheri, C. (2016). N-terminaalse tümosiini β4-fragmendi Ac-SDKP ennetav ja terapeutiline toime bleomütsiini poolt põhjustatud kopsufibroosi mudelis. Oncotarget, 7(23), 33841-33854. https://doi.org/10.18632/oncotarget.8409 https:// pubmed.ncbi.nlm.nih.gov/27029074/
- Cao, W., Yao, S. S., Gong, H. B., Zhu, L. Y., Miao, Z. Y. ja Deng, H. J. (2022). Ac-SDKP regulatiivne mõju fosforüülitud soojusšokivalku 27/SNAI1 rajale silikoosiga rottidel. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 40(2), 90-96. https://doi.org/10.3760/ cma.j.cn121094-20201218-00702 https://pubmed.ncbi.nlm.nih.gov/35255573/
- Gong, H. B., Zhang, C. M., Tang, X. Y., Gong, R. B., Miao, Z. Y. ja Deng, H. J. (2023). Metaanalüüs kopsufibroosi inhibeerimise kohta Ac-SDKP poolt loomamudelites. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing aadressile Zhi, 41 (4), 262-270. https://doi.org/10.3760/ cma.j.cn121094-20211115-00565 https://pubmed.ncbi.nlm.nih.gov/37248179/
- Li, Q., Yang, F., Zhang, L.-J., Yan, J.-B., Chen, P., Li, D.-D. ja Wu, K.-F. (2009). [N-atsetüül-serüül-aspartüül-lüsüül-proliini fibrootilist toimet transformatsioonilise kasvufaktori beeta ja sidekoe kasvufaktori ekspressiooni reguleerimise kaudu silikoosiga rottidel]. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 27(7), 390-394. PMID: 20039536 https:// pubmed.ncbi.nlm.nih.gov/20039536/
28.Yan, J.-B., Zhang, L.-J. ja Li, Q. (2008). [N-atsetüül-serüül-aspartüül-lysüül-proliini antifibrootiline toime silikoosiga rottide kopsudes]. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 26(7), 401-405. PMID: 19080377 https://pubmed.ncbi.nlm.nih.gov/19080377/
- Jin, F., Geng, F., Xu, D., Li, Y., Li, T., Yang, X., Liu, S., Zhang, H., Wei, Z., Li, S., Gao, X., Cai, W.,
Mao, N., Yi, X., Liu, H., Sun, Y., Yang, F. ja Xu, H. (2021). Ac-SDKP leevendab kopsumakrofaagide ja luu osteoklastide aktiveerimist ränidioksiidiga kokkupuutunud rottidel, inhibeerides TLR4 ja RANKLi signaaliradu. Journal of Inflammation Research, 14, 1647-1660. https://doi.org/10.2147/ JIR.S306883 https://pubmed.ncbi.nlm.nih.gov/33948088/
- Xu, H., Yang, F., Sun, Y., Yuan, Y., Cheng, H., Wei, Z., Li, S., Cheng, T., Brann, D. ja Wang, R. (2012). Ac-SDKP uudne fibrootilise toime sihtmärk: müofibroblastide diferentseerumise pärssimine silikoosiga rottide kopsudes. PLoS One, 7(7), e40301. https://doi.org/10.1371/journal.pone.0040301 https:// pubmed.ncbi.nlm.nih.gov/22802960/
- Wang, X., Liu, Y., Xu, H., Zhang, X., Li, S., Xu, D., Gao, X., Zhang, L., Zhang, B., Wei, Z., Wang, R., Brann, D. ja Yang, F. (2016). N-atsetüül-serüül-aspartüül-lüsüül-proliini (Ac-SDKP) poolt reguleeritud α-tubuliin avaldab antifibrootilist toimet ränioksiidi põhjustatud roti kopsufibroosil. Teaduslikud aruanded, 6, 32257. https://doi.org/10.1038/srep32257 https://pubmed.ncbi.nlm.nih.gov/27577858/
- Deng, H., Xu, H., Zhang, X., Sun, Y., Wang, R., Brann, D. ja Yang, F. (2016). Ac-SDKP kaitsev mõju follikulaarsetele epiteelirakkudele TGF-β1/ROCK1 raja vahendusel toimuva EMT inhibeerimise kaudu silikoosi korral rottidel. Toksikoloogia ja rakendusfarmakoloogia, 294, 1-10. https://doi.org/10.1016/ j.taap.2016.01.010 https://pubmed.ncbi.nlm.nih.gov/26785300/
- Zhang, L., Xu, D., Li, Q., Yang, Y., Xu, H., Wei, Z., Wang, R., Zhang, W., Liu, Y., Geng, Y., Li, S., Gao, X. ja Yang, F. (2018). N-atsetüül-serüül-aspartüül-lüsüül-proliin (Ac-SDKP) leevendab silikootilist fibroosi, inhibeerides II tüüpi alveolaarepiteelirakkude apoptoosi endoplasmilise retikulumi stressi vahendamise kaudu. Toksikoloogia ja rakendusfarmakoloogia, 350, 1-10. https://doi.org/10.1016/ j.taap.2018.04.025 https://pubmed.ncbi.nlm.nih.gov/29684394/
- Nakagawa, P., Masjoan-Juncos, J. X., Basha, H., Janic, B., Worou, M. E., Liao, T. D., Romero, C. A., Peterson, E. L. ja Carretero, O. A. (2017). N-atsetüül-serüül-aspartüül-lüsüül-proliini mõju vererõhule, neerukahjustusele ja suremusele süsteemse erütematoosse luupuse korral. Füsioloogilised aruanded, 5(2), e13084. https://doi.org/10.14814/phy2.13084 https://pubmed.ncbi.nlm.nih.gov/ 28126732/
- Worou, M. E., Liao, T. D., D'Ambrosio, M., Nakagawa, P., Janic, B., Peterson, E. L., Rhaleb, N. E. ja Carretero, O. A. (2015). N-atsetüül-serüül-aspartüül-lüsüül-proliini kaitsev mõju Dahli soolatundlike rottide neerudele. Hüpertensioon, 66(4), 816-822. https://doi.org/10.1161/ HYPERTENSIONAHA.115.05970 https://pubmed.ncbi.nlm.nih.gov/26324505/
- Liao, T. D., Nakagawa, P., Janic, B., D'Ambrosio, M., Worou, M. E., Peterson, E. L., Rhaleb, N. E., Yang, X. P. ja Carretero, O. A. (2015). N-Acetyl-Seryl-Aspartyl-Lysyl-Proline: neerukaitse mehhanismid süsteemse erütematoosse luupuse hiire mudelis. American Journal of Füsioloogia-Renaalne füsioloogia, 308 (10), F1146-F1154. https://doi.org/10.1152/ajprenal.00039.2015 https://pubmed.ncbi.nlm.nih.gov/25740596/
37. Rhaleb, N. E., Pokharel, S., Sharma, U. ja Carretero, O. A. (2011). N-atsetüül-Ser-Asp-Lys-Pro neeru kaitsev toime deoksükortikosteroonatsetaat-soola poolt põhjustatud hüpertensiivsetel hiirtel. Journal of Hypertension, 29(2), 330-338. https://doi.org/10.1097/HJH.0b013e32834103ee https:// pubmed.ncbi.nlm.nih.gov/21052020/ pubmed.ncbi.nlm.nih.gov/21052020/
- Shibuya, K., Kanasaki, K., Isono, M., Sato, H., Omata, M., Sugimoto, T., Araki, S., Isshiki, K., Kashiwagi, A., Haneda, M. ja Koya, D. (2005). N-atsetüül-serüül-aspartüül-lüsüül-proliin takistab neerupuudulikkust ja mesangiaalse maatriksi proliferatsiooni db/db-hiirtel, kellel on diabeet. Diabeet, 54(3), 838-845. https://doi.org/10.2337/diabetes.54.3.838. https://pubmed.ncbi.nlm.nih.gov/15734863/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Preziuso, C., Leopizzi, M., Maestroni, S., Corradi, B., Zerbini, G. ja Stella, A. (2013). N-atsetüül-serüül-aspartüül-lysüül-proliini fibrootilistest toimetest neerudele diabeetilistel rottidel. American Journal of Nephrology, 37(1), 65-73. https://doi.org/10.1159/000346116 https://pubmed.ncbi.nlm.nih.gov/23327833/
- Zhang, R., Hu, Z., Wang, Y., Qiu, R., Wang, G., Wang, L. ja Hu, B. (2022). Biomimeetiline topeltvõrguga hüdrogeel leevendab neerufibroosi ja soodustab neerude regenereerimist. Journal of Materjalide keemia B, 10 (45), 9424-9437. https://doi.org/10.1039/d2tb01939f https:// pubmed.ncbi.nlm.nih.gov/36378134/
- Zuo, Y., Chun, B., Potthoff, S. A., Kazi, N., Brolin, T. J., Orhan, D., Yang, H.-C., Ma, L.-J., Kon, V., Myöhänen, T., Rhaleb, N.-E., Carretero, O. A. ja Fogo, A. B. (2013). Thymosin β4 ja selle laguprodukt Ac-SDKP on uudsed remonditegurid neerufibroosi korral. Kidney International, 84(6), 1166-1175. https://doi.org/10.1038/ki.2013.209. https://doi.org/10.1038/ki.2013.209 https://pubmed.ncbi.nlm.nih.gov/23739235/
- Wang, M., Liu, R., Jia, X., Mu, S. ja Xie, R. (2010). N-atsetüül-serüül-aspartüül-lüsüül-proliin leevendab neerupõletikku ja tubulointerstitsiaalset fibroosi rottidel. Rahvusvaheline molekulaarajakiri Meditsiin, 26 (6), 795-801. https://doi.org/10.3892/ijmm_00000527 https:// pubmed.ncbi.nlm.nih.gov/21042772/
- Liao, T.-D., Yang, X.-P., D'Ambrosio, M., Zhang, Y., Rhaleb, N.-E. ja Carretero, O. A. (2010). N-atsetüül-serüül-aspartüül-lüsüül-proliin leevendab neerukahjustusi ja neerufunktsiooni häireid hüpertensiivsetel rottidel, kellel on vähenenud neerumass: Hüpertensiooni uurimisnõukogu. Hüpertensioon, 55(2), 459-467. https://doi.org/10.1161/HYPERTENSIONAHA.109.144568 https://pubmed.ncbi.nlm.nih.gov/ 20026760/
- Peng, H., Carretero, O. A., Raij, L., Yang, F., Kapke, A. ja Rhaleb, N. E. (2001). N-atsetüül-serüül-aspartüül-lüsüül-proliini antifibrootiline toime südamele ja neerudele aldosteroon-soola poolt põhjustatud hüpertensiivsetel rottidel. Hüpertensioon, 37(2 Pt 2), 794-800. https://doi.org/10.1161/01.hyp.37.2.794 https:// pubmed.ncbi.nlm.nih.gov/11230375/
- Omata, M., Taniguchi, H., Koya, D., Kanasaki, K., Sho, R., Kato, Y., Kojima, R., Haneda, M. ja Inomata, N. (2006). N-atsetüül-serüül-aspartüül-lüsüül-proliin leevendab neerufunktsiooni häire ja fibroosi progresseerumist WKY rottidel, kellel on väljakujunenud glomerulonefriit. Journal of the American Society of Nephrology, 17(3), 674-685. https://doi.org/10.1681/ ASN.2005040385 https://pubmed.ncbi.nlm.nih.gov/16452498/
- Nagai, T., Kanasaki, M., Srivastava, S. P., Nakamura, Y., Ishigaki, Y., Kitada, M., Shi, S., Kanasaki, K. ja Koya, D. (2014). N-atsetüül-serüül-aspartüül-lüsüül-proliin pärsib diabeediga seotud
diabeediga seotud neerufibroos ja endoteeli-mesenšümaatiline üleminek. BioMed Research International, 2014, 696475. https://doi.org/10.1155/2014/696475 https://pubmed.ncbi.nlm.nih.gov/24783220/
- Srivastava, S. P., Goodwin, J. E., Kanasaki, K. ja Koya, D. (2020). Metaboolne ümberprogrammeerimine N-atsetüül-serüül-aspartüül-lysüül-proliiniga kaitseb diabeetilise neeruhaiguse eest. Briti Teataja farmakoloogia, 177 (16), 3691-3711. https://doi.org/10.1111/bph.15087 https:// pubmed.ncbi.nlm.nih.gov/32352559/
- Carde, P., Chastang, C., Goncalves, E., Mathieu-Tubiana, N., Vuillemin, E., Delwail, V., Corbion, O., Vekhoff, A., Isnard, F., Ferrero, J. M., et al. (1992). [Seraspenid (atsetüülSDKP): Aracycline and ifosfamide monochemotherapy (Aracycline and ifosfamide monochemotherapy) toksilisuse eest kaitsva hematopoeetilise inhibiitori I-II faasi kliiniline uuring]. Kliiniline uuring C R Acad Sci III, 315(13), 545-550. PMID: 1300237 https:// pubmed.ncbi.nlm.nih.gov/1300237/
- Cappelaere, P., Hecquet, B., Rolland, F., Meeus, L., Domenge, C., Krakowski, I., De Gislain, C., Chauvergne, J., Dufour-Esquerré, F., Carde, P. (1995). [Randomiseeritud platseebouuring luuüdi kaitsmise kohta goralatidiga patsientidel, kellel on ülemiste hingamisteede ja seedetrakti või söögitoru plaatoonrakuline kartsinoom, mida ravitakse karboplatiini ja fluorouratsiili kombinatsiooniga]. Bull Cancer, 82(9), 732-737. PMID: 8535033 https://pubmed.ncbi.nlm.nih.gov/8535033/
- Nitta, K., Shi, S., Nagai, T., Kanasaki, M., Kitada, M., Srivastava, S. P., Haneda, M., Kanasaki, K. ja Koya, D. (2016). N-atsetüül-serüül-aspartüül-lüsüül-proliini suukaudne manustamine parandab terapeutilise skeemi abil neeruhaigust 1. ja 2. tüüpi diabeediga hiirtel. BioMed Research Rahvusvaheline, 2016 , 9172157 . https://doi.org/10.1155/2016/9172157 https:// pubmed.ncbi.nlm.nih.gov/27088094/
- Tan, H., Zhao, J., Wang, S., Zhang, L., Wang, H., Huang, B., Liang, Y., Yu, X. ja Yang, N. (2012). Ac-SDKP leevendab lupuse nefriidi progresseerumist MRL/lpr-hiirtel. Rahvusvaheline immunofarmakoloogia, 14(4), 401–409. https://doi.org/10.1016/j.intimp.2012.07.023https:// pubmed.ncbi.nlm.nih.gov/22922317/
- Maheshwari, M., Romero, C. A., Monu, S. R., Kumar, N., Liao, T. D., Peterson, E. L. ja Carretero,
O. A. (2018). N-atsetüül-serüül-aspartüül-lysüül-proliini (Ac-SDKP) neeru kaitsev toime rasvunud rottidel kõrge soolasisaldusega dieedil. American Journal of Hypertension, 31(8), 902-909. https://doi.org/ 10.1093/ajh/hpy052 https://pubmed.ncbi.nlm.nih.gov/29722788/
- Kamarehei, M., & Zahednasab, H. (2025). Ac-SDKP peptiidi neuroprotektiivne toime SH-SY5Y rakkudes ja Parkinsoni tõve roti mudelis 6-OHDA-indutseeritud oksüdatiivse stressi ja ER-stressi vastu. Neuropeptiidid, 112, 102534. https://doi.org/10.1016/j.npep.2025.102534 https:// pubmed.ncbi.nlm.nih.gov/40544680/
- Hashemizadeh, S., Pourkhodadad, S., Hosseindoost, S., Pejman, S., Kamarehei, M., Badripour, A., Omidi, A., Pestehei, S. K., Seifalian, A. M. ja Hadjighassem, M. (2022). Ac-SDKP peptiid parandab funktsionaalset taastumist pärast seljaaju vigastust prekliinilises mudelis. Neuropeptiidid, 92, 102228. https://doi.org/10.1016/j.npep.2022.102228 https://pubmed.ncbi.nlm.nih.gov/ 35101843/
- Zhang, Y., Zhang, Z. G., Chopp, M., Meng, Y., Zhang, L., Mahmood, A. ja Xiong, Y. (2017). Traumaatilise ajukahjustuse ravi rottidel N-atsetüül-serüül-aspartüül-lüsüül-proliiniga. Journal of
Neurokirurgia, 126(3), 782-795. https://doi.org/10.3171/2016.3.JNS152699 http:// pubmed.ncbi.nlm.nih.gov/28245754/
- Pejman, S., Kamarehei, M., Riazi, G., Pooyan, S. ja Balalaie, S. (2020). Ac-SDKP leevendab eksperimentaalse autoimmuunse entsefalomüeliidi progresseerumist, pärssides ER ja oksüdatiivset stressi C57BL/6 hiirte hipokampuses. Brain Research Bulletin, 154, 21–31. https://doi.org/10.1016/j.brainresbull.2019.09.014 https://pubmed.ncbi.nlm.nih.gov/31589901/
- Zhang, L., Chopp, M., Teng, H., Ding, G., Jiang, Q., Yang, X. P., Rhaleb, N. E. ja Zhang, Z. G. (2014). N-atsetüül-serüül-aspartüül-lüsüül-proliini ja koeplasminogeeni aktivaatori kombineeritud ravi annab rottidel pärast insulti tugevat neuroprotektsiooni. Insult, 45(4), 1108-1114. https:// doi.org/10.1161/STROKEAHA.113.004399 https://pubmed.ncbi.nlm.nih.gov/24549864/
- Kim, D. H., Moon, E.-Y., Yi, J. H., Lee, H. E., Park, S. J., Ryu, Y.-K., Kim, H.-C., Lee, S. ja Ryu, J.
H. (2015). Thymosin β4 peptiidifragment suurendab neurogeneesi hipokampuses ja hõlbustab ruumilist mälu. Neuroteadus, 310, 51-62. https://doi.org/10.1016/j.neuroscience.2015.09.017 https://pubmed.ncbi.nlm.nih.gov/26363149/
- Wei, A., Zhao, F., Hao, A., Liu, B. ja Liu, Z. (2022). N-atsetüül-serüül-aspartüül-lüsüül-proliin (AcSDKP) leevendab maksafibroosi WTAP/m6A/Ptch1-telje kaudu Hedgehogi raja kaudu. Gene, 813, 146125. https://doi.org/10.1016/j.gene.2021.146125 https://pubmed.ncbi.nlm.nih.gov/34921949/
- Zhang, L., Xu, L. M., Chen, Y. W., Ni, Q. W., Zhou, M., Qu, C. Y. ja Zhang, Y. (2012). N-atsetüül-serüül-aspartüül-lüsüül-proliini antifibrootiline toime maksafibroosile, mis on esile kutsutud sapiteede ligatsiooni poolt rottidel. World Journal of Gastroenterology, 18(37), 5283-5288. https://doi.org/10.3748/wjg.v18.i37.5283 https://pubmed.ncbi.nlm.nih.gov/23066324/
- Chen, Y. W., Liu, B. W., Zhang, Y. J., Chen, Y. W., Dong, G. F., Ding, X. D., Xu, L. M., Pat, B.,
Fan, J. G. ja Li, D. G. (2010). AcSDKP baastaseme säilitamine leevendab süsiniktetrakloriidist põhjustatud maksafibroosi rottidel. Journal of Hepatology, 53(3), 528-536. https://doi.org/10.1016/ j.jhep.2010.03.027 https://pubmed.ncbi.nlm.nih.gov/20646773/
- Ameri, Z., Shahabi, A., Farsinejad, A., Sattarzadeh Bardsiri, M., Javedani, H., Bagher, Z., Saraee, A. ja Brouki Milan, P. (2025). N-atsetüül-serüül-aspartüül-lüsüül-proliinpeptiidi sisaldav tselluloosipõhine adhesiivne hüdrogeel haavade paranemise kiirendamiseks ja armistumise vältimiseks in vivo küüliku kõrvaarengumudelis. International Journal of Biological Macromolecules, 322(Pt 1), 144981. https:// doi.org/10.1016/j.ijbiomac.2025.144981 https://pubmed.ncbi.nlm.nih.gov/40480579/
- Fromes, Y., Liu, J. M., Kovacevic, M., Bignon, J. ja Wdzieczak-Bakala, J. (2006). Atsetüül-seriin-asparaginüül-lüsiin-proliin tetrapeptiid parandab nahalappide ellujäämist ja kiirendab haavade paranemist. Haava parandamine ja Taastumine, 14 (3), 306-312. https://doi.org/10.1111/ j.1743-6109.2006.00125.x https://pubmed.ncbi.nlm.nih.gov/16808809/
- Massé, A., Ramirez, L. H., Bindoula, G., Grillon, C., Wdzieczak-Bakala, J., Raddassi, K., Deschamps de Paillette, E., Mencia-Huerta, J. M., Koscielny, S., Potier, P., Sainteny, F. ja Carde,
P. (1998). Atsetüül-N-Ser-Asp-Lys-Pro tetrapeptiid (goralatid) kaitseb doksorubitsiini põhjustatud toksilisuse eest: hiirte elulemuse paranemine ja luuüdi tüvi- ja eelkoorirakkude kaitse. Veri, 91(2), 441-449. PMID: 9427696 https://pubmed.ncbi.nlm.nih.gov/9427696/
65. Ramasamy, V., Ntsekhe, M. ja Sturrock, E. (2021). N-atsetüül-serüül-aspartüül-lüsüül-proliini järjestusega peptiidide fibrosioonivastase potentsiaali uurimine. Kliiniline ja eksperimentaalne farmakoloogia ja füsioloogia, 48(11), 1558-1565. https://doi.org/10.1111/1440-1681.13565 https:// pubmed.ncbi.nlm.nih.gov/34347311/ pubmed.ncbi.nlm.nih.gov/34347311/
- Leeanansaksiri, W., DeSimone, S. K., Huff, T., Hannappel, E. ja Huff, T. F. (2004). Thymosin beta
4 ja selle N-terminaalne tetrapeptiid AcSDKP pärsivad proliferatsiooni ja indutseerivad düsplastilisi, mitteapoptootilisi tuumasid ja nuumrakkude degranulatsiooni. Keemia ja bioloogiline mitmekesisus, 1(7), 1091–1100. https://doi.org/10.1002/cbdv.200490081 https://pubmed.ncbi.nlm.nih.gov/17191900/