


문헌에 근거한 티모신 베타 단편 4 (1-4)(Ac-SDKP)의 잠재적 효과에 대한 설명입니다. (제품 설명이 아니며, 페이지 하단의 고지 사항 참조)
Ac-SDKP(N-아세틸 세릴 아스파틸 리실 프롤린)는 티모신 β4라는 다른 천연 단백질에서 파생된 매우 작은 단백질 조각입니다. 체내에서는 특수 효소가 티모신 β4를 작은 조각으로 자르고, 이 과정의 결과 중 하나가 Ac-SDKP입니다[1]. 이 작은 분자는 부상이나 질병 후 딱딱한 조직이 너무 많이 쌓일 때 발생하는 흉터(섬유화)로부터 장기를 보호하는 데 도움이 되기 때문에 중요합니다. 문제는 Ac-SDKP가 체내에서 오래 지속되지 않는다는 것입니다.
- 는 ACE(안지오텐신 전환 효소)라는 효소에 의해 빠르게 분해됩니다. 흥미롭게도 ACE 차단 약물(예: 일부 고혈압 치료제)은 Ac-SDKP 수치를 최대 5배까지 증가시켜 보호 효과를 강화할 수 있습니다[1].
처음에 과학자들은 Ac-SDKP의 주요 역할이 혈액 줄기세포가 너무 빨리 성장하는 것을 막는 것이라고 생각했습니다. 하지만 최근 연구에 따르면 Ac-SDKP의 더 큰 역할은 조직 치유와 보호에 있다고 합니다. 심장, 폐, 간, 신장과 같은 장기에서 흉터 조직의 과도한 증식을 막는 데 도움이 됩니다. 예를 들어, 세포가 콜라겐(흉터의 주요 단백질)을 너무 많이 생성하게 하는 특정 신호의 활동을 줄이고 복구 세포(섬유아세포)가 흉터를 형성하는 세포로 변하는 것을 방지합니다. 신장 질환의 경우 Ac-SDKP는 진정한 가능성을 보여줍니다. 신장이 더 잘 기능하도록 도울 뿐만 아니라 너무 많은 면역 세포의 접근을 차단하고 일반적으로 손상을 악화시키는 유해한 과정을 완화하여 흉터를 줄입니다. 요컨대, Ac-
SDKP는 신체에서 자연적인 '흉터 방지' 및 '조직 보호' 분자로 작용합니다. 치유를 촉진하고 염증을 줄이며 흉터와 조직 손상이 중요한 역할을 하는 질병의 치료에 유용할 수 있습니다.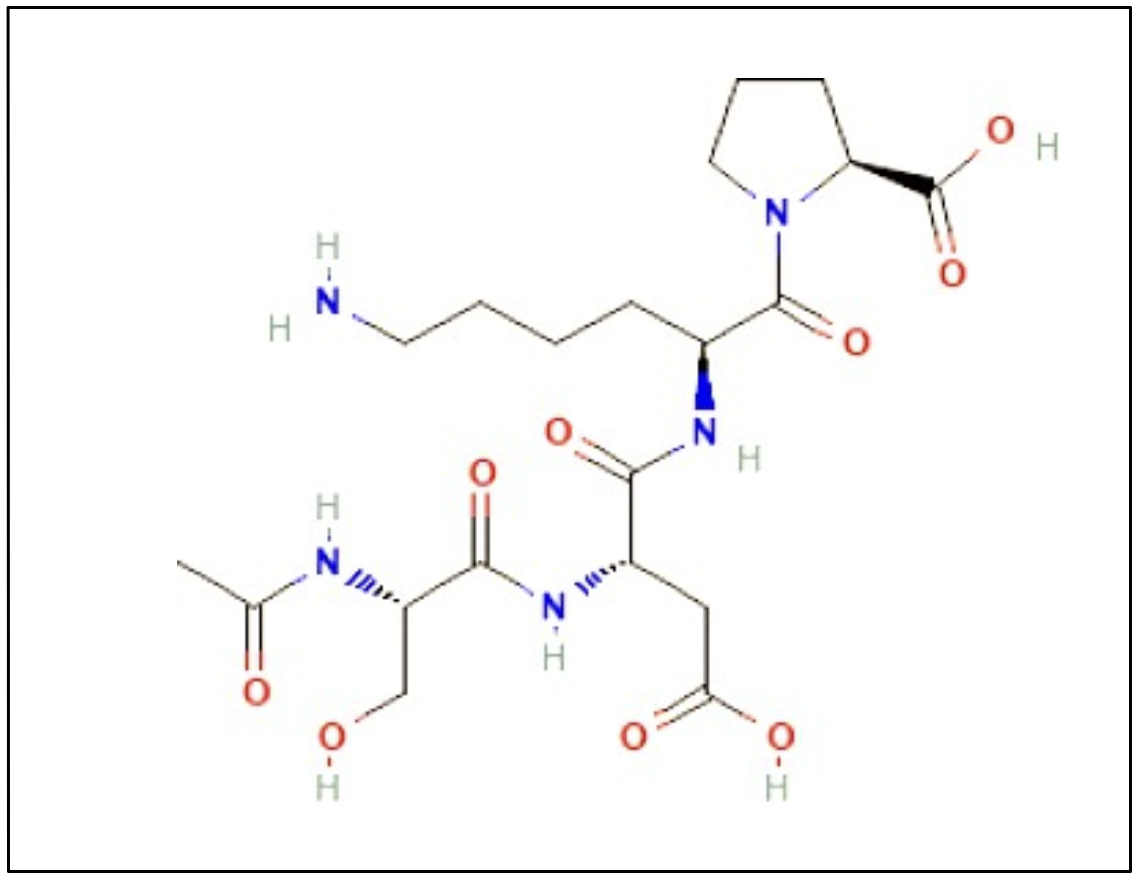
Ac-SDKP는 심장을 보호합니다(동물 연구 결과 기준).
여러 과학적 연구에서 Ac-SDKP가 응급 상황과 장기적인 문제 모두에서 심장 건강에 미치는 잠재력을 설명했습니다. 심근경색 마우스 모델에서 나카가와 등은 소형 피하 펌프를 통해 1.6 mg/kg/일의 용량으로 Ac-SDKP를 투여한 결과 심장벽 파열(심장 파열)이 51.0%에서 27.3%로 감소하고 사망률이 56.9%에서 31.8%로 감소하는 등 명확한 이점을 발견했습니다. 이 펩타이드는 손상을 악화시킬 수 있는 '최초 도우미' 면역 세포(M1 대식세포)를 진정시키는 동시에 도움이 되는 복구 대식세포(M2)나 호중구는 변화시키지 않는 방식으로 작용하는 것으로 나타났습니다. 또한 경색 후 심장 조직을 분해하는 효소(MMP-9)의 작용을 늦추는 반면 다른 마커(MPO)는 변하지 않아 표적화된 의도적인 작용을 시사했습니다[2]. 장기간의 고혈압으로 인한 심장 흉터의 경우, Peng 등은 Ac-SDKP가 흉터 조직을 예방할 뿐만 아니라 기존 흉터 조직을 감소시킬 수 있음을 보여주었습니다. 잘 확립된 고혈압 모델을 가진 쥐에게 8주 동안 매일 400-800 µg/kg(피하)의 용량으로 Ac-SDKP를 투여한 결과, 용량 의존적으로 흉터의 주요 징후인 심장 내 콜라겐의 양이 감소했습니다(고용량이 더 효과적이었음). 혈압 자체는 떨어지지 않았고 안지오텐신 I과 브라디키닌에 대한 정상적인 반응은 영향을 받지 않았기 때문에 혈압 감소로 인한 이점만 있는 것은 아니었습니다. Ac-SDKP의 혈중 농도는 2~5배 증가했으며, 심장의 주요 '흉터 유발' 신호(TGF-β 및 CTGF)가 감소하여 직접적인 흉터 방지 효과가 확인되었습니다[3].
심근경색 후 지속적인 부종과 흉터는 심부전으로 이어질 수 있습니다. Yang 등은 초기(손상을 예방하기 위해)와 후기(손상을 되돌리기 위해)에 Ac-SDKP를 테스트했습니다. 두 경우 모두 총 심장 콜라겐 함량이 감소했습니다(예: 예방 그룹은 ~24에서 ~15 µg/mg으로, 치료 그룹은 ~23에서 ~15 µg/mg으로).
반전 그룹의 경우 ~14 µg/mg). 면역 세포의 해로운 축적도 감소하여 각 그룹에서 대식세포가 약 3분의 1로 감소하고 TGF-β 양성 세포도 동시에 감소했습니다. 이러한 효과는 혈압을 낮추거나 심장의 크기를 줄이지 않고도 달성되었으며, 예방 그룹에서는 펌프 능력이 눈에 띄게 개선되지 않았습니다. 그럼에도 불구하고 흉터와 염증이 꾸준히 감소한 것은 시간이 지남에 따라 심장 구조가 개선되었음을 나타냅니다 [4].
Ac-SDKP는 또한 ACE 억제 약물에서 관찰되는 '추가적인' 조직 이점의 일부를 설명할 수 있습니다. Rasoul 등은 안지오텐신 II로 유발된 고혈압 모델을 캡토프릴 또는 Ac-SDKP(400-800 µg/kg/일)를 투여한 그룹과 비교했습니다. 그 결과 혈중 농도가 몇 배나 증가했고, 심장의 세포 비대 감소, 대식세포 및 비만세포 감소, TGF-β 및 CTGF 수치 감소, 콜라겐 축적 감소 등 ACE 억제제와 유사한 여러 보호 특성이 재현되었습니다. 중요한 것은 이러한 효능이 혈압을 낮추거나 심장이 두꺼워지는 것을 감소시키지 않고도 발생한다는 점입니다.
심장 조직에 대한 직접적인 보호 효과 [5]. Ac-SDKP는 세포 수준에서 심장의 흉터 형성을 늦춥니다. 실험실에서 배양한 쥐의 심장 지지 세포(섬유아세포)에 매우 낮은 용량(0.05-100nmol/l)의 Ac-SDKP를 투여한 결과, 세포 성장(DNA 복제)이 약 1nmol/l에서 정상으로 감소하고 강력한 흉터 신호인 엔도텔린-1에 반응하여 생성되는 콜라겐(주요 '흉터' 단백질)이 감소한다는 두 가지 주요 효과를 발견했습니다. 저용량이 콜라겐에 가장 효과적이었으며 고용량은 효과가 떨어졌습니다. 이 펩타이드는 일반적인 세포 신호 스위치(p44/42 MAPK/ERK)를 침묵시키는 것으로 나타났으며, 알려진 MAPK 차단제 역시 동일한 효과를 제공했습니다. 간단히 말해, Ac-SDKP는 섬유아세포가 주요 성장 경로의 활동을 감소시킴으로써 증식과 과도한 흉터 형성을 늦추도록 명령합니다[6].
또한 갈렉틴-3에 의한 손상으로부터 심장을 보호합니다. 성인 쥐를 대상으로 한 연구에서 Liu 등은 갈렉틴-3(염증과 흉터를 유발하는 단백질)를 4주 동안 투여한 결과 염증 세포가 증가하고 심장 벽이 두꺼워지며 혈관 주변과 세포 사이에 흉터가 더 심해지고, TGF-β/Smad3 신호(흉터를 촉진하는 경로) 수준이 높아지고 심장 초음파 검사에서 펌프질이 약해지는 것을 관찰했습니다. Ac-SDKP(800 µg/kg/일)를 추가하면 염증 세포, 심장벽의 흉터 및 비후가 감소하고 심장 기능이 개선되는 등 이러한 변화가 대부분 예방되는 것으로 나타났습니다. 데이터에 따르면 TGF-β/Smad3 '흉터 스위치'를 끄고 염증을 완화하여 심장을 보호하는 것으로 나타났습니다 [7]. 또한 혈압 자체의 변화 없이 장기 고혈압에서 심장 흉터를 감소시킵니다. 랄렙 등은 쥐의 고전적 혈관 모델(신장 2개, 클램프 1개)을 사용하여 Ac-SDKP(400 µg/kg/일, 피하 투여)를 투여했습니다. 혈압과 심장 비대는 여전히 높았지만, 펩타이드로 치료한 결과 심근의 염증 세포와 증식 세포가 모두 현저히 감소했습니다. 중요한 것은 간질성 콜라겐 분획을 정상화하여 고혈압 쥐의 약 10.1%에서 대조군 동물(≈5.3%)과 거의 동일한 수준인 약 5.4%로 줄였다는 점입니다. 즉, 압력 부하가 변하지 않은 상태에서도 해로운 조직 병변이 감소하여 조직 치유에 직접적인 역할을 하는 것으로 나타났습니다 [8]. 또한 Ac-SDKP는 티모신-β4와 함께 심근경색 후 조직 회복을 촉진합니다. Cavasin 등은 내러티브 리뷰에서 티모신-β4가 세포 이동과 생존을 모두 촉진한다는 사실을 발견했습니다. 티모신-β4의 유도체인 Ac-SDKP는 고혈압에서 항섬유화제 역할을 함으로써 추가적인 이점을 제공합니다. 심근경색 모델에서 Ac-SDKP는 흉터 형성을 역전시키고 염증을 감소시키는 것으로 나타났습니다. 또한 생체 내 및 생체 외 연구 모두에서 혈관 신생을 촉진하는 것으로 나타났습니다. 또한 Ac-SDKP는 생쥐의 심장벽 파열 위험을 감소시켜 심혈관 회복에 대한 치료 잠재력을 강조했습니다. Ac-SDKP가 티모신 β4의 치료 효과의 일부를 가지고 있음을 시사하는 많은 이점이 중복됩니다. 그러나 연구자는 이러한 실험실 결과와 동물 연구를 확인하기 위해서는 아직 인간 연구가 필요하다고 언급했습니다 [9].
또한 Ac-SDKP는 IL-1β에 의해 촉발되는 조직 분해 효소의 활성을 감소시킵니다. 성체 쥐 심장 섬유아세포에서 랄렙 등은 염증성 사이토카인인 인터루킨-1β(IL-1β)가 증가한다는 사실을 보여주었습니다,
는 매트릭스 메탈로프로테아제(MMP-2, MMP-9, MMP-13)의 발현을 유의하게 증가시켰습니다. 이러한 효소는 세포 외 기질의 구성 요소를 분해하고 불리한 리모델링에 기여합니다. Ac-SDKP는 MMP의 기본 발현을 변화시키지 않았습니다. 그러나 IL-1β에 의한 이들 효소의 수치 증가는 강력하게 억제했습니다. 동시에 Ac-SDKP는 MMP 활성의 자연적 억제제인 메탈로프로테아제(TIMP-1 및 TIMP-2)의 조직 억제제의 발현을 증가시켰습니다. 이는 매트릭스 회전율의 균형을 재조정하는 데 도움이 되었습니다. 또한 Ac-SDKP는 염증과 증식을 유도하는 두 가지 주요 신호 경로의 활성화를 감소시켰습니다: NF-κB와 ERK/MAPK. 흥미롭게도 이 모델에서 IL-1β 자극은 콜라겐 생성을 증가시키지 않았습니다. Ac-SDKP도 콜라겐 합성에 영향을 미치지 않았습니다. 이는 콜라겐 생성의 일반적인 변화보다는 조직 리모델링의 선택적 재균형에 의한 보호 역할이 있음을 시사합니다. 이러한 결과를 종합하면 Ac-SDKP는 매트릭스 조절의 균형을 재조정하여 심근을 병리적 리모델링으로부터 보호할 수 있음을 나타냅니다 [10].
Ac-SDKP는 쥐의 자가면역성 심장 손상을 예방합니다. 나카가와 등은 T세포 유발 심근염 모델에서 면역화된 루이스 쥐에게 Ac-SDKP를 투여한 결과 수축기 및 이완기 모두에서 심장 기능이 보존되는 것을 관찰했습니다. 또한 이 치료는 심장 비대를 줄이고 흉터 형성을 줄이며 더 건강한 심근 구조를 보존했습니다. 조직학적 분석 결과 대식세포, 수지상 세포 및 T 림프구를 포함한 침윤성 면역 세포의 수가 감소한 것으로 나타났습니다. 이와 함께 사이토카인(IL-1α, TNF-α, IL-2, IL-17), 케모카인(CINC-1, IP-10), 접착 분자(ICAM-1, L-selectin), 매트릭스 메탈로프로테아제 등 주요 염증 매개체의 수치도 현저히 감소했습니다. 흥미롭게도 Ac-SDKP는 미오신 특이적 자가항체 또는 항원 특이적 T세포 반응의 수준을 변화시키지 않았습니다. 이는 심장 보호 효과가 주로 자가 항체 생성이나 T세포 활성화의 변화보다는 면역 세포 모집의 감소와 염증 매개체의 억제에 기인한다는 것을 나타냅니다 [11].
Ac-SDKP는 안지오텐신 II로 유발된 고혈압에서 염증과 콜라겐 가교 형성을 감소시킵니다. 곤잘레스 등은 쥐에게 안지오텐신 II를 3주 동안 투여하고 별도의 그룹에 Ac-SDKP를 투여했습니다. 혈압과 심장 비대는 두 그룹 모두에서 상승한 상태를 유지했지만 Ac-SDKP는 총 콜라겐과 교차 결합 콜라겐의 증가를 모두 막았습니다. 이러한 보호 효과는 콜라겐 가교 및 흉터 경화를 담당하는 효소인 리실 옥시다아제(LOX) mRNA와 LOXL1 단백질의 억제에 기인한 것입니다. 또한 Ac-SDKP는 TGF-β 발현을 감소시키고 NF-κB 활성화를 억제하며 CD4⁺ 및 CD8⁺ T 림프구 및 CD68⁺ 대식세포의 심장 조직으로의 침윤을 감소시켰습니다. 중요한 것은 CD4⁺ T 세포의 유입이 LOXL1 발현과 상관관계가 있어 면역 세포 활동과 섬유증 사이에 기계적인 연관성이 있음을 시사한다는 점입니다. 이러한 연구 결과는 Ac-SDKP가 혈압에 미치는 영향과는 별개로 강력한 항섬유화 및 항염증 효과를 발휘한다는 점을 강조합니다[12].
또한 쥐의 심근경색 초기 및 후기 단계에서 심장을 보호합니다. Peng 등은 심근경색 후 C57BL/6J 마우스에 Ac-SDKP(1.6 mg/kg/일)를 투여했습니다. 치료 첫 주에는 치명적인 벽 파열 횟수 감소, ICAM-1 수치 감소, 대식세포 유입 및 젤라틴 소화 활동 감소, p53 억제 및 심근 세포 사멸 감소와 동시에 손상 가장자리에 있는 작은 혈관의 수가 증가하여 새로운 혈관 성장이 더 잘 이루어짐을 시사하는 결과를 얻었습니다. 5주차에 심장은 간질성 콜라겐이 감소하고 구조가 보존되었으며 소포체 스트레스(CHOP) 수치가 낮아지고 칼슘 대사에 중요한 SERCA2가 유지되었을 뿐만 아니라 전반적으로 기능이 개선되었습니다. 요컨대, 초기 손상을 줄이고 장기적으로 더 건강한 리모델링을 촉진합니다[13].
또 다른 연구에서 Ac-SDKP는 당뇨병성 심근병증에서 심장 흉터를 줄이고 이완기 기능을 개선하는 것으로 나타났습니다. 카스톨디 등은 쥐에게 당뇨병을 유발하고 두 달 후 8주 동안 Ac-SDKP(미니펌프로 하루 1mg/kg)를 투여하기 시작했습니다. 당뇨병에 걸린 쥐는 높은 당 수치, 현저한 간질 및 혈관 주위 섬유화, 심장의 TGF-β1 및 포스포-Smad2/3 수치가 증가했습니다. Ac-SDKP는 두 가지 유형의 섬유증을 모두 감소시켰으며, ACE 억제제 라미프릴을 투여한 동물에서도 TGF-β/Smad 신호가 감소했습니다. 심장 초음파 검사 결과 당뇨병은 수축기와 이완기를 손상시키는 것으로 나타났으며, 인슐린과 라미프릴은 두 기능을 모두 회복시켰고 Ac-SDKP는 이완기(이완기 기능)를 부분적으로 개선했습니다. 이러한 데이터는 이 모델에서 중간 정도의 기능 향상과 함께 항섬유화 효과를 강조합니다[14]. 또한 관상동맥 혈관을 방사선 손상으로부터 보호하고 혈류를 보존합니다. Sharma 등은 흉부 방사선 조사를 받은 쥐 모델에서 18주 동안 Ac-SDKP를 피하 투여했습니다. 방사선은 안정 시 혈류를 감소시키고, 내피 세포를 죽이고, 관상동맥 섬유증을 증가시키고, 단단 접합 단백질(클라우딘-1, JAM-2)을 파괴했습니다. 그 결과 혈류가 정상으로 회복되고, 내피 세포가 보존되며, 섬유화가 감소하고, 긴밀한 접합부가 회복되었습니다. 실험실 연구에 따르면 Ac-SDKP는 내피 세포에 침투하여 방사선으로 인한 활성 산소 종 수준을 감소시키고, 살아있는 동물에서 표지된 펩타이드는 몇 시간 내에 내피 세포에 농축되는 것으로 나타났습니다. 이러한 결과는 방사선 조사 후 혈관 보호, 산화적 손상 감소 및 미세혈관 무결성 개선을 나타냅니다 [15]. 또한 심장 지지 세포에서 스트레스로 인한 흉터 형성을 감소시킵니다. 인간 심장 섬유아세포를 Ac-SDKP(10 nM)로 전처리한 후 세포 공장(소포체) 내부에서 '단백질 스트레스'를 유발하는 투니카마이신(0.25 µg/ml)으로 처리했습니다. Ac-SDKP는 스트레스를 받은 세포가 콜라겐을 너무 많이 생성하는 것을 막는 데 도움이 되었습니다. 스트레스에 대한 세포 반응을 진정시키고, CHOP이라는 스트레스 단백질의 활성을 낮추고, NF-κB라는 염증 스위치의 활성을 감소시키는 방식으로 작용했습니다. 또한 염증을 유발하는 신호인 IL-6의 수치도 낮췄습니다. CHOP을 유전적으로 감소시켰을 때, 단백질과 mRNA 수준 모두에서 NF-κB와 제1형 콜라겐 활성이 계속 감소하여 동일한 경로를 확인했습니다 [16]. 간단히 말해, 스트레스 상황에서 세포가 과도한 흉터 단백질 생성을 피하는 데 도움이 됩니다.
또한 TNF-α에 의해 유발되는 혈관 내벽의 염증을 감소시킵니다. 인간 관상동맥 내피 세포에서 TNF-α 자극은 ICAM-1의 발현을 크게 증가시켰습니다. 이 접착 분자는 백혈구의 혈관 표면 부착을 촉진하는 데 중요한 역할을 합니다. Ac-SDKP로 전처리하면 용량 의존적으로 ICAM-1 수치가 현저히 감소했습니다. 메커니즘 분석 결과, 이 효과는 염증 유전자 발현 활성화에 중요한 IKK → IκB → NF-κB 신호 캐스케이드의 억제를 통해 매개되는 것으로 나타났습니다. 흥미롭게도 다른 두 가지 신호 경로인 p38 MAPK와 ERK는 변화가 없었으며, 이는 Ac-SDKP가 내피 세포에서 항염증 효과를 발휘하기 위해 NF-κB 경로와 선택적으로 상호작용한다는 것을 나타냅니다 [17]. Ac-SDKP는 혈관 내벽을 정적으로 유지하도록 돕고 염증 중에 혈관 내벽의 '끈적임'을 감소시킵니다. 또한 혈압 자체를 낮추지 않고도 안지오텐신 II로 인한 고혈압에서 큰 동맥의 흉터를 예방합니다. 안지오텐신 II로 치료한 쥐에서 Ac-SDKP는 대동맥 내 콜라겐 축적을 감소시키고 흉터를 유발하는 신호(제1형 및 제3형 콜라겐의 mRNA)를 감소시켰습니다. 또한 단백질 키나아제 C 과활성, 산화 스트레스, ICAM-1 및 혈관벽으로의 대식세포 진입을 감소시켰습니다. 섬유화 신호는 감소(TGF-β1 및 Smad2 활성 감소)하고, 이 경로의 자연 억제제(Smad7)는 증가했습니다. 혈압과 대동맥 두께는 여전히 높게 유지되었으므로 혈관벽에 대한 이러한 이점은 압력 변화보다는 직접적인 조직 효과에 기인한 것입니다[18].
Ac-SDKP는 또한 방사선 손상으로부터 심장을 보호합니다. 표적 흉부 방사선을 받은 쥐에게 18주 동안 Ac-SDKP를 투여한 결과 심장 기능이 보존되고 세포 외 기질 축적과 섬유화가 감소했으며 대식세포 유입이 감소하고 심장 세포 사멸이 감소했습니다. 섬유화를 담당하는 대식세포 단백질인 Mac-2(갈렉틴-3)의 수준과 방출도 감소했습니다. 세포 핵 근처의 대식세포 내부에서 Ac-SDKP가 관찰되어 방사선에 의한 Mac-2의 방출을 막았으며, 섬유아세포에 Mac-2가 없는 경우 방사선에 의한 흉터 신호가 훨씬 약하게 나타났습니다 [19]. 이는 염증과 흉터 형성을 줄여 방사선 조사 후 혈관과 심장 조직을 더 건강하게 유지하는 데 도움이 됩니다.
폐 건강을 위한 Ac-SDKP(동물 연구 기반)
Ac-SDKP는 폐 모델에서 티모신-β4보다 더 강력한 항섬유화 효과를 보였습니다. 먼저 특발성 폐섬유증(IPF) 환자의 폐 세포를 사용한 실험실 연구에서 과도한 세포 성장을 늦추고 α-SMA와 콜라겐이라는 두 가지 TGF-β 유발 섬유증 신호를 감소시켰습니다. 한편, 블레오마이신을 투여하여 폐 손상을 유도한 마우스에서 티모신-β4는 초기 단계(7일째)에는 염증과 초기 흉터를 감소시켜 도움을 주었지만 후기 단계(14-21일째)에는 섬유화를 멈추지 못했습니다. 이러한 결과는 Ac-SDKP가 세포에서 흉터의 주요 단계를 차단하고 전구체인 티모신-β4보다 더 안정적이고 오래 지속되는 항섬유화 효능을 제공할 수 있음을 시사합니다[20]. 또한, KIF3A를 복원하고 β-카테닌 신호를 차단하여 실리카 관련 폐 흉터를 억제합니다.
. 특히 규폐증에서는 환자 샘플과 쥐의 폐에서 KIF3A 수치가 낮았습니다. KIF3A가 회복되면 β-카테닌과 그 하류 동인인 MRTF-A 및 SRF의 활성이 감소하여 흉터와 관련된 상피에서 근섬유아세포로의 전이(EMyT)가 느려집니다. 이로 인해 KIF3A 기능이 지속적으로 증가하여 결과적으로 β-카테닌/MRTF-A/SRF 신호가 감소했습니다. 그러나 KIF3A를 제거하자 Ac-SDKP는 이러한 이점을 상실하여 KIF3A가 항섬유화 작용에 필수적이라는 것을 확인했습니다 [21].
또 다른 연구에서는 Ac-SDKP와 VIP를 함께 투여한 쥐에서 흡연으로 인한 COPD 관련 변화가 약화되었습니다. 산화적 손상(MDA 수치 감소), 흉터(하이드록시프롤린 수치 감소), 섬유화의 주요 원인(TGF-β 수치 감소)을 감소시켰습니다. 동시에 염증성 사이토카인(TNF-α, IL-1β, IL-6)이 감소하고 항산화 보호 기능이 향상되었습니다(SOD 활성도 증가). 이에 따라 현미경으로 관찰한 폐 조직은 염증이 적고 구조적 리모델링이 덜한 것으로 나타났습니다. 이러한 물질의 조합은 연기 손상 모델에서 항산화, 항염증 및 항섬유화 효과를 제공했습니다[22, 23]. Ac-SDKP는 또한 블레오마이신으로 인한 폐섬유화증의 예방과 치료 모두에서 유의미한 결과를 보여주었습니다. CD-1 마우스의 경우, 0일째부터 Ac-SDKP(0.6 mg/kg, 정맥주사)를 투여한 결과 또는 7일째에는 생존율이 개선되고 블레오마이신 관련 체중 감소가 감소했습니다. 또한 폐의 부종과 침습성 면역 세포가 줄어들고 조직 구조가 더 건강해졌으며 콜라겐 염색과 가용성 콜라겐 수치가 모두 감소하는 등 섬유화가 덜한 것으로 나타났습니다. 기계적으로도 전섬유화성 IL-17 및 TGF-β 신호가 감소하고 α-SMA가 감소하여 근섬유아세포가 더 적었음을 나타냅니다. 중요한 것은 조기(예방적) 및 지연(치료적) 투여 모두에서 이점이 발생했다는 점입니다[24]. 또한, P-HSP27/SNAI1 경로를 통해 규폐증으로 인한 폐섬유화를 감소시킵니다. 쥐 실험에서 규폐증은 폐 조직에서 P-HSP27, SNAI1, α-SMA 및 콜라겐 I/III의 증가를 유발했습니다. 반면, 노출 전 또는 질병 발병 후에 Ac-SDKP를 투여하면 이러한 모든 마커가 감소하고 영상 검사에서 P-HSP27과 α-SMA에 양성 반응을 보이는 세포의 수가 감소했습니다. 중요한 것은 건강한 대조군에 투여해도 단백질 발현이 변하지 않았다는 점으로, 그 효과가 질병에 걸린 폐에 선택적으로 작용한다는 것을 시사합니다[25].
또한 여러 동물 연구에서 강력한 항섬유화 효과가 입증되었습니다. 18건의 무작위 임상시험(428마리, 2008~2011년)을 포함한 메타 분석에 따르면 Ac-SDKP는 α-SMA(SMD -2.44), 제1형 콜라겐(SMD -5.36), 제3형 콜라겐(SMD -3.07), TGF-β(SMD -2.88) 및 폐결절 면적(SMD
-1.80); 모두 P<0.001. 또한 콜라겐의 화학적 수치인 히드록시프롤린도 크게 변화하여[SMD 7.62; 95% CI 4.90-10.33; P=0.000] 콜라겐 회전율에 미치는 영향과 일치했습니다. 이러한 결과는 Ac-SDKP가 폐 질환 모델에서 섬유화를 일관되게 늦춘다는 것을 나타냅니다[26]. 또 다른 연구에서는 쥐의 실리카 관련 폐 흉터를 억제하여 TGF-β 및 CTGF 수치를 감소시켰습니다. 쥐에게 실리카를 투여하여 섬유화를 유도한 후 예방적 또는 치료적 Ac-SDKP(800 µg/kg/일)를 투여했습니다. 규폐증 대조군에 비해 치료받은 폐에서 TGF-β1(~0.244 ± 0.016) 및 CTGF(~0.241 ± 0.017) 단백질 수치가 유의하게 감소했습니다. 마찬가지로, mRNA 수준
가 감소하고 CTGF mRNA는 모델 그룹에 비해 현저히 낮았습니다(P<0.05). 예방 그룹에서는 TGF-β1의 단백질과 mRNA가 모두 8주 규폐증 모델에서 유의하게 낮은 수준이었습니다(P<0.05). 마지막으로 폐 조직검사에서 섬유화가 덜한 것으로 확인되었습니다[27]. 또한 규폐증에서 콜라겐 축적을 억제하고 폐 구조를 개선합니다. 규폐증에 노출된 쥐에게 부상 후(치료) 또는 노출 48시간 전(예방)에 Ac-SDKP를 투여했습니다. 치료 그룹은 규폐증 모델에 비해 규폐증 결절 면적이 84.28% 및 67.93%로, 히드록시프롤린은 70.89% 및 58.18%로, 제1형 콜라겐은 71.08% 및 58.13%로, 제3형 콜라겐은 80.13% 및 70.70%(각 시점 기준) 감소한 것으로 확인되었습니다. 예방 그룹에서는 8주 규폐증 모델에 비해 결절은 61,13%, 히드록시프롤린은 60,27%, 제1형 및 제3형 콜라겐은 40,13% 및 65,77%로 감소했습니다. 이에 따라 HE 및 VG 염색에서는 섬유화가 더 경미하게 나타났습니다. 이로 인해 콜라겐 함량과 눈에 보이는 흉터가 모두 감소했습니다[28].
또한 실리카에 노출되었을 때 대식세포 경로를 진정시켜 폐와 뼈를 보호합니다. 쥐와 세포 모델에서 실리카는 파골세포에 의한 폐 염증과 뼈 재흡수를 유발하여 TLR4와 RANKL을 활성화시켰습니다. 이와 대조적으로 Ac-SDKP 처리는 TLR4와 RANKL 신호를 억제하고 폐 엘라스틴을 보호하며 폐 염증을 감소시키고 대식세포 활성화를 감소시켰습니다. 동시에 뼈에서 Ac-SDKP는 파골세포 분화를 차단하고 골밀도와 미세 구조를 유지하는 데 도움을 주었습니다. 이러한 결과는 실리카 관련 질환에서 폐를 더 건강하게 하고 뼈를 더 안정적으로 보호하는 이중 보호 효과를 나타냅니다[29]. 또한 흉터를 형성하는 세포의 성숙을 억제하여 폐 흉터를 감소시킵니다. TGF-β1은 일반적으로 폐 지지 세포(섬유아세포)를 자극하여 근섬유아세포로 전환하고 추가적인 콜라겐을 생성합니다. TGF-β1 전에 Ac-SDKP를 투여하면 α-SMA와 콜라겐 수치가 감소하고 TGF-β1과 그 수용체 수치도 감소했습니다. 그 후, 실리카로 인한 폐 손상을 입은 쥐에게 노출 전후에 Ac-SDKP를 투여하면 TGF-β1 수준, RAS 신호 및 SRF 활성이 감소하고 폐 결절에서 α-SMA 양성 근섬유아세포의 수가 감소했습니다. 그 결과 콜라겐 축적이 감소하여 섬유증에 대한 보호 효과가 입증되었습니다 [30, 31]. 또한 Ac-SDKP는 상피 세포가 흉터를 형성하는 세포로 변하는 것을 방지하여 폐포 내벽을 보호합니다. 규폐증 및 TGF-β1과 같은 손상 신호의 영향으로 상피 마커(E-cadherin, SP-A)는 감소하는 반면 중간엽 및 섬유증 마커(vimentin, α-SMA, 콜라겐 I/III)는 증가합니다. Ac-SDKP를 사용하면 이러한 해로운 변화가 역전되어 상피 정체성이 보존되고 섬유화 마커가 감소하며 TGF-β1/ROCK1 경로가 약화됩니다. 결과적으로 섬세한 폐포 표면이 정상에 가깝게 유지되고 흉터가 덜 생겼습니다 [32]. 또한, 폐포 세포의 '단백질 공장' 스트레스와 세포 사멸을 완화하여 폐 흉터를 감소시킵니다. 규폐증이 발생하면 세포는 높은 ER 스트레스 신호(GRP78, 인산화 PERK 및 eIF2α), CHOP 및 카스파제-12를 나타내며 많은 세포가 사멸합니다. Ac-SDKP와 ER 스트레스 차단제 4-PBA를 사용하면 이러한 스트레스 마커가 감소하고 세포 분석과 쥐 실험에서 세포 사멸이 감소했으며 폐 콜라겐이 감소했습니다. 전반적으로 Ac-SDKP는 PERK/eIF2α/CHOP 경로와 카스파제-12를 진정시킴으로써 상피층을 보호하고 섬유증의 진행을 늦추는 데 도움을 줍니다[33].
신장 건강을 위한 Ac-SDKP(동물 연구 기반)
Ac-SDKP는 혈압을 낮추지 않고 루푸스의 신장을 보호합니다. 나카가와 등(2017)은 루푸스에 걸리기 쉬운 NZBWF1 마우스에서 수축기 혈압을 낮추지 않고도 신장 필터(사구체 경화증 감소)를 보존하고 전반적인 손상을 줄인다는 사실을 보여주었습니다. 중증 고혈압, 요알부민 및 조기 사망의 발병은 Ac-SDKP에서 나중에 발생했지만 이러한 지연은 통계적으로 유의하지 않았습니다 [34]. 이 물질은 또한 염분 스트레스 동안 신장 기능을 보호합니다. Worou 등(2015)은 염분에 민감한 달 쥐를 대상으로 6주 동안 800 또는 1600 µg/kg/일을 투여한 연구를 수행했습니다. 소금 식단의 결과로 혈압은 계속 상승했지만 신장은 염증이 적고 섬유화가 적으며 필터가 더 건강한 것으로 나타났습니다. 염분에 민감한 쥐의 경우 고용량만이 소변 알부민 수치를 감소시켰습니다. 내성이 더 강한 균주(SS13BN)에서는 두 용량 모두 알부민 누출과 구조적 손상을 방지했습니다[35]. 이는 보호 효과가 혈압과 무관하다는 것을 나타냅니다. 펩타이드는 또한 루푸스에서 면역 매개 신장 손상을 감소시킵니다. Liao 등(2015)은 20주 후, 루푸스 자가항체 수치는 변하지 않았지만 루푸스에 걸리기 쉬운 쥐를 치료한 쥐의 신장 기능이 더 좋아졌다는 사실을 발견했습니다. 신장에는 대식세포와 T 세포와 같은 침습성 면역 세포가 더 적었고 사이토카인과 케모카인과 같은 염증 신호가 더 낮았으며 보체 단백질(C5-9), RANTES, MCP-5 및 ICAM-1의 활성화가 억제되었습니다. 그 결과 여과 기능이 보존되고 미세한 손상이 감소했습니다 [36].
또 다른 연구에서는 지속적인 고혈압에도 불구하고 고혈압 관련 신장 손상을 예방하는 것으로 나타났습니다. 랄렙 등(2011)의 연구에 따르면 DOCA 식염수를 투여한 쥐에서 Ac-SDKP(12주 동안 800 µg/kg/일)는 신장 흉터(콜라겐), 여과 매트릭스 확장 및 단핵구/대식세포 유입을 감소시킨 반면 혈압은 상승한 상태를 유지했습니다. 중요한 것은 소변 알부민 수치가 하루 체중 10g당 41±5µg에서 13±3µg으로 정상화되어 통제 수준에 가까워졌고 네프린(주요 여과 틈새 단백질)의 손실이 부분적으로 회복되었다는 점입니다[37]. 따라서 Ac-SDKP는 혈압에 관계없이 여과 장벽을 보호하고 흉터를 감소시켰습니다. 또한 흉터와 당뇨병으로 인한 신장 기능 장애로부터 보호합니다. 시부야 등(2005)의 연구에 따르면 제2형 당뇨병이 있는 db/db 마우스에 미니펌프를 통해 8주간 Ac-SDKP를 투여한 결과 혈당 수치에 변화가 없이 혈장 Ac-SDKP 농도가 약 3배 증가한 것으로 나타났습니다. 그 결과 사구체 부종, 과도한 간질 기질 증식 및 세포 외 기질 축적이 방지되고 혈장 크레아티닌 수치가 정상에 가까워졌습니다. 알부민뇨도 감소했지만 통계적으로 유의미한 감소는 아니었습니다. 기계적으로 Smad3가 세포 핵으로 들어가는 것을 차단하여 섬유증과 관련된 TGF-β/Smad 신호를 감소시켰습니다 [38]. 또한, Ac-SDKP는 당뇨병에서 신장 흉터를 감소시키며 ACE 억제 외에도 추가적인 이점이 있습니다. Castoldi 등(2013)은 쥐에게 당뇨병을 유발한 후 Ac-SDKP(1 mg/kg/일), 라미프릴(3 mg/kg/일), 두 약물을 함께 투여하거나 위약을 투여했습니다. 먼저, 치료하지 않은 당뇨병 쥐는 고혈당, 높은 요중 알부민 수치(알부민뇨), 신장 섬유증이 발생했습니다.
신장 섬유화 및 사구체 네프린 수치 감소. Ac-SDKP만 사용했을 때 신장 섬유증은 감소했지만 알부민뇨는 개선되지 않았습니다. 라미프릴을 병용하면 알부민뇨와 섬유증이 모두 감소하고 네프린 수치가 회복되었습니다. 중요한 것은 Ac-SDKP와 라미프릴을 병용하면 알부민뇨는 더 이상 개선되지 않았지만 라미프릴 단독 요법보다 섬유증이 더 많이 감소했다는 점입니다. Ac-SDKP는 당뇨병성 신증에서 섬유증을 감소시키고 알부민뇨에 대한 추가적인 이점 없이 ACE 억제제의 항섬유화 보호 기능을 향상시킵니다 [39].
흥미롭게도 Zhang 등(2022)은 젤라틴과 커큐민-아연으로 구성된 생체 영감 이중 네트워크 하이드로겔을 개발하여 DOPA로 코팅하고 고정화된 Ac-SDKP로 기능화했습니다. 이 시스템은 용해도, 흡수율 및 안정성 저하 등 유리 약물의 한계를 극복하기 위해 설계되었습니다. 부분적으로 신장 절제된 쥐 신장에 생체 내 적용 결과 하이드로겔이 국소 섬유화를 지속적으로 감소시키고 혈관 신생을 촉진하며 새로운 신장 세뇨관 형성을 자극하는 것으로 나타났습니다. 재료 테스트를 통해 적절한 다공성, 기계적 강도 및 생체 적합성이 확인되어 치료 잠재력을 더욱 뒷받침했습니다[40]. 비교 연구에서도 티모신-β4(Tβ4)의 뚜렷하고 단계 의존적인 효과를 강조합니다. Zuo 등(2013)은 야생형 및 PAI-1 유전자 결손 마우스의 일측 요관 폐쇄 모델을 사용하여 Ac-SDKP, Tβ4 및 Tβ4와 프롤릴 올리고펩티다제(POP) 억제제의 병용 효과를 평가했습니다. Ac-SDKP는 콜라겐 및 피브로넥틴 침착 감소, 활성화된 근섬유아세포 및 대식세포 감소, 전섬유화 신호 감소로 입증된 것처럼 두 유전자형에서 일관되게 섬유증을 감소시켰습니다 [41]. 또한 Wang 등(2010)은 Ac-SDKP가 신장 염증과 폐색으로 인한 섬유화를 억제한다는 사실을 보여주었습니다. 일측 요관 폐색이 있는 쥐에서 14일간 치료한 결과 조직학적 검사에서 세뇨관 간질 흉터와 염증 변화가 감소했습니다. 펩타이드는 신장 대식세포 침윤(ED-1)을 감소시키고 세뇨관 및 간질 세포에서 MCP-1, NF-κB, α-SMA 및 TGF-β1 단백질 수치를 감소시켰습니다. MCP-1 및 TGF-β1 유전자 발현도 감소하여 신장 섬유증의 주요 원인인 염증 수송과 세포 외 기질 활성화가 모두 감소했음을 나타냅니다[42]. 만성 신장 손상이 있는 고혈압 모델에서 추가 증거가 나왔습니다. Liao 등(2010)은 5/6 신장 절제술 후 손상 전(예방) 또는 손상 후(역전) 쥐에게 하루 800 µg/kg의 용량으로 Ac-SDKP를 투여했습니다. 지속적인 고혈압과 좌심실 비대에도 불구하고 두 그룹 모두에서 알부민뇨가 감소하고 대식세포 침윤이 감소했으며 신장 콜라겐 수치가 감소했습니다. 사구체에서 네프린의 손실도 부분적으로 보존되거나 회복되어 여과 장벽의 완전성이 개선되었음을 시사합니다. 이러한 결과는 펩타이드가 혈압 조절보다는 주로 항염증 및 항섬유화 효과를 통해 질병의 초기 및 진행 단계 모두에서 신장 보호 효과를 제공한다는 것을 강조합니다 [43].
알도스테론-염 고혈압에서 펩타이드는 혈압에 영향을 미치지 않고 심장과 신장의 흉터를 감소시켰습니다. Peng 등(2001)은 한쪽 신장을 제거한 쥐를 대상으로 연구했습니다.
에 알도스테론과 소금을 6주 동안 투여했습니다. 이 치료는 혈압을 상승시키고 심장과 신장을 비대하게 만들었으며 세포 성장 마커(PCNA)와 함께 흉터 조직(콜라겐)을 증가시켰습니다. 특히 800 µg/kg/일의 고용량으로 Ac-SDKP를 투여한 결과, 용량 의존적으로 콜라겐과 PCNA가 유의하게 감소했습니다. 중요한 것은 혈압과 장기 비대는 변하지 않았으며, 저용량(400 µg/kg/일)은 부분적인 효과를 제공했습니다[44]. 면역 매개 신장 질환에서 펩타이드는 신장 기능을 개선하고 섬유증을 감소시켰습니다. Omata 등(2006)은 항GBM 신염에 걸린 쥐에게 질병 발병 14일 후부터 4주 동안 Ac-SDKP를 1 mg/kg/일 투여했습니다. 치료하지 않은 동물에 비해 요 단백질 수치가 감소하고 혈장 요소 및 크레아티닌 농도가 감소했으며 크레아티닌 청소율이 개선되었습니다. 조직 분석 결과 사구체 경화증과 간질성 섬유증이 감소한 것으로 나타났습니다. 기계적으로 피브로넥틴, 콜라겐 및 TGF-β1 수치를 감소시키고, Smad2 신호를 감소시키고, Smad7을 증가시키고, 신장 조직에서 대식세포 축적을 감소시켰습니다 [45]. 당뇨병에서 펩타이드는 혈관 세포가 흉터를 형성하는 세포로 변하는 것을 방지하여 신장 흉터를 차단했습니다. Nagai 등(2014)은 Ac-SDKP가 당뇨병에 의해 억제된 let-7 마이크로RNA 및 FGF 수용체 신호 전달을 포함한 자연 보호 경로를 회복시켰다는 것을 보여주었습니다. 그 결과 섬유증과 내피에서 중간엽으로의 전이(EndMT)가 감소했습니다. 중요한 것은 ACE 억제제와 병용했을 때 ACE 억제제 단독 사용보다 신장 보호 효과가 훨씬 더 개선되었다는 점입니다[46].
또 다른 연구에서 펩타이드는 건강한 신장 대사를 회복하고 섬유증을 감소시켰습니다. Srivastava 등(2020)은 당뇨병이 있는 생쥐를 대상으로 ACE 억제제, ARB, Ac-SDKP 및 이들의 조합을 비교했습니다. 또한 프롤린 올리고펩티다제 억제제(POPi)를 사용하여 자연적인 형성을 차단했습니다. 그 결과 Ac-SDKP가 신장 대사를 재프로그래밍하여 ACE 억제제의 효과를 매개하는 것으로 나타났습니다: SIRT3가 회복되고 미토콘드리아 지방산 산화가 개선되었으며 비정상적인 포도당 이용이 감소했습니다. 반면, POPi는 자연 수치를 감소시키고 섬유화를 가속화하며 대사 균형을 방해했습니다. 중요한 것은 ACE 억제제(ARB는 아님)가 부분적으로 수치를 회복하고 섬유증을 감소시켰다는 점입니다. ACE 억제제와 Ac-SDKP는 모두 당뇨병 신장에서 중간엽 리모델링을 감소시키고 콜라겐 I과 피브로넥틴 수치를 감소시켰습니다 [47].
암 치료에서 Ac-SDKP 유사체는 화학 요법 중 혈액 세포를 보존하는 데 도움이 되었습니다. Carde 등(1992)은 시타라빈 또는 이포스파미드를 투여받은 53명의 환자를 대상으로 한 이중 맹검, 교차 I-II상 시험에서 세라스페니드를 테스트했습니다. 대조군에 비해 세라스페니드로 치료받은 환자는 화학요법 독성으로부터 말초혈구를 더 잘 보호했습니다. 내약성도 우수했으며 부작용도 나타나지 않았습니다. 이러한 결과는 Ac-SDKP 유사 펩타이드가 세포 독성 치료 중에 골수를 보호할 수 있음을 시사합니다 [48]. 또 다른 연구에서 펩타이드는 혈액 독성을 감소시키지 못했지만 안전했습니다. 카펠레레 등(1995)은 카보플라틴과 5-플루오로우라실을 지속적으로 투여받은 진행성 편평세포암 환자 84명을 대상으로 다음과 같이 연구했습니다.
위약 또는 고랄라타이드(Ac-SDKP)를 12.5 또는 62.5 µg/kg/일의 용량으로 투여했습니다. 221주기의 화학 요법 동안 백혈구, 과립구, 혈소판 또는 헤모글로빈의 최저 혈구 수에는 두 그룹 간에 차이가 없었습니다. 독성 지속 기간도 변하지 않았습니다. 그러나 빈혈과 림프구 감소증은 고랄라타이드에서 더 흔하게 나타났습니다. 전반적으로 이 약물은 내약성이 좋았지만 이 용량에서는 화학 요법과 관련된 혈구 손실을 예방하지 못했습니다 [49].
1형 당뇨병과 2형 당뇨병 모두에서 펩타이드는 흉터와 신장 기능을 개선했습니다. Nitta 등(2016)은 스트렙토조토신으로 유도된 1형 당뇨병을 가진 CD-1 마우스와 2형 당뇨병을 가진 db/db 마우스를 경구용 Ac-SDKP, 이미다프릴(ACE 억제제) 또는 두 약물을 병용하여 치료했습니다. 경구 치료는 단독 또는 병용하여 사구체 경화증과 세뇨관 간질 섬유증을 감소시켰습니다. 신장 질환에서 상승하는 혈장 시스타틴 C 수치가 정상 수준으로 회복되었습니다. 모든 치료법에서 억제된 항섬유화 마이크로RNA(miR-29 및 let-7)가 회복되었으며, 병용 치료를 받은 그룹에서 가장 큰 개선이 관찰되었습니다. 요 펩타이드 수치는 병용 치료를 받은 그룹에서 가장 높았으며, 이는 전신 노출이 개선되었음을 나타냅니다 [50]. 면역 매개 신장 질환의 경우, 요 단백질 수치가 감소하고 염증과 섬유증이 감소했습니다. Tan 등(2012)은 루푸스가 있는 쥐에게 8주 동안 MRL/lpr 1.0 mg/kg/일을 투여했습니다. 펩타이드를 투여한 쥐는 투여하지 않은 루푸스 쥐에 비해 단백뇨가 적고 신장 기능이 개선되었습니다. 신장 조직에는 침윤하는 T 세포와 대식세포가 더 적게 포함되어 있었습니다. 기계적으로도 NF-κB 활성화와 TNF-α 생산이 감소하고 섬유화 촉진 마커(TGF-β1, α-SMA 및 피브로넥틴)가 감소했습니다. Smad2/3의 인산화는 억제되고 Smad7은 증가했습니다. 중요한 것은 면역 복합체의 침착과 항-dDNA 항체 수준에는 변화가 없었으며, 이는 항체 형성의 변화보다는 염증과 섬유증의 감소로 인한 이점임을 시사합니다 [51].
비만과 염분 섭취가 많은 경우 염증, 섬유증, 심지어 혈압을 감소시켜 신장을 보호합니다. 마헤슈와리 외. (2018)은 8주 동안 일반 소금(0.4%) 또는 고염분(4%)을 먹인 주커 마른 쥐(ZL)와 주커 비만 쥐(ZO)를 연구한 결과, ZO 하위 그룹은 다음을 수행했습니다.
1.6 mg/kg/일. 고염분은 두 그룹 모두에서 신장 염증과 섬유화를 악화시켰으며, 비만 쥐의 대식세포 침윤이 가장 심했습니다(마른 쥐의 경우 87.8 ± 10.8 세포/mm² 대 19.14 ± 1.5 세포/mm²). 치료 결과 비만 쥐의 대식세포 침윤은 32.18 ± 2.4 세포/mm²로 감소했으며(P<0.05), 사구체 경화증과 피질과 수질 모두에서 간질성 섬유증이 감소했습니다(P<0.05). 소금을 먹인 비만 쥐의 수축기 혈압도 164 ± 6.9에서 144.05로 감소했습니다.
± 14.1 mmHg (P=0.004). 알부민뇨는 마른 쥐보다 비만 쥐에서 더 높았지만 소금 섭취나 치료에 의해 크게 변화하지 않았습니다 [52].
뇌와 신경 건강을 위한 Ac-SDKP(동물 연구 기반)
파킨슨병 모델에서의 보호
이 펩타이드는 도파민 생성 뉴런을 보호하고 파킨슨병 모델에서 운동 능력과 기억력을 개선하는 데 도움이 됩니다. 카마레헤이와 자헤드나삽(2025)은 세포 실험을 통해 SH-SY5Y 신경 세포를 20nm의 이 펩타이드로 전처리하면 파킨슨병을 모방하는 데 일반적으로 사용되는 독소인 6-OHDA로부터 보호된다는 사실을 최초로 입증한 바 있습니다. 쥐 실험에서 6-OHDA 뇌 손상 후 매일 800 µg/kg을 투여한 결과, 더 많은 도파민 뉴런이 보존되고 카스파제-3 및 카스파제-12 활성이 감소하여 세포 사멸이 감소했습니다. 또한 치료를 받은 쥐는 운동 협응력이 향상되고 공간 기억력이 개선되었으며 불안과 우울 증상이 줄어드는 것으로 나타났습니다. 기계적으로 이러한 효과는 산화 스트레스 감소, 소포체(ER) 스트레스 완화, 뇌의 염증 신호 감소로 인해 신경세포의 생존과 재생을 촉진하는 것으로 나타났습니다 [53].
척수 손상 후 재생
또한 척수 손상 후 회복을 가속화하고 염증을 치유 방향으로 전환합니다. Hashemizadeh 등(2022)은 체중 감소로 인한 척수 손상 2~6시간 후부터 7일 동안 매일 1회 0.8 mg/kg을 Wistar 쥐에게 피하로 투여했습니다. 치료받은 쥐는 치료받지 않은 쥐에 비해 보행 능력이 회복되고 운동 신경세포 손실이 적었으며 염증성 신호인 TNF-α와 카스파제-3 수치가 낮아졌습니다. 동시에 노화 촉진 M2 대식세포의 마커인 CD206의 mRNA 수치가 증가했습니다. 조직 검사 결과 손상 부위가 줄어든 것으로 나타났습니다. 전반적으로 이 치료는 면역 반응을 손상시키는 M1 유형의 활동에서 보호하는 M2 유형의 활동으로 변경하여 기능적 및 구조적 이점을 모두 제공했습니다 [54].
외상성 뇌 손상(TBI) 후 보호
Ac-SDKP는 부상 직후에 투여하면 뇌를 보호하고 뇌 회복을 촉진하는 데 도움이 됩니다. Zhang 등(2017)은 쥐에게 통제된 피질 손상을 유도하고 부상 1시간 후부터 3일 동안 미니펌프를 통해 이 약제(0.8 mg/kg/일)를 투여했습니다. 7일째부터 35일까지 감각 운동 테스트 점수가 개선되었고, 33~35일째에는 공간 학습 능력도 대조군에 비해 향상되었습니다(p <0.05). 연구가 끝날 무렵에는 피질 손상과 해마 신경세포의 손실이 감소하고 혈관 성장, 새로운 신경세포 형성 및 수지상 스파이크 밀도가 높아졌습니다. 또한 조기 치료는 섬유소 축적을 감소시키고 면역 세포 활성화를 약화시켰습니다. 메커니즘 테스트 결과, TGF-β1/NF-κB 신호 차단이 항염증 효과의 대부분을 설명하는 것으로 나타났습니다[55].
다발성 경화증(MS)과 유사한 질환에 대한 혜택
또한 다발성 경화증 모델에서 뇌 스트레스와 염증을 감소시킵니다. Pejman 등(2020)은 C57BL/6 마우스를 실험용 자가면역성 뇌척수염(EAE)에 노출시켰습니다. 일반적으로 EAE는 ER 스트레스 마커(caspase-12, CHOP, PDI), 산화 스트레스 및 해마로의 면역 세포 유입을 증가시킵니다. 치료를 통해 희돌기아교세포의 caspase-12 및 CHOP 수치가 감소하고, caspase-3 활성화가 감소하고, ROS 산화 및 지질 과산화가 감소하고, 항산화 능력이 향상되고, IL-6/IL-1β 수치가 감소했습니다. 뇌 스캔 결과 해마 손상이 적고 면역 세포의 침윤이 적어 질병 진행이 느려지는 것으로 확인되었습니다[56].
간 건강을 위한 Ac-SDKP(동물 연구 기반)
화학 물질로 인한 간 흉터 완화
Ac-SDKP 펩타이드는 주요 유전자 제어 스위치와 성장 경로를 조절하여 간을 화학적 손상으로부터 보호하는 데 도움을 줍니다. Wei et al. (2022)은 사염화탄소(CCl₄)로 간 손상을 입은 쥐를 연구한 결과, 간에서 흉터를 형성하는 주요 세포인 성상세포의 사멸이 줄어든다는 사실을 발견했습니다. 섬유화도 감소했습니다. 메커니즘 테스트 결과, 이 치료법은 RNA에 m⁶A 마커를 추가하는 효소인 WTAP의 수치를 감소시키는 것으로 나타났습니다. 이러한 변화는 RNA Ptch1을 안정화시키고 흉터 형성의 주요 원인인 고슴도치 경로의 활동을 조정했습니다. 전반적으로, 이 결과는 Hedgehog 신호를 조절하는 WTAP/m⁶A/Ptch1 경로를 통한 항섬유화 효과를 강조합니다 [59].
담관으로 인한 섬유화 보호
Ac-SDKP는 담도 막힘으로 인한 흉터 발생 시에도 간을 보호합니다. Zhang 등(2012)은 쥐를 대상으로 담관 결찰(BDL) 모델을 사용하여 2주 동안 지속적으로 치료했습니다. 펩타이드를 투여한 동물은 투여하지 않은 동물에 비해 TGF-β1 신호가 억제되고 활성화된 성상 세포와 관련된 마커(α-SMA, FSP-1)의 수준이 낮았습니다. 콜라겐 관련 유전자(Col I, Col III)와 턴오버 효소(MMP-2, TIMP-1, TIMP-2)의 발현도 감소했습니다. 간 기능과 관련된 혈액 마커인 ALT, AST, 빌리루빈 및 프로트롬빈 시간이 정상에 가까워지는 등 간 기능 관련 수치가 개선되었습니다. 조직 준비에서 비만 세포가 줄어들고 콜라겐 축적이 감소하며 섬유증과 염증이 전반적으로 감소하는 것이 관찰되었습니다 [60].
자연 방어 및 수리 신호 유지
장기간의 화학적 손상 동안 간이 자연적인 저항력을 유지하도록 도와줍니다. Chen 등(2010)은 CCl₄에 지속적으로 노출되면 펩타이드의 자연 수치가 시간이 지남에 따라 감소한다는 사실을 발견했습니다. 이를 주입(8주 동안 800 µg/kg/일)으로 대체하면 기준치를 유지하고 간 손상, 염증 및 섬유증을 감소시켰습니다. 혈중 간 효소 수치가 감소하고 CD45⁺ 염증 세포가 감소했습니다.
와 콜라겐 및 α-SMA 침착물이 감소했습니다. TGF-β1과 포스포-Smad2/3과 같은 섬유화 촉진 신호는 감소한 반면, 복구 관련 신호인 BMP-7과 포스포-Smad1/5/8은 증가했습니다. 세포 분석에서는 성상 세포 활성화를 직접적으로 차단하여 세포 수준에서 항섬유화 효과를 확인했습니다[61].
피부 및 조직 회복을 위한 Ac-SDKP(동물 연구 기반) H3. 치유를 촉진하고 흉터를 줄여주는 하이드로겔 피부 접착제
Ac-SDKP를 운반하고 방출하기 위해 특수 셀룰로오스 기반 피부 접착제(Dopa-OCMC-PAA, OCMC-PAA와 비교)가 개발되었습니다. 두 버전 모두 우수한 팽창 및 분해 프로파일, 높은 기계적 강도 및 세포 사용 시 안전성을 보였지만, Dopa-OCMC-PAA의 성능이 가장 우수했습니다. 간 출혈이 있는 마우스에서 이 접착제는 출혈을 더 빨리 멈췄습니다. 섬유아세포를 대상으로 한 실험에서는 조직 리모델링을 담당하는 효소(MMP-1 및 MMP-3)의 수치를 증가시키는 반면 콜라겐 유전자의 활성은 감소시켰습니다. 귀 흉터가 두꺼워진 토끼에게 펩타이드와 함께 도파-OCMC-PAA를 투여한 결과, 흉터 점수가 감소하고 세포 수가 감소했으며 콜라겐 구조가 개선되었고 콜라겐 유전자 활성도가 낮아지면서 MMP-1/MMP-3의 수치가 다시 높아지는 것으로 나타났습니다. 요약하면, 이러한 결과는 더 나은 상처 치유와 흉터 감소를 보여주었습니다 [62].
국소 적용으로 피부 생존 및 회복 개선
쥐의 피부 피판 수술(복부 및 등쪽)에서 3일 동안 매일 2회 5 µg/kg의 용량으로 Ac-SDKP를 주사한 결과, 건강한 피부의 생존율이 증가했습니다. 생존 가능한 플랩의 면적은 복부 플랩의 경우 50.9 ± 19.3%에서 66.4 ± 7.5%로, 등쪽 플랩의 경우 53.4 ± 4.2%에서 74.7 ± 6.6%로 증가했습니다. UVB로 손상된 피부 조직의 경우 국소 도포 시 생존율이 향상되었습니다. 또한 국소 도포는 새로운 피부 성장을 촉진하고 케라틴-14 수치(피부 형성 세포의 마커)를 증가시키며 피브로넥틴 수치를 증가시켜 혈관의 발달과 회복에 중요한 역할을 하는 것으로 나타났습니다[63].
화학 요법 중 혈액 형성 보호
화학 요법 약물인 독소루비신을 투여한 생쥐에게 치료 48시간 전부터 Ac-SDKP를 2.4 µg/일 용량(연속 또는 분할)으로 투여한 결과, 사망률이 감소하고 혈액 형성을 담당하는 줄기세포(LTRC, CFU-S, HPP-CFC 및 CFU-GM)를 보호하는 것으로 나타났습니다. G-CSF를 추가하면 CFU-GM의 회복 속도가 더욱 빨라졌습니다. 투여 시기는 매우 중요했습니다. 단기 골수 손상과 장기 줄기세포 손실을 방지하기 위해 화학 요법 전에 투여를 시작해야 했습니다[64].
개선된 유사체와 ACE 억제제 조합으로 더 강력한 항섬유화 효과 제공
폐 섬유아세포를 대상으로 한 실험에서 ACE 저항성 형태의 Ac-SDKP는 자연 형태보다 흉터 신호(TGF-β/Smad3)와 콜라겐 축적을 더 잘 감소시켰습니다. 짧아진 조각(Ac-DKP)은 효과가 약하고 ACE에 의해 서서히 분해되었습니다. 펩타이드는 ACE 억제제와 병용했을 때 단독보다 히드록시프롤린(콜라겐의 표지자)을 더 많이 억제하여 더 강력한 효과와 임상적 잠재력을 보여주었습니다. 10-⁶ ~ 10-¹⁷ M의 용량에서 티모신-β4(Tβ4)와 펩타이드 모두 비만세포 성장을 감소시키고(10-¹⁴ M에서 가장 좋음) 세포주기 중단과 관련된 비정상적인 핵 변화를 유도했습니다. 10-⁸ M의 농도에서 펩타이드는 비만 세포에서 화학 물질 방출(탈과립화)을 유도했으며, 펩타이드는 Tβ4(~57%)보다 더 강력한 효과(~89%)를 보였습니다. 다른 Tβ4 단편은 효과가 없었으며, 이는 효과가 온전한 Tβ4와 펩타이드에만 특이적이라는 것을 보여주었습니다 [65, 66].
Ac-SDKP 용량
전임상 연구에서 심장/혈관과 신장의 섬유화와 염증을 줄이기 위해 Ac-SDKP를 미니펌프를 통해 피하 투여하는 용량은 하루 약 0.8 mg/kg으로 가장 많이 사용됩니다. 심근경색 후 생쥐를 대상으로 한 연구에서는 초기 보호를 위해 하루 1.6 mg/kg의 용량을 사용하기도 합니다. 뇌/신경세포에서는 보통 손상 후 몇 시간 이내에 시작하여 짧은 주기로 3~7일 동안 약 0.8 mg/kg/일의 용량을 사용합니다. 세포 연구에서는 약 10nm의 용량으로 전처리를 하는 것이 일반적입니다. 항섬유화 프로토콜의 간에서는 만성 손상 동안 약 0.8 mg/kg/일의 용량을 투여하는 경우가 많습니다. 폐의 경우, 블레오마이신 모델에서는 0일 또는 7일째부터 반복 투여하여 복강 내 0.6 mg/kg의 용량을 사용했습니다. 피부/상처 회복의 경우, 국소 투여에는 3일 동안 매일 2회 주사당 5 µg/kg 또는 국소 방출용 펩타이드 함유 하이드로겔이 포함되었습니다. 혈액학/골수 복구에서는 화학 요법 전 마우스에서 2.4 µg/일, 초기 임상 시험에서 µg/kg/일의 단기 치료와 같이 매우 낮은 마이크로그램 용량이 사용됩니다.
면책 조항
이 글은 교육 목적으로 작성되었으며 논의 중인 물질에 대한 인식을 높이기 위한 것입니다. 이 글은 특정 제품(화학 시약)에 대한 설명이 아닌 일반적인 물질에 관한 내용이라는 점에 유의하시기 바랍니다. 인체에 화학 시약을 사용하도록 제안하는 것이 아니며, 이는 법으로 금지되어 있으며 치료용으로 사용하려면 의약품으로 등록되어야 합니다. 본 문서에 포함된 정보는 이용 가능한 과학적 연구를 기반으로 하며 의학적 조언이나 자가 치료를 장려하기 위한 것이 아닙니다. 독자는 모든 건강 및 치료 결정에 대해 자격을 갖춘 의료 전문가와 상담해야 합니다.
참조
- 왕, W., 지아, W. 및 장, C. (2022). 장기 섬유증에서 Tβ4-POP-Ac-SDKP 축의 역할. 국제 분자 과학 저널, 23(21), 13282. https://doi.org/10.3390/ ijms232113282
- Nakagawa, P., Romero, C. A., Jiang, X., D'Ambrosio, M., Bordcoch, G., Peterson, E. L., Harding, P., Yang, X. P. 및 Carretero, O. A. (2018). Ac-SDKP는 급성 심근경색 후 사망률과 심장 파열 위험을 줄입니다. PLoS One, 13(1), e0190300. https://doi.org/10.1371/ journal.pone.0190300 https://pubmed.ncbi.nlm.nih.gov/29364896/
- 펭, H., 카레테로, O. A., 브릭스톡, D. R., 오자-테베, N. 및 랄렙, N. E. (2003). Ac-SDKP는 신장 혈관 고혈압이있는 쥐의 심장 섬유증을 역전시킵니다. 고혈압, 42(6), 1164–1170. https://doi.org/10.1161/01.HYP.0000100423.24330.96 https://pubmed.ncbi.nlm.nih.gov/14581293/
- 양, F., 양, X. P., Liu, Y. H., Xu, J., Cingolani, O., Rhaleb, N. E., & Carretero, O. A. (2004). Ac-SDKP는 심근 경색 후 심부전이있는 쥐의 염증과 섬유증을 역전시킵니다. 고혈압, 43(2), 229-236. https://doi.org/10.1161/01.HYP.0000107777.91185.89 https:// pubmed.ncbi.nlm.nih.gov/14691195/
- 라소울, S., 카레테로, O. A., 펭, H., 카바신, M. A., 주오, J., 산체스-멘도사, A., 브릭스톡,
D. R. 과 랄렙, N. E. (2004). 고혈압에서 Ac-SDKP 및 안지오텐신 전환 효소 억제의 항 섬유화 효과. 고혈압 저널, 22(3), 593-603. https://doi.org/ 10.1097/00004872-200403000-00023 https://pubmed.ncbi.nlm.nih.gov/15076166/
- 랄렙, N. E., 펭, H., 하딩, P., 테이, M., 라포인트, M. C. 및 카레테로, O. A. (2001). 쥐 심장 섬유 아세포에서 DNA 및 콜라겐 합성에 대한 N- 아세틸-세릴-아스파 틸-리실 프롤린의 효과. 고혈압, 37 (3), 827-832. https://doi.org/10.1161/01.hyp.37.3.827 https:// pubmed.ncbi.nlm.nih.gov/11244003/
- Liu, Y.-H., D'Ambrosio, M., Liao, T.-D., Peng, H., Rhaleb, N.-E., Sharma, U., André, S., Gabius, H.-J. 및 Carretero, O. A. (2009). N- 아세틸 세릴-아스파르틸-리실 프롤린은 포유류의 접착 / 성장을 조절하는 렉틴 인 갈렉틴 -3에 의해 유발되는 심장 재형성 및 기능 장애를 예방합니다. 미국 생리학 저널-심장 및 순환기 생리학, 296(2), H404-H412. https://doi.org/ 10.1152/ajpheart.00747.2008 https://pubmed.ncbi.nlm.nih.gov/19098114/
- 랄렙, N. E., 펭, H., 양, X. P., Liu, Y. H., Mehta, D., Ezan, E. 및 Carretero, O. A. (2001). 두 개의 신장 손상과 그중 하나의 클램핑으로 인한 고혈압 쥐의 좌심실 콜라겐 침착에 대한 N- 아세틸 세릴-아스파 틸-리실 프롤린의 장기적인 영향. 순환, 103(25), 3136-3141. https://doi.org/ 10.1161/01.cir.103.25.3136 https://pubmed.ncbi.nlm.nih.gov/11425781/
- Cavasin M. A. (2006). 심근 경색 후 심장 치료에서 티모신 베타 4 및 그 N- 아세틸 세릴-아스파르틸-리실 프롤린 (Ac-SDKP) 유도체의 치료 가능성. 미국 심혈관 약물 저널 : 약물, 장치 및 기타 개입, 6(5), 305-311. https://doi.org/ 10.2165/00129784-200606050-00003 https://pubmed.ncbi.nlm.nih.gov/17083265/
- 랄렙, N. E., 포카렐, S., 샤르마, U. C., 펭, H., 피터슨, E., 하딩, P., 양, X. P. and Carretero, O. A. (2013). N- 아세틸-세르-에스-에스-리스-프로는 심장 섬유 아세포에서 인터루킨-1β에 의한 매트릭스 메탈로 프로테아제 활성화를 억제합니다. 플뤼거 아카이브 - 유럽 저널
생리학, 465(10), 1487-1495. https://doi.org/10.1007/s00424-013-1262-8 https:// pubmed.ncbi.nlm.nih.gov/23652767/
- Nakagawa, P., Liu, Y., Liao, T. D., Chen, X., González, G. E., Bobbitt, K. R., Smolarek, D., Peterson, E. L., Kedl, R., Yang, X. P., 랄렙, N. E. 및 카레레로, O. A. (2012). N- 아세틸 세릴-아스파르틸-리실 프롤린 치료는 쥐의 실험적자가 면역 심근염을 예방합니다. 미국 생리학 저널-심장 및 순환기 생리학, 303(9), H1114-H1127. https:// doi.org/10.1152/ajpheart.00300.2011 https://pubmed.ncbi.nlm.nih.gov/22923621/
- 곤살레스, G. E., 랄렙, N. E., 나카가와, P., 리아오, T. D., 리우, Y., 렁, P., 다이, X., 양, X. P. and Carretero, O. A. (2014). N-아세틸-세릴-아스파르틸-리실 프롤린은 안지오텐신 II 유도 고혈압 쥐에서 심장 콜라겐 가교 및 염증을 감소시킵니다. 임상 과학, 126(1), 85-
- Peng, H., Xu, J., Yang, X. P., Kassem, K. M., 랄렙, I. A., 피터슨, E. 및 랄렙, N. E. (2019). N-아세틸-세릴-아스파르틸-리실 프롤린 치료는 생쥐의 과도한 심근 손상과 심부전으로부터 심장을 보호합니다. 캐나다 생리학 및 약리학 저널, 97(8), 753-765. https://doi.org/10.1139/cjpp-2019-0047 https://pubmed.ncbi.nlm.nih.gov/30998852/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Perego, C., Perego, L., Mancini, M., Leopizzi, M., Corradi, B., Perlini, S., Zerbini, G. 및 Stella, A. (2009). 당뇨병 쥐에서 N- 아세틸-세릴-아스파르틸-리실 프롤린에 의한 심근 섬유증 예방. 임상 과학, 118(3), 211-220. https:// doi.org/10.1042/cs20090234 https://pubmed.ncbi.nlm.nih.gov/20310083/
- Sharma, U. C., Sonkawade, S. D., Baird, A., Chen, M., Xu, S., Sexton, S., Singh, A. K., Groman, A., Turowski, S. G., Spernyak, J. A., Mahajan, S. D. 및 Pokharel, S. (2018). 방사선으로 인한 관상동맥 내피 손상 및 안정시 심근 혈류에 대한 새로운 Ac-SDKP 펩타이드의 효과. 심장 종양학, 4, 8. https://doi.org/10.1186/s40959-018-0034-1 https:// pubmed.ncbi.nlm.nih.gov/31057947/
- 수하일, H., 펭, H., 마트루구이, K. 및 랄렙, N. E. (2024). Ac-SDKP는 NF-κB 발현의 CHOP 매개 억제를 통해 심장 섬유 아세포에서 ER 스트레스 자극 콜라겐 생성을 약화시킵니다. 약리학의 프론티어, 15, 1352222. https://doi.org/10.3389/fphar.2024.1352222 https://pubmed.ncbi.nlm.nih.gov/38495093/
- Zhu, L., Yang, X. P., Janic, B., Rhaleb, N. E., Harding, P., Nakagawa, P., Peterson, E. L. 및 Carretero, O. A. (2016). Ac-SDKP는 IκB 키나아제 및 NF-κB 활성화 억제를 통해 내피 세포에서 TNF-α에 의한 ICAM-1 발현을 억제합니다. 미국 생리학 저널-심장 및 순환기 생리학, 310(9), H1176-H1183. https://doi.org/10.1152/ajpheart.00252.2015 https://pubmed.ncbi.nlm.nih.gov/26945075/
- 린, C. X., 랄렙, N. E., 양, X. P., Liao, T. D., D'Ambrosio, M. A. 및 Carretero, O. A. (2008). 안지오텐신 II 유발 고혈압에서 N- 아세틸-세릴-아스파르틸-리실 프롤린에 의한 대동맥 섬유증 예방. 미국 생리학 저널-심장 및 순환기 생리학, 295(3), H1253-H1261. https://doi.org/10.1152/ajpheart.00481.2008 https://pubmed.ncbi.nlm.nih.gov/18641275/
- 샤르마, U. C., 손카와데, S. D., 스페르니악, J. A., 섹스턴, S., 응우옌, J., 다할, S., 아트우드, K. M., 싱, A. K., 반 베를로, J. H. 및 포카렐, S. (2018). 작은 펩타이드 Ac-SDKP는 다음을 억제합니다.
방사선 유발 심근병증. 순환: 심부전, 11(8), e004867. https://doi.org/ 10.1161/CIRCHEARTFAILURE.117.004867 https://pubmed.ncbi.nlm.nih.gov/30354563/
- 콘테, E., 이엠몰로, M., 푸르시아노, M., 파고네, E., 길리, E., 제노베제, T., 에스포지토, E., 쿠조크리아, S. 및 반체리, C. (2015). 티모신 β4 및 그 N- 말단 단편 Ac-SDKP가 TGF-β 처리 된 인간 폐 섬유 아세포 및 블레오마이신 유발 폐 섬유증의 마우스 모델에 미치는 영향. 생물학적 치료에 대한 전문가 의견, 15(Suppl 1), S211-S221. https://doi.org/ 10.1517/14712598.2015.1026804 https://pubmed.ncbi.nlm.nih.gov/26098610/
- Liu, S., Jin, R., Zheng, G., Wang, Y., Li, Q., Jin, F., Li, Y., Li, T., Mao, N., Wei, Z., Li, G., Fan, Y.,
쉬, H., 리, S. 및 양, F. (2023). Ac-SDKP는 실리카에 의한 상피-근섬유 아세포 변형을 제한하기 위해 섬모 메커니즘을 통해 KIF3A 매개 β- 카테닌 억제를 촉진합니다. 생물의학 및 약물 요법, 166, 115411. https://doi.org/10.1016/j.biopha.2023.115411 https://pubmed.ncbi.nlm.nih.gov/37651800/
- 카이, J., 첸, Q., 메라비 나삽, E., 아타리, S. S. (2022). 만성 폐쇄성 폐 질환의 병리 생리학에 대한 N- 아세틸 세릴-아스파 틸-프롤린 및 혈관 활성 장 펩타이드의 면역 조절 효과. 기초 및 임상 약리학, 36(6), 1005-1010. https:// doi.org/10.1111/fcp.12811 https://pubmed.ncbi.nlm.nih.gov/35763864/
- 왕, J., 첸, Y., 가오, X., 마오, N., 겅, Y., 린, G., 장, G., 리, H., 양, F. 및 쉬, H. (2020). 규폐증을 앓고 있는 쥐에서 항섬유화 효과를 유도할 수 있는 새로운 Ac-SDK(비오틴) 프롤린 펩타이드의 합성 및 동정. 약물 설계, 개발 및 치료, 14, 4315–4326. https://doi.org/10.2147/DDDT.S262716 https://pubmed.ncbi.nlm.nih.gov/33116418/
- 콘테, E., 파곤, E., 길리, E., 프루치아노, M., 이엠몰로, M., 피스토리오, M. P., 임펠리제리, D., 코다로, M., 쿠조크리아, S., & 반체리, C. (2016). 블레오마이신 유발 폐섬유증 모델에서 N-말단 티모신 β4 단편 Ac-SDKP의 예방 및 치료 효과. 온코타겟, 7(23), 33841-33854. https://doi.org/10.18632/oncotarget.8409 https:// pubmed.ncbi.nlm.nih.gov/27029074/
- 카오, W., 야오, S. S., 공, H. B., 주, L. Y., 미아오, Z. Y., 뎅, H. J. (2022). 규폐증이있는 쥐에서 인산화 된 열충격 단백질 27 / SNAI1 경로에 대한 Ac-SDKP의 조절 효과. 중화 라오 동웨이 성 지예 빙 자즈, 40세(2), 90-96. https://doi.org/10.3760/ cma.j.cn121094-20201218-00702 https://pubmed.ncbi.nlm.nih.gov/35255573/
- Gong, H. B., Zhang, C. M., Tang, X. Y., Gong, R. B., Miao, Z. Y. 및 Deng, H. J. (2023). 동물 모델에서 Ac-SDKP에 의한 폐 섬유증 억제에 대한 메타 분석. 중화 라오동웨이 Sheng Zhi 예 Bing To Zhi, 41 (4), 262-270. https://doi.org/10.3760/ cma.j.cn121094-20211115-00565 https://pubmed.ncbi.nlm.nih.gov/37248179/
- Li, Q., Yang, F., Zhang, L.-J., Yan, J.-B., Chen, P., Li, D.-D., Wu, K.-F. (2009). 규폐증 쥐에서 형질 전환 성장 인자 베타 및 결합 조직 성장 인자의 발현 조절을 통한 N- 아세틸-세릴-아스파 틸-리실 프롤린의 항 섬유화 효과 [규폐증이있는 쥐]. 중화 라오 동웨이성 지예빙자쯔, 27세(7), 390-394. PMID: 20039536 https:// pubmed.ncbi.nlm.nih.gov/20039536/
28.Yan, J.-B., Zhang, L.-J. and Li, Q. (2008). [규폐증이있는 쥐의 폐에서 N- 아세틸 세릴-아스파 틸-리 실-프롤린의 항 섬유화 효과]. 중화 라오 동웨이 성 지예 빙 자즈, 26세(7), 401-405. PMID: 19080377 https://pubmed.ncbi.nlm.nih.gov/19080377/
- 진, F., 겡, F., 쉬, D., 리, Y., 리, T., 양, X., 류, S., 장, H., 웨이, Z., 리, S., 가오, X., 카이, W.,
마오, N., 이, X., 리우, H., 선, Y., 양, F. 및 쉬, H. (2021). Ac-SDKP는 TLR4 및 RANKL 신호 경로를 억제하여 실리카에 노출 된 쥐에서 폐 대 식세포와 파골 세포의 활성화를 약화시킵니다. 염증 연구 저널, 14, 1647-1660. https://doi.org/10.2147/ JIR.S306883 https://pubmed.ncbi.nlm.nih.gov/33948088/
- Xu, H., Yang, F., Sun, Y., Yuan, Y., Cheng, H., Wei, Z., Li, S., Cheng, T., Brann, D. 및 Wang, R. (2012). Ac-SDKP의 새로운 항 섬유화 표적 : 규폐증이있는 쥐의 폐에서 근섬유 아세포 분화 억제. PLoS One, 7(7), e40301. https://doi.org/10.1371/journal.pone.0040301 https:// pubmed.ncbi.nlm.nih.gov/22802960/
- Wang, X., Liu, Y., Xu, H., Zhang, X., Li, S., Xu, D., Gao, X., Zhang, L., Zhang, B., Wei, Z., Wang, R., Brann, D. 및 Yang, F. (2016). N- 아세틸 세릴-아스파르틸-리실 프롤린 (Ac-SDKP)에 의해 조절되는 아세틸화 α- 튜불린은 규폐증 유발 쥐 폐 섬유증에서 항 섬유화 효과를 발휘합니다. 과학 보고서, 6, 32257. https://doi.org/10.1038/srep32257 https://pubmed.ncbi.nlm.nih.gov/27577858/
- 덩, H., 쉬, H., 장, X., 선, Y., 왕, R., 브란, D. 및 양, F. (2016). 쥐의 규폐증에서 TGF-β1 / ROCK1 경로-매개 EMT 억제를 통한 여포 상피 세포에 대한 Ac-SDKP의 보호 효과. 독성학 및 응용 약리학, 294, 1-10. https://doi.org/10.1016/ j.taap.2016.01.010 https://pubmed.ncbi.nlm.nih.gov/26785300/
- 장, L., 쉬, D., 리, Q., 양, Y., 쉬, H., 웨이, Z., 왕, R., 장, W., 류, Y., 겅, Y., 리, S., 가오, X. 및 양, F. (2018). N- 아세틸 세릴-아스파르틸-리실 프롤린 (Ac-SDKP)은 소포체 스트레스를 매개하여 II 형 폐포 상피 세포 사멸을 억제하여 규산 섬유증을 완화합니다. 독성학 및 응용 약리학, 350, 1-10. https://doi.org/10.1016/ j.taap.2018.04.025 https://pubmed.ncbi.nlm.nih.gov/29684394/
- Nakagawa, P., Masjoan-Juncos, J. X., Basha, H., Janic, B., Worou, M. E., Liao, T. D., Romero, C. A., Peterson, E. L. 및 Carretero, O. A. (2017). 전신성 홍 반성 루푸스에서 혈압, 신장 손상 및 사망률에 대한 N- 아세틸 세릴-아스파 틸-리실 프롤린의 영향. 생리학적 보고서, 5(2), e13084. https://doi.org/10.14814/phy2.13084 https://pubmed.ncbi.nlm.nih.gov/ 28126732/
- Worou, M. E., Liao, T. D., D'Ambrosio, M., Nakagawa, P., Janic, B., Peterson, E. L., Rhaleb, N. E. 및 Carretero, O. A. (2015). 달 소금에 민감한 쥐의 신장에 대한 N- 아세틸 세릴-아스파르틸-리실 프롤린의 보호 효과. 고혈압, 66(4), 816-822. https://doi.org/10.1161/ HYPERTENSIONAHA.115.05970 https://pubmed.ncbi.nlm.nih.gov/26324505/
- Liao, T. D., Nakagawa, P., Janic, B., D'Ambrosio, M., Worou, M. E., Peterson, E. L., Rhaleb, N. E., Yang, X. P. and Carretero, O. A. (2015). N-아세틸-세릴-아스파르틸-리실-프롤린 : 전신성 홍 반성 루푸스의 마우스 모델에서 신장 보호 메커니즘. 미국 저널 생리학-신장 생리학, 308 (10), F1146-F1154. https://doi.org/10.1152/ajprenal.00039.2015 https://pubmed.ncbi.nlm.nih.gov/25740596/
37.랄렙, N. E., 포카렐, S., 샤르마, U. 및 카레테로, O. A. (2011). 데 옥시 코르티 코스 테론 아세테이트-소금 유발 고혈압 마우스에서 N- 아세틸 -Ser-Asp-Lys-Pro의 신장 보호 효과. 고혈압 저널, 29(2), 330-338. https://doi.org/10.1097/HJH.0b013e32834103ee https:// pubmed.ncbi.nlm.nih.gov/21052020/
- 시부야, K., 가나사키, K., 이소노, M., 사토, H., 오마타, M., 스기모토, T., 아라키, S., 이시키, K., 카시와기, A., 하네다, M. 및 코야, D. (2005). N-아세틸-세릴-아스파르틸-리실-프롤린은 당뇨병을 가진 db/db 마우스에서 신부전 및 중간엽 기질 증식을 예방합니다. 당뇨병, 54(3), 838-845. https://doi.org/10.2337/diabetes.54.3.838 https://pubmed.ncbi.nlm.nih.gov/15734863/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Preziuso, C., Leopizzi, M., Maestroni, S., Corradi, B., Zerbini, G. 및 Stella, A. (2013). 당뇨병 쥐의 신장에 대한 N- 아세틸 세릴-아스파르틸-리실 프롤린의 항 섬유화 효과. 미국 신장학 저널, 37(1), 65-73. https://doi.org/10.1159/000346116 https://pubmed.ncbi.nlm.nih.gov/23327833/
- 장, R., 후, Z., 왕, Y., 치우, R., 왕, G., 왕, L. 및 후, B. (2022). 생체 모방 이중 그물 하이드로겔은 신장 섬유증을 완화하고 신장 재생을 촉진합니다. 저널 재료 화학 B, 10 (45), 9424-9437. https://doi.org/10.1039/d2tb01939f https:// pubmed.ncbi.nlm.nih.gov/36378134/
- Zuo, Y., Chun, B., Potthoff, S. A., Kazi, N., Brolin, T. J., Orhan, D., Yang, H.-C., Ma, L.-J., Kon, V., Myöhänen, T., Rhaleb, N.-E., Carretero, O. A. 및 Fogo, A. B. (2013). 티모신 β4와 그 분해 산물 인 Ac-SDKP는 신장 섬유증의 새로운 복구제입니다. 신장 국제, 84(6), 1166-1175. https://doi.org/10.1038/ki.2013.209 https://pubmed.ncbi.nlm.nih.gov/23739235/
- 왕, M., 리우, R., 지아, X., 무, S. 및 시에, R. (2010). N-아세틸-세릴-아스파르틸-리실 프롤린은 쥐의 신장 염증과 세뇨관 간질 섬유증을 약화시킵니다. 국제 분자 저널 의학, 26 (6), 795-801. https://doi.org/10.3892/ijmm_00000527 https:// pubmed.ncbi.nlm.nih.gov/21042772/
- Liao, T.-D., Yang, X.-P., D'Ambrosio, M., Zhang, Y., Rhaleb, N.-E. and Carretero, O. A. (2010). N- 아세틸-세릴-아스파르틸-리실 프롤린은 신장 질량이 감소 된 고혈압 쥐의 신장 손상 및 기능 장애를 약화시킵니다: 고혈압 연구위원회. 고혈압, 55(2), 459-467. https://doi.org/10.1161/HYPERTENSIONAHA.109.144568 https://pubmed.ncbi.nlm.nih.gov/ 20026760/
- 펭, H., 카레테로, O. A., 라이즈, L., 양, F., 카프케, A. 및 랄렙, N. E. (2001). 알도스테론-소금 유발 고혈압 쥐에서 심장과 신장에 대한 N- 아세틸-세릴-아스파르틸-리실 프롤린의 항 섬유화 효과. 고혈압, 37(2페이지 2), 794-800. https://doi.org/10.1161/01.hyp.37.2.794 https:// pubmed.ncbi.nlm.nih.gov/11230375/
- 오마타, M., 타니구치, H., 코야, D., 가나사키, K., 쇼, R., 카토, Y., 코지마, R., 하네다, M. 및 이노마타, N. (2006). N-아세틸-세릴-아스파르틸-리실-프롤린은 사구체신염이 확립된 WKY 쥐에서 신장 기능 장애와 섬유증의 진행을 약화시킵니다. 미국 신장학회지, 17(3), 674-685. https://doi.org/10.1681/ asn.2005040385 https://pubmed.ncbi.nlm.nih.gov/16452498/
- 나가이, T., 카나사키, M., 스리바스타바, S. P., 나카무라, Y., 이시가키, Y., 키타다, M., 시, S., 카나사키, K. 및 코야, D. (2014). N-아세틸 세릴-아스파르틸-리실 프롤린은 당뇨병 관련
당뇨병 관련 신장 섬유증 및 내피-중간엽 전이. 바이오메드 리서치 인터내셔널, 2014, 696475. https://doi.org/10.1155/2014/696475 https://pubmed.ncbi.nlm.nih.gov/24783220/
- 스리바스타바, S. P., 굿윈, J. E., 카나사키, K. 및 코야, D. (2020). N-아세틸-세릴-아스파틸-리실-프롤린을 이용한 대사 재프로그래밍은 당뇨병성 신장 질환으로부터 보호합니다. 영국 저널 의 약리학, 177 (16), 3691-3711. https://doi.org/10.1111/bph.15087 https:// pubmed.ncbi.nlm.nih.gov/32352559/
- Carde, P., Chastang, C., Goncalves, E., Mathieu-Tubiana, N., Vuillemin, E., Delwail, V., Corbion, O., Vekhoff, A., Isnard, F., Ferrero, J. M. 등(1992). [세라스페니드 (아세틸SDKP): 아라시클린 및 이포스파미드 단일 화학 요법의 독성으로부터 보호하는 조혈 억제제에 대한 I-II 상 임상 시험]. 임상 연구 C R Acad Sci III, 315(13), 545-550. PMID: 1300237 https:// pubmed.ncbi.nlm.nih.gov/1300237/
- 카펠레레, P., 헤켓, B., 롤랑, F., 미우스, L., 도메네, C., 크라코프스키, I., 드 기슬랭, C., 쇼베르뉴, J., 듀포-에스퀘레, F., 카데, P. (1995). [카르보플라틴과 플루오로우라실의 조합으로 치료받은 상부 호흡기 및 위장관 또는 식도의 편평 상피 세포 암종 환자에서 고랄라 타이드의 골수 보호에 대한 무작위 위약 연구]. 황소 암, 82(9), 732-737. PMID: 8535033 https://pubmed.ncbi.nlm.nih.gov/8535033/
- 니타, K., 시, S., 나가이, T., 카나사키, M., 키타다, M., 스리바스타바, S. P., 하네다, M., 카나사키, K. 및 코야, D. (2016). N-아세틸-세릴-아스파틸-리실-프롤린의 경구 투여는 치료 요법을 통해 제1형 및 제2형 당뇨병을 가진 생쥐의 신장 질환을 개선합니다. 바이오메드 연구 국제, 2016 , 9172157 . https://doi.org/10.1155/2016/9172157 https:// pubmed.ncbi.nlm.nih.gov/27088094/
- Tan, H., Zhao, J., Wang, S., Zhang, L., Wang, H., Huang, B., Liang, Y., Yu, X. 및 Yang, N. (2012). Ac-SDKP는 MRL/lpr 마우스에서 루푸스 신염의 진행을 약화시킵니다. 국제 면역 약리학, 14(4), 401–409. https://doi.org/10.1016/j.intimp.2012.07.023https:// pubmed.ncbi.nlm.nih.gov/22922317/
- 마헤슈와리, M., 로메로, C. A., 모누, S. R., 쿠마르, N., 리아오, T. D., 피터슨, E. L. 및 카레테로,
O. A. (2018). 고염식이를하는 비만 쥐에서 N- 아세틸 세릴-아스파 틸-리실 프롤린 (Ac-SDKP)의 신장 보호 효과. 미국 고혈압 저널, 31(8), 902-909. https://doi.org/ 10.1093/ajh/hpy052 https://pubmed.ncbi.nlm.nih.gov/29722788/
- 카마레헤이, M., & 자헤드나삽, H. (2025). SH-SY5Y 세포 및 파킨슨병 쥐 모델에서 6-OHDA에 의한 산화 스트레스 및 ER 스트레스에 대한 Ac-SDKP 펩타이드의 신경 보호 효과. 뉴로펩타이드, 112, 102534. https://doi.org/10.1016/j.npep.2025.102534 https:// pubmed.ncbi.nlm.nih.gov/40544680/
- 하쉐미자데, S., 푸르호다다드, S., 호세인두스트, S., 페즈만, S., 카마레헤이, M., 바드리푸르, A., 오미디, A., 페스테헤이, S. K., 세이팔리안, A. M., 하지가셈, M.. (2022). Ac-SDKP 펩타이드는 전임상 모델에서 척수 손상 후 기능 회복을 개선합니다. 뉴로펩타이드, 92, 102228. https://doi.org/10.1016/j.npep.2022.102228 https://pubmed.ncbi.nlm.nih.gov/ 35101843/
- 장, Y., 장, Z. G., 촙, M., 멩, Y., 장, L., 마흐무드, A. 및 시옹, Y. (2017). N-아세틸-세릴-아스파르틸-리실 프롤린으로 쥐의 외상성 뇌 손상 치료. 저널
신경외과, 126(3), 782-795. https://doi.org/10.3171/2016.3.JNS152699 http:// pubmed.ncbi.nlm.nih.gov/28245754/
- Pejman, S., Kamarehei, M., Riazi, G., Pooyan, S. 및 Balalaie, S. (2020). Ac-SDKP는 C57BL/6 마우스의 해마에서 ER과 산화 스트레스를 억제하여 실험적 자가면역성 뇌척수염의 진행을 약화시킵니다. 뇌 연구 회보, 154, 21–31. https://doi.org/10.1016/j.brainresbull.2019.09.014 https://pubmed.ncbi.nlm.nih.gov/31589901/
- 장, L., 촙, M., 텡, H., 딩, G., 장, Q., 양, X. P., Rhaleb, N. E. 및 Zhang, Z. G. (2014). N-아세틸-세릴-아스파르틸-리실-프롤린과 조직 플라스미노겐 활성화제의 병용 처리는 뇌졸중 후 쥐에서 강력한 신경 보호 효과를 제공합니다. 스트로크, 45(4), 1108-1114. https:// doi.org/10.1161/STROKEAHA.113.004399 https://pubmed.ncbi.nlm.nih.gov/24549864/
- Kim, D. H., Moon, E.-Y., Yi, J. H., Lee, H.E., Park, S. J., Ryu, Y.-K., Kim, H.-C., Lee, S. and Ryu, J..
H. (2015). 티모신 β4 펩타이드 조각은 해마의 신경 생성을 향상시키고 공간 기억을 촉진합니다. 신경과학, 310, 51-62. https://doi.org/10.1016/j.neuroscience.2015.09.017 https://pubmed.ncbi.nlm.nih.gov/26363149/
- 웨이, A., 자오, F., 하오, A., 리우, B. 및 리우, Z. (2022). N-아세틸-세릴-아스파르틸-리실-프롤린(AcSDKP)은 고슴도치 경로를 통해 WTAP/m6A/Ptch1 축을 통해 간 섬유화를 약화시킵니다. 유전자, 813, 146125. https://doi.org/10.1016/j.gene.2021.146125 https://pubmed.ncbi.nlm.nih.gov/34921949/
- Zhang, L., Xu, L. M., Chen, Y. W., Ni, Q. W., Zhou, M., Qu, C. Y. 및 Zhang, Y. (2012). 쥐의 담도 결찰에 의해 유도 된 간 섬유증에 대한 N- 아세틸 세릴-아스파 틸-리 실-프롤린의 항 섬유화 효과. 세계 소화기학 저널, 18(37), 5283-5288. https://doi.org/10.3748/wjg.v18.i37.5283 https://pubmed.ncbi.nlm.nih.gov/23066324/
- Chen, Y. W., Liu, B. W., Zhang, Y. J., Chen, Y. W., Dong, G. F., Ding, X. D., Xu, L. M., Pat, B.,
Fan, J. G. and Li, D. G. (2010). AcSDKP의 기저 수준의 보존은 쥐에서 사염화탄소 유발 간 섬유증을 약화시킵니다. 간학 저널, 53(3), 528-536. https://doi.org/10.1016/ j.jhep.2010.03.027 https://pubmed.ncbi.nlm.nih.gov/20646773/
- Ameri, Z., Shahabi, A., Farsinejad, A., Sattarzadeh Bardsiri, M., Javedani, H., Bagher, Z., Saraee, A. 및 Brouki Milan, P. (2025). 생체 내 토끼 귀 흉터 모델에서 상처 치유를 가속화하고 흉터를 예방하기위한 N- 아세틸 세릴-아스파르틸-리실 프롤린 펩타이드를 함유 한 셀룰로오스 기반 접착 성 하이드로 겔. 국제 생물학적 고분자 저널, 322(1), 144981. https:// doi.org/10.1016/j.ijbiomac.2025.144981 https://pubmed.ncbi.nlm.nih.gov/40480579/
- Fromes, Y., Liu, J. M., Kovacevic, M., Bignon, J. 및 Wdzieczak-Bakala, J. (2006). 아세틸 세린-아스파라기닐-라이신-프롤린 테트라 펩타이드는 피부 플랩 생존을 개선하고 상처 치유를 가속화합니다. 상처 회복 그리고 재생성, 14 (3), 306-312. https://doi.org/10.1111/ j.1743-6109.2006.00125.x https://pubmed.ncbi.nlm.nih.gov/16808809/
- Massé, A., Ramirez, L. H., Bindoula, G., Grillon, C., Wdzieczak-Bakala, J., Raddassi, K., Deschamps de Paillette, E., Mencia-Huerta, J. M., Koscielny, S., Potier, P., Sainteny, F. and Carde,
P. (1998). 아세틸-N-Ser-Asp-Lys-Pro 테트라펩타이드(고랄라타이드)는 독소루비신으로 인한 독성으로부터 보호합니다: 마우스 생존율 향상 및 골수 줄기세포와 전구세포의 보호. 피, 91(2), 441-449. PMID: 9427696 https://pubmed.ncbi.nlm.nih.gov/9427696/
65. 라마사미, V., 응세케, M. 및 스터록, E. (2021). N-아세틸-세릴-아스파르틸-리실-프롤린 서열을 가진 펩타이드의 항섬유화 잠재력 조사. 임상 및 실험 약리학 및 생리학, 48(11), 1558-1565. https://doi.org/10.1111/1440-1681.13565 https:// pubmed.ncbi.nlm.nih.gov/34347311/
- Leeanansaksiri, W., DeSimone, S. K., Huff, T., Hannappel, E. 및 Huff, T. F. (2004). 티모신 베타
4와 그 N-말단 테트라펩타이드인 AcSDKP는 증식을 억제하고 이형성성, 비사멸성 핵 및 비만세포 탈과립화를 유도합니다. 화학 및 생물 다양성, 1(7), 1091–1100. https://doi.org/10.1002/cbdv.200490081 https://pubmed.ncbi.nlm.nih.gov/17191900/