


Beskrivning av de potentiella effekterna av thymosin beta fragment 4 (1-4)(Ac-SDKP) baserat på litteraturen. (Detta är inte en produktbeskrivning, friskrivningsklausul längst ner på sidan)
Ac-SDKP (N-acetyl-seryl-aspartyl-lysyl-prolin) är ett mycket litet proteinfragment som härrör från ett annat naturligt protein som kallas tymosin β4. I kroppen skär speciella enzymer tymosin β4 i mindre bitar, och ett av resultaten av denna process är Ac-SDKP [1]. Denna lilla molekyl är viktig eftersom den hjälper till att skydda organ från ärrbildning (fibros), som uppstår när för mycket styv vävnad byggs upp efter skada eller sjukdom. Problemet är att Ac-SDKP inte stannar särskilt länge i kroppen
- bryts snabbt ned av ett enzym som kallas ACE (angiotensinkonverterande enzym). Intressant nog kan ACE-blockerande läkemedel (t.ex. vissa läkemedel mot högt blodtryck) öka Ac-SDKP-nivåerna upp till fem gånger, vilket förstärker dess skyddande effekt [1].
Till en början trodde forskarna att Ac-SDKP:s huvudsakliga roll var att hindra blodstamceller från att växa för snabbt. Nyare studier visar dock att dess större roll är att läka och skydda vävnader. Det bidrar till att stoppa överdriven proliferation av ärrvävnad i organ som hjärta, lungor, lever och njurar. Det minskar t.ex. aktiviteten hos vissa signaler som får cellerna att producera för mycket kollagen (det viktigaste proteinet i ärr) och förhindrar att reparationsceller (fibroblaster) omvandlas till ärrbildande celler. När det gäller njursjukdom är Ac-SDKP verkligen lovande. Det hjälper inte bara njurarna att fungera bättre, utan minskar också ärrbildningen genom att blockera tillträdet för alltför många immunceller och lindra de skadliga processer som vanligtvis förvärrar skadan. Kort sagt, Ac-
SDKP fungerar som en naturlig "anti-ärrbildande" och "vävnadsskyddande" molekyl i kroppen. Den främjar läkning, minskar inflammation och kan vara användbar vid behandling av sjukdomar där ärrbildning och vävnadsskada spelar en viktig roll.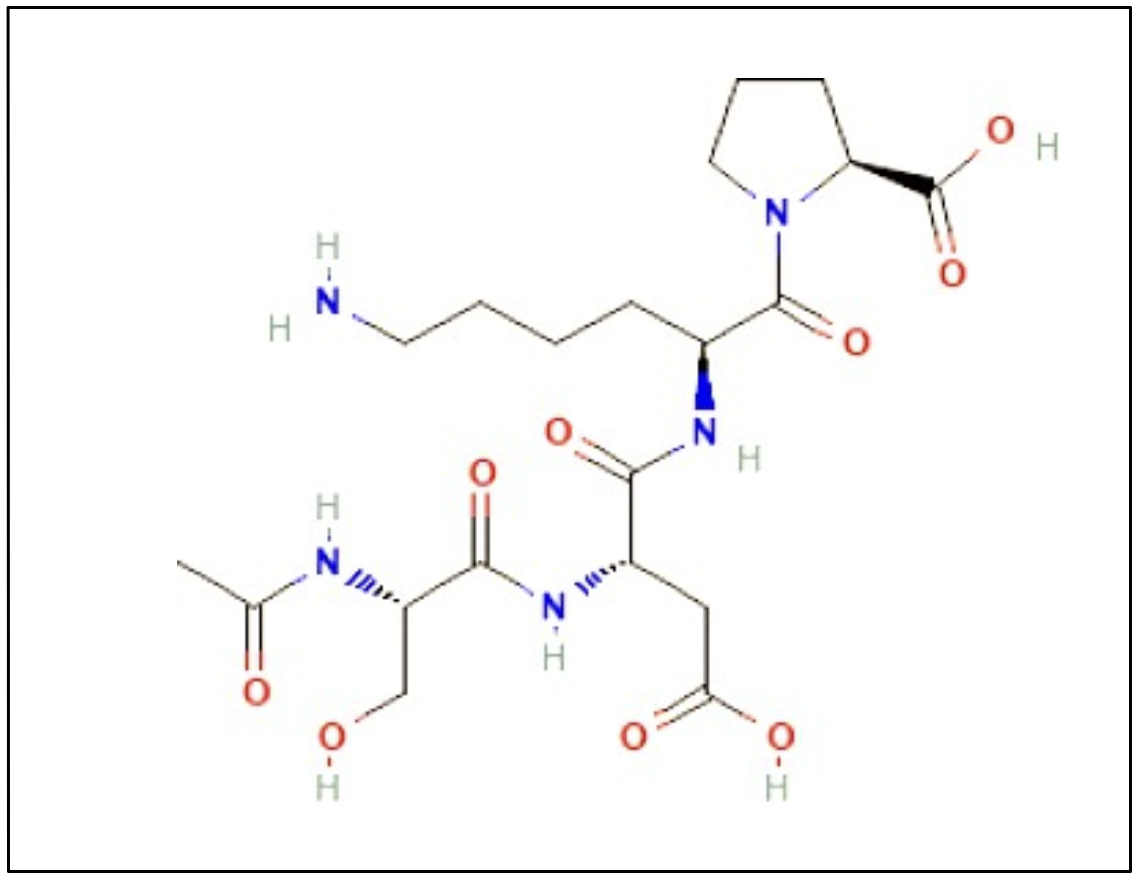
Ac-SDKP skyddar hjärtat (baserat på djurstudier)
Flera vetenskapliga studier har beskrivit potentialen hos Ac-SDKP för hjärthälsa i både akuta och långsiktiga problem. I en musmodell av hjärtinfarkt administrerade Nakagawa et al. Ac-SDKP i en dos på 1,6 mg/kg/dag via en liten subkutan pump och fann tydliga fördelar: hjärtväggssprickor (hjärtrupturer) minskade från 51,0% till 27,3% och dödligheten minskade från 56,9% till 31,8%. Peptiden verkade verka genom att lugna immunceller som kan förvärra skadan (M1-makrofager), men inte påverka reparerande makrofager (M2) eller neutrofiler. Det bromsade också effekten av ett enzym (MMP-9) som bryter ned hjärtvävnad efter infarkt, medan en annan markör (MPO) var oförändrad, vilket tyder på en riktad, avsiktlig verkan [2]. När det gäller ärrbildning i hjärtat orsakad av långvarigt högt blodtryck visade Peng et al. att Ac-SDKP kunde minska befintlig ärrvävnad, inte bara förhindra den. Hos råttor med en väletablerad modell av högt blodtryck minskade daglig administrering av Ac-SDKP i en dos av 400-800 µg/kg (subkutant) under 8 veckor mängden kollagen i hjärtat - det främsta tecknet på ärrbildning - på ett dosberoende sätt (den högre dosen var mer effektiv). Blodtrycket i sig sjönk inte, och de normala reaktionerna på angiotensin I och bradykinin påverkades inte, så nyttan berodde inte enbart på en sänkning av blodtrycket. Blodnivåerna av Ac-SDKP ökade 2-5 gånger, och viktiga "ärrbildande" signaler i hjärtat (TGF-β och CTGF) minskade, vilket bekräftar en direkt antiärrbildningseffekt [3].
Efter en hjärtinfarkt kan ihållande svullnad och ärrbildning leda till hjärtsvikt. Yang et al. testade Ac-SDKP både tidigt (för att förhindra skada) och senare (för att vända skadan). I båda fallen minskade hjärtats totala kollageninnehåll (t.ex. från ~24 till ~15 µg/mg i den förebyggande gruppen och från ~23 till
~14 µg/mg i reverseringsgruppen). Den skadliga ansamlingen av immunceller minskade också: makrofagerna minskade med cirka en tredjedel i varje grupp, och TGF-β-positiva celler minskade parallellt. Dessa fördelar uppnåddes utan att blodtrycket sänktes eller hjärtats storlek minskades, och pumpkraften förbättrades inte markant i profylaxgruppen. Den stadiga minskningen av ärrbildning och inflammation tyder dock på en förbättring av hjärtats struktur över tid [4].
Ac-SDKP kan också förklara några av de "extra" vävnadsfördelar som observerats med ACE-hämmande läkemedel. Rasoul et al. jämförde en modell av angiotensin II-inducerad hypertoni med grupper som fick captopril eller Ac-SDKP (400-800 µg/kg/dag). Detta höjde blodnivåerna flera gånger och reproducerade många av de skyddande egenskaper som liknar ACE-hämmare: mindre cellulär hypertrofi i hjärtat, färre makrofager och mastceller, lägre nivåer av TGF-β och CTGF samt mindre kollagenackumulering. Det är viktigt att notera att dessa fördelar uppstod utan att blodtrycket sänktes eller hjärtats förtjockning minskade, vilket tyder på en
direkt skyddande effekt på hjärtvävnaden [5]. Ac-SDKP bromsar ärrbildning i hjärtat på cellulär nivå. I laboratoriet testade Rhaleb et al. mycket låga doser av Ac-SDKP (0,05-100 nmol/l) i odlade hjärtstödceller (fibroblaster) från råttor och fann två viktiga effekter: en minskning av celltillväxten (DNA-kopiering) till normal nivå vid cirka 1 nmol/l och en minskning av kollagen (det viktigaste proteinet i ärr) som produceras som svar på endotelin-1, en potent ärrbildningssignal. Lägre doser fungerade bäst för kollagen, medan mycket höga doser var mindre effektiva. Peptiden verkade tysta en vanlig cellulär signalomkopplare (p44/42 MAPK/ERK), och en känd MAPK-blockerare gav samma fördel. Enkelt uttryckt får Ac-SDKP fibroblaster att sakta ner både proliferation och överdriven ärrbildning, förmodligen genom att minska aktiviteten hos en viktig tillväxtväg [6].
Dessutom skyddar det hjärtat från skador orsakade av galectin-3. I en studie på vuxna råttor gav Liu et al. galectin-3 (ett protein som framkallar inflammation och ärrbildning) under fyra veckor och observerade fler inflammatoriska celler, tjockare hjärtväggar, svårare ärrbildning runt kärl och mellan celler, högre nivåer av TGF-β/Smad3-signalering (en signalväg som främjar ärrbildning) och svagare pumpning vid ekokardiografi. Tillförsel av Ac-SDKP (800 µg/kg/dag) förhindrade de flesta av dessa förändringar: inflammatoriska celler, ärrbildning och förtjockning av hjärtväggen minskade och hjärtfunktionen förbättrades. Data tyder på att det skyddar hjärtat genom att stänga av TGF-β/Smad3-"ärrbildningsknappen" och dämpa inflammation [7]. Dessutom minskar det ärrbildning i hjärtat vid långvarig hypertoni utan att blodtrycket i sig förändras. Med hjälp av en klassisk vaskulär modell (2 njurar, 1 klämma) på råttor administrerade Rhaleb et al Ac-SDKP (400 µg/kg/dag, subkutant). Även om blodtryck och hjärthypertrofi förblev förhöjda, minskade behandlingen med peptiden signifikant både inflammatoriska och prolifererande celler i myokardiet. En viktig effekt var att den interstitiella kollagenfraktionen normaliserades och minskade från cirka 10,1% hos hypertensiva råttor till cirka 5,4%, en nivå som var nästan identisk med den hos kontrolldjur (≈5,3%). Kort sagt, det minskade de skadliga vävnadsskadorna även när tryckbelastningen förblev oförändrad, vilket tyder på en direkt roll i vävnadsläkning [8]. I kombination med tymosin-β4 främjar Ac-SDKP dessutom vävnadsreparation efter hjärtinfarkt. I en narrativ översikt fann Cavasin et al. att thymosin-β4 främjar både cellmigration och cellöverlevnad. Dess derivat, Ac-SDKP, ger ytterligare fördelar genom att fungera som ett anti-fibrotiskt medel vid hypertoni. I modeller av hjärtinfarkt visade sig Ac-SDKP vända ärrbildning och minska inflammation. Det främjade också angiogenesen, vilket visades i både in vivo- och ex vivo-studier. Dessutom minskade Ac-SDKP risken för ruptur av hjärtväggen hos möss, vilket belyser dess terapeutiska potential vid kardiovaskulär reparation. Det finns en hel del överlappning i fördelarna, vilket tyder på att Ac-SDKP bär en del av den terapeutiska effekten av tymosin β4. Forskaren nämnde dock att studier på människa fortfarande behövs för att bekräfta dessa laboratorieresultat och djurstudier [9].
Dessutom minskar Ac-SDKP aktiviteten hos vävnadsnedbrytande enzymer som utlöses av IL-1β. I fibroblaster från hjärtat hos vuxna råttor visade Rhaleb et al. att interleukin-1β (IL-1β), en proinflammatorisk cytokin,
ökade signifikant uttrycket av matrixmetalloproteinaser (MMP-2, MMP-9 och MMP-13). Dessa enzymer bryter ned komponenter i den extracellulära matrisen och bidrar till negativ remodellering. Ac-SDKP förändrade inte det basala uttrycket av MMP. Däremot hämmade det kraftigt den IL-1β-inducerade ökningen av nivåerna av dessa enzymer. Samtidigt ökade Ac-SDKP uttrycket av vävnadshämmare av metalloproteinaser (TIMP-1 och TIMP-2), naturliga hämmare av MMP-aktiviteten. Detta bidrog till att återställa balansen i matrisomsättningen. Ac-SDKP minskade också aktiveringen av två viktiga signalvägar som driver inflammation och proliferation: NF-κB och ERK/MAPK. Intressant nog ökade inte kollagenproduktionen i denna modell genom IL-1β-stimulering. Ac-SDKP hade inte heller någon effekt på kollagensyntesen. Detta tyder på att dess skyddande roll beror på en selektiv ombalansering av vävnadsombyggnaden, snarare än en allmän förändring av kollagenproduktionen. Sammantaget tyder dessa resultat på att Ac-SDKP kan skydda myokardiet från patologisk remodellering genom att återbalansera matrisregleringen [10].
Ac-SDKP skyddar mot autoimmun hjärtskada hos råttor. I en modell av T-cellsinducerad myokardit behandlade Nakagawa et al. immuniserade Lewis-råttor med Ac-SDKP och observerade att hjärtfunktionen bevarades, både systoliskt och diastoliskt. Behandlingen minskade också hjärtförstoringen, reducerade ärrbildningen och bevarade en friskare myokardstruktur. Histologisk analys visade ett lägre antal infiltrerande immunceller, inklusive makrofager, dendritiska celler och T-lymfocyter. Samtidigt minskade nivåerna av viktiga inflammatoriska mediatorer som cytokiner (IL-1α, TNF-α, IL-2, IL-17), kemokiner (CINC-1, IP-10), adhesionsmolekyler (ICAM-1, L-selectin) och matrixmetalloproteinaser signifikant. Intressant nog förändrade Ac-SDKP inte nivåerna av myosinspecifika autoantikroppar eller antigenspecifika T-cellssvar. Detta tyder på att dess kardioprotektiva effekt främst beror på en minskning av rekryteringen av immunceller och hämning av inflammatoriska mediatorer, snarare än en förändring av produktionen av autoantikroppar eller T-cellsaktivering [11].
Ac-SDKP minskar inflammation och bildning av kollagena tvärbindningar vid angiotensin II-inducerad hypertoni. González et al. gav angiotensin II till råttor under tre veckor och en separat grupp behandlades med Ac-SDKP. Blodtryck och hjärthypertrofi förblev förhöjda i båda grupperna, men Ac-SDKP förhindrade ökningen av både totalt kollagen och tvärbundet kollagen. Denna skyddande effekt berodde på hämning av lysyloxidas (LOX) mRNA och LOXL1-protein, enzymer som är ansvariga för tvärbindning av kollagen och ärrförstyvning. Dessutom minskade Ac-SDKP TGF-β-uttrycket, hämmade NF-κB-aktiveringen och minskade infiltrationen av CD4⁺ och CD8⁺ T-lymfocyter och CD68⁺-makrofager i hjärtvävnaden. Det är viktigt att notera att inflödet av CD4⁺ T-celler korrelerade med LOXL1-uttrycket, vilket tyder på en mekanistisk koppling mellan immuncellsaktivitet och fibros. Dessa resultat belyser att Ac-SDKP utövar potenta anti-fibrotiska och anti-inflammatoriska effekter oberoende av dess effekter på blodtrycket [12].
Dessutom skyddar det hjärtat efter hjärtinfarkt hos möss i de tidiga och sena stadierna. Peng et al. administrerade Ac-SDKP (1,6 mg/kg/dag) till C57BL/6J-möss efter hjärtinfarkt. Under den första veckan minskade behandlingen antalet dödliga väggrupturer, minskade ICAM-1-nivåer, minskade makrofaginflödet och gelatinspjälkningsaktiviteten, hämmade p53 och minskade myokardcelldöden; samtidigt ökade antalet små blodkärl vid skadans kant, vilket tyder på bättre tillväxt av nya kärl. Vid vecka fem uppvisade hjärtan mindre interstitiellt kollagen, bevarad struktur, lägre nivåer av endoplasmatisk retikulumstress (CHOP) och bibehållen SERCA2 (avgörande för kalciummetabolismen) samt generellt bättre funktion. Kort sagt minskar den tidiga skadan och främjar en sundare långsiktig remodellering [13].
I en annan studie minskade Ac-SDKP ärrbildningen i hjärtat och förbättrade den diastoliska funktionen vid diabetisk kardiomyopati. Castoldi et al. framkallade diabetes hos råttor och två månader senare påbörjades behandling med Ac-SDKP (1 mg/kg/dag med minipumpar) under åtta veckor. Råttor med diabetes utvecklade höga sockernivåer, markant interstitiell och perivaskulär fibros samt högre TGF-β1- och fosfo-Smad2/3-nivåer i hjärtat. Ac-SDKP minskade båda typerna av fibros och reducerade TGF-β/Smad-signaleringen, även hos djur som fick ACE-hämmaren ramipril. Ultraljud av hjärtat visade att diabetes försämrade systole och diastole; insulin och ramipril återställde båda funktionerna, medan Ac-SDKP delvis förbättrade diastole (diastolisk funktion). Dessa data belyser den antifibrotiska nyttan med en måttlig ökning av funktionen i denna modell [14]. Dessutom skyddar den koronarkärlen från strålningsskador och bevarar blodflödet. I en råttmodell med thoraxbestrålning administrerade Sharma et al Ac-SDKP subkutant under 18 veckor. Strålningen minskade blodflödet i vila, dödade endotelceller, ökade fibrosen i kranskärlen och rubbade tight junction-proteinerna (claudin-1, JAM-2). Detta återställde blodflödet till det normala, bevarade endotelcellerna, minskade fibrosen och återställde tight junctions. Laboratoriestudier visade att Ac-SDKP tränger in i endotelceller och minskar strålningsinducerade nivåer av reaktiva syreföreningar; hos levande djur koncentrerades den märkta peptiden i endotelceller inom några timmar. Dessa resultat tyder på vaskulärt skydd, mindre oxidativ skada och bättre mikrovaskulär integritet efter bestrålning [15]. Dessutom minskar den stressinducerade ärrbildningen i hjärtats stödjeceller. I mänskliga hjärtfibroblaster förbehandlades cellerna med Ac-SDKP (10 nM) och behandlades sedan med tunicamycin (0,25 µg/ml), vilket orsakar "proteinstress" inuti cellfabriken (endoplasmatiskt retikulum). Ac-SDKP hjälpte till att stoppa stressade celler från att producera för mycket kollagen. Det verkade genom att lugna cellernas reaktion på stress, minska aktiviteten hos ett stressprotein som kallas CHOP och minska aktiviteten hos en inflammatorisk switch som kallas NF-KB. Det sänkte också nivåerna av IL-6, den signal som utlöser inflammation. När CHOP reducerades genetiskt fortsatte det att minska NF-κB- och typ I-kollagenaktiviteten på både protein- och mRNA-nivå, vilket bekräftade att det rörde sig om samma väg [16]. Enkelt uttryckt: under stressförhållanden hjälper detta cellerna att undvika överdriven produktion av ärrprotein.
Dessutom minskar den inflammation i kärlväggen som orsakas av TNF-α. I endotelceller från kranskärl hos människa ledde TNF-α-stimulering till en signifikant ökning av uttrycket av ICAM-1. Denna adhesionsmolekyl spelar en nyckelroll när det gäller att främja leukocyters vidhäftning till blodkärlens yta. Förbehandling med Ac-SDKP minskade ICAM-1-nivåerna signifikant på ett dosberoende sätt. En mekanistisk analys visade att denna effekt förmedlades genom hämning av signalkaskaden IKK → IκB → NF-κB, som är avgörande för aktiveringen av inflammatoriskt genuttryck. Intressant nog var två andra signalvägar, p38 MAPK och ERK, oförändrade, vilket tyder på att Ac-SDKP selektivt interagerar med NF-κB-signalvägen för att utöva antiinflammatoriska effekter i endotelceller [17]. Ac-SDKP bidrar till att hålla kärlväggen i vila och minskar dess "klibbighet" under inflammation. Dessutom förhindrar det ärrbildning i stora artärer vid angiotensin II-inducerad hypertoni, även utan att sänka själva trycket. Hos angiotensin II-behandlade råttor minskade Ac-SDKP kollagenackumuleringen i aorta och reducerade signaler (mRNA för kollagen typ I och III) som orsakar ärrbildning. Det minskade också överaktiviteten hos proteinkinas C, oxidativ stress, ICAM-1 och makrofagers inträde i kärlväggen. Fibrossignalerna minskade (mindre TGF-β1- och Smad2-aktivitet), medan den naturliga hämmaren av denna signalväg (Smad7) ökade. Blodtrycket och aortatjockleken förblev höga, så dessa fördelar för kärlväggen berodde på direkta vävnadseffekter snarare än tryckförändringar [18].
Ac-SDKP skyddar också hjärtat från strålningsskador. Hos råttor som fick riktad thoraxstrålning bevarade 18 veckors behandling med Ac-SDKP hjärtfunktionen, minskade ackumuleringen av extracellulär matris och fibros, minskade inflödet av makrofager och minskade celldöden i hjärtat. Nivån och frisättningen av Mac-2 (galectin-3), ett makrofagprotein som är ansvarigt för fibros, minskade också. Ac-SDKP observerades inuti makrofager nära cellkärnan och förhindrade den strålningsutlösta frisättningen av Mac-2; när fibroblaster saknade Mac-2 orsakade strålningen mycket svagare ärrbildningssignaler [19]. Det bidrar till att bibehålla friskare kärl- och hjärtvävnad efter bestrålning genom att minska inflammation och ärrbildning.
Ac-SDKP för lunghälsa (baserat på djurstudier)
Ac-SDKP visade mer potenta antifibrotiska effekter än thymosin-β4 i lungmodeller. För det första, i laboratoriestudier med lungceller från personer med idiopatisk lungfibros (IPF), bromsade den överdriven celltillväxt och minskade två TGF-β-inducerade fibrosignaler: α-SMA och kollagen. Hos möss som fick bleomycin för att framkalla lungskada hjälpte thymosin-β4 i ett tidigt skede (dag 7) genom att minska inflammation och tidig ärrbildning, men stoppade inte fibros i senare skeden (dag 14-21). Dessa resultat tyder på att Ac-SDKP blockerar de primära stadierna av ärrbildning i celler och kan ge mer stabila och långvariga anti-fibrotiska fördelar än dess föregångare, tymosin-β4 [20]. Dessutom hämmar det kiseldioxidassocierad lungärrbildning genom att återställa KIF3A och stänga av β-cateninsignalering
. I synnerhet vid silikos var KIF3A-nivåerna låga i patientprover och i lungor från råttor. När KIF3A återställdes minskade aktiviteten hos β-catenin och dess nedströmsdrivare MRTF-A och SRF, vilket bromsade övergången från epitel till myofibroblast (EMyT) i samband med ärrbildning. Detta ökade konsekvent KIF3A-funktionen och minskade följaktligen β-catenin/MRTF-A/SRF-signaleringen. Men när KIF3A eliminerades förlorade Ac-SDKP dessa fördelar, vilket bekräftar att KIF3A är avgörande för dess antifibrotiska verkan [21].
I en annan studie dämpade Ac-SDKP i kombination med VIP KOL-relaterade förändringar orsakade av cigarettrökning hos möss. Det minskade oxidativ skada (lägre nivåer av MDA), ärrbildning (lägre nivåer av hydroxyprolin) och en viktig drivkraft för fibros (lägre nivåer av TGF-β). Samtidigt minskade inflammatoriska cytokiner (TNF-α, IL-1β, IL-6) och antioxidantskyddet förbättrades (högre SOD-aktivitet). På motsvarande sätt uppvisade lungvävnaden i mikroskopet mindre inflammation och mindre strukturell remodellering. Kombinationen av dessa substanser gav antioxidativa, antiinflammatoriska och anti-fibrotiska fördelar i en modell för rökskada [22, 23]. Ac-SDKP visade också signifikanta resultat både när det gällde att förebygga och behandla bleomycininducerad lungfibros. Hos CD-1-möss administrerades Ac-SDKP (0,6 mg/kg, i.p.) från dag 0 eller Dag 7 förbättrade överlevnaden och minskade den bleomycinrelaterade viktnedgången. Dessutom uppvisade lungorna mindre svullnad och färre invasiva immunceller, friskare vävnadsstruktur och mindre fibros: både kollagenfärgning och lösliga kollagennivåer minskade. Mekanistiskt sett minskade de pro-fibrotiska signalerna IL-17 och TGF-β, och α-SMA minskade, vilket tyder på färre myofibroblaster. Det är viktigt att notera att fördelarna uppstod i både tidiga (profylaktiska) och fördröjda (terapeutiska) scheman [24]. Dessutom minskar det silikosinducerad lungfibros genom P-HSP27/SNAI1-vägen. Hos råttor orsakade silikos en ökning av P-HSP27, SNAI1, α-SMA och kollagen I/III i lungvävnaden. Ac-SDKP, som administrerades antingen före exponering eller efter sjukdomsdebut, minskade däremot alla dessa markörer och minskade antalet celler som var positiva för både P-HSP27 och α-SMA vid bilddiagnostik. Det är viktigt att notera att administrering av Ac-SDKP till friska kontroller inte förändrade proteinuttrycket, vilket tyder på att dess effekt är selektiv för sjuka lungor [25].
Dessutom har det visat starka antifibrotiska effekter i flera djurstudier. En metaanalys som omfattade 18 randomiserade studier (428 djur, 2008-2021) visade att Ac-SDKP minskade flera fibrosignaler jämfört med obehandlade modeller: α-SMA (SMD -2,44), typ I-kollagen (SMD -5,36), typ III-kollagen (SMD -3,07), TGF-β (SMD -2,88) och lungnodulernas area (SMD
-Vidare var hydroxyprolin, en kemisk avläsning av kollagen, också signifikant förändrad [SMD 7,62; 95% CI 4,90-10,33; P = 0,000], vilket överensstämmer med en effekt på kollagenomsättningen. Dessa resultat tyder på att Ac-SDKP konsekvent bromsar fibros i modeller för lungsjukdomar [26]. I en annan studie minskade det TGF-β- och CTGF-nivåerna, vilket hämmade kiseldioxidassocierad lungärrbildning hos råttor. Råttorna fick kiseldioxid för att framkalla fibros, följt av profylaktisk eller terapeutisk Ac-SDKP (800 µg/kg/dag). Jämfört med kontrollgruppen för silikos minskade proteinnivåerna av TGF-β1 (till ~0,244 ± 0,016) och CTGF (till ~0,241 ± 0,017) signifikant i de behandlade lungorna. På samma sätt minskade mRNA-nivåerna
minskade och CTGF-mRNA var betydligt lägre jämfört med modellgrupperna (P<0,05). I profylaxgruppen låg både protein och mRNA för TGF-β1 signifikant under nivåerna i den 8 veckor långa silikosmodellen (P<0,05). Slutligen bekräftade lunghistologin mindre fibros [27]. Dessutom hämmar det kollagenackumulering och förbättrar lungstrukturen vid silikos. Råttor som utsatts för silikos fick Ac-SDKP antingen efter skadan (behandling) eller 48 timmar före exponeringen (profylax). I behandlingsgrupperna, jämfört med silikosmodellerna, minskade silikosnodulområdet till 84,28% och 67,93%, hydroxyprolin till 70,89% och 58,18%, typ I-kollagen till 71,08% och 58,13% och typ III-kollagen till 80,13% och 70,70% (vid respektive tidpunkt). I de profylaktiska grupperna, jämfört med den 8-veckors silikosmodellen, minskade noduli till 61 13%, hydroxyprolin till 60 27% och kollagen typ I och III till 40 13% och 65 77%. På motsvarande sätt visade HE- och VG-färgning mildare fibros. Detta minskade både kollageninnehållet och den synliga ärrbildningen [28].
Dessutom skyddar den lungorna och skelettet genom att lugna makrofagerna när de utsätts för kiseldioxid. Hos råttor och i cellmodeller aktiverade kiseldioxid TLR4 och RANKL, vilket orsakade lunginflammation och benresorption genom osteoklaster. Behandling med Ac-SDKP hämmade däremot TLR4- och RANKL-signaleringen, skyddade lungelastinet, minskade lunginflammationen och reducerade makrofagaktiveringen. I skelettet blockerade Ac-SDKP samtidigt osteoklastdifferentieringen och bidrog till att bibehålla bentätheten och mikroarkitekturen. Dessa resultat tyder på ett dubbelt skydd: friskare lungor och stabilare ben vid kiseldioxidrelaterade sjukdomar [29]. Det minskar också ärrbildning i lungorna genom att hämma mognaden av ärrbildande celler. TGF-β1 stimulerar normalt lungornas stödjeceller (fibroblaster) att omvandlas till myofibroblaster och producera ytterligare kollagen. När Ac-SDKP administrerades före TGF-β1 minskade nivåerna av α-SMA och kollagen, och nivåerna av TGF-β1 och dess receptor minskade också. Hos råttor med kiseldioxidinducerad lungskada minskade därefter administrering av Ac-SDKP före eller efter exponering TGF-β1-nivåerna, RAS-signalerna och SRF-aktiviteten, och minskade antalet α-SMA-positiva myofibroblaster i lungknutor. Som ett resultat minskade kollagenackumuleringen, vilket visar på skydd mot fibros [30, 31]. Dessutom skyddar Ac-SDKP alveolarhinnan genom att förhindra att epitelceller omvandlas till ärrbildande celler. Under påverkan av skadesignaler som silikos och TGF-β1 minskar epitelmarkörer (E-cadherin, SP-A), medan mesenkymala och fibrosrelaterade markörer (vimentin, α-SMA, kollagen I/III) ökar. Med Ac-SDKP vändes denna skadliga förändring: epitelidentiteten bevarades, fibros-markörerna minskade och TGF-β1/ROCK1-vägen dämpades. Följaktligen förblev den känsliga alveolära ytan närmare normal och mindre benägen för ärrbildning [32]. Dessutom lindrar det "proteinfabrikens" stress och celldöd i alveolära celler, vilket i sin tur minskar ärrbildningen i lungorna. När silikos slår till uppvisar cellerna höga ER-stressignaler (GRP78, fosforylerad PERK och eIF2α), CHOP och caspase-12, och många celler dör. Med Ac-SDKP - och även med ER-stressblockeraren 4-PBA - minskade dessa stressmarkörer, celldöden minskade i cellanalyser och hos råttor, och lungkollagenet minskade. Sammantaget bidrar Ac-SDKP genom att lugna PERK/eIF2α/CHOP-vägen och caspase-12 till att skydda epitelskiktet och bromsa utvecklingen av fibros [33].
Ac-SDKP för god njurhälsa (baserat på djurstudier)
Ac-SDKP skyddar njurarna vid lupus utan att sänka blodtrycket. Nakagawa et al (2017) visade att det hos lupusbenägna NZBWF1-möss bevarade njurfilter (mindre glomerulär skleros) och minskade den totala skadan utan att sänka det systoliska blodtrycket. Uppkomsten av svår hypertoni, urinalbumin och för tidig död inträffade senare med Ac-SDKP, men dessa förseningar var inte statistiskt signifikanta [34]. Substansen skyddar också njurfunktionen under saltstress. Worou et al (2015) studerade saltkänsliga Dahl-råttor som behandlades med 800 eller 1600 µg/kg/dag under sex veckor. Blodtrycket fortsatte att stiga till följd av saltdieten, men njurarna uppvisade mindre inflammation, mindre fibros och friskare filter. Endast den högre dosen minskade albuminhalterna i urinen hos saltkänsliga råttor. Hos den mer resistenta stammen (SS13BN) förhindrade båda doserna albuminläckage och strukturella skador [35]. Detta tyder på att den skyddande effekten var oberoende av blodtrycket. Peptiden minskar också immunmedierad njurskada vid lupus. Liao et al (2015) fann att behandlade lupusbenägna möss efter 20 veckor hade bättre njurfunktion, även om nivåerna av autoantikroppar mot lupus var oförändrade. Njurarna innehöll färre invasiva immunceller som makrofager och T-celler. Inflammatoriska signaler som cytokiner och kemokiner var lägre, och aktivering av komplementproteiner (C5-9), RANTES, MCP-5 och ICAM-1 hämmades. Som ett resultat av detta bevarades filtreringsfunktionen och de mikroskopiska skadorna minskade [36].
I en annan studie förhindrar det hypertonirelaterad njurskada trots ihållande högt blodtryck. Rhaleb et al (2011) visade att Ac-SDKP (800 µg/kg/dag i 12 veckor) hos DOCA-saltbehandlade möss minskade ärrbildning i njurarna (kollagen), expansion av filtrationsmatrisen och inflöde av monocyter/makrofager, samtidigt som blodtrycket förblev förhöjt. Det är viktigt att notera att albuminhalten i urinen normaliserades - från 41 ± 5 µg till 13 ± 3 µg per 10 g kroppsvikt och dag, vilket närmade sig kontrollnivåerna - och att förlusten av nefrin (ett viktigt protein i filtrationsgapet) delvis återställdes [37]. Ac-SDKP skyddade således filtrationsbarriären och minskade ärrbildningen oavsett blodtryck. Dessutom skyddar det mot ärrbildning och diabetesinducerad njurdysfunktion. Shibuya et al (2005) visade att hos db/db-möss med typ 2-diabetes resulterade åtta veckors administrering av Ac-SDKP via minipumpar i en ungefär trefaldig ökning av Ac-SDKP-koncentrationen i plasma utan någon förändring av blodsockernivån. Som ett resultat av detta förhindrades glomerulärt ödem, överdriven proliferation av mesangial matris och ackumulering av extracellulär matris, och kreatininnivåerna i plasma närmade sig det normala. Albuminuri minskade också, även om minskningen inte var statistiskt signifikant. Mekanistiskt blockerade det Smad3 från att komma in i cellkärnan och minskade därmed TGF-β/Smad-signalering i samband med fibros [38]. Ac-SDKP minskar dessutom ärrbildning i njurarna vid diabetes och är en ytterligare fördel utöver ACE-hämning. Castoldi et al (2013) framkallade diabetes hos råttor och administrerade sedan Ac-SDKP (1 mg/kg/dag), ramipril (3 mg/kg/dag), båda läkemedlen tillsammans eller placebo. Först utvecklade obehandlade diabetiska råttor höga blodsockernivåer, högre albuminhalter i urinen (albuminuri), njurfibros
njurfibros och minskade glomerulära nefrinnivåer. Med enbart Ac-SDKP minskade njurfibrosen men albuminuri förbättrades inte. Med ramipril minskade både albuminuri och fibros och nefrinnivåerna återställdes. Det är viktigt att kombinationen av Ac-SDKP och ramipril gav en större minskning av fibrosen än enbart ramipril, även om albuminuri inte förbättrades ytterligare. Ac-SDKP minskar fibrosen vid diabetesnefropati och förstärker det antifibrotiska skyddet hos ACE-hämmare utan ytterligare effekt på albuminuri [39].
Intressant nog utvecklade Zhang et al (2022) en bioinspirerad hydrogel med dubbla nätverk bestående av gelatin och curcumin-zink, belagd med DOPA och funktionaliserad med immobiliserad Ac-SDKP. Detta system utformades för att övervinna begränsningarna hos fria läkemedel, inklusive dålig löslighet, absorption och stabilitet. In vivo-applikationer i delvis nefrektomerade råttnjurar visade att hydrogelen konsekvent reducerade lokal fibros, främjade angiogenes och stimulerade bildandet av nya njurtubuli. Materialprovning bekräftade adekvat porositet, mekanisk hållfasthet och biokompatibilitet, vilket ytterligare stödde dess terapeutiska potential [40]. Jämförande studier belyser också de distinkta och stadieberoende effekterna av tymosin-β4 (Tβ4). Zuo et al (2013) använde modeller av ensidig ureteral obstruktion hos möss av vildtyp och möss som uteslutits från PAI-1-genen för att utvärdera Ac-SDKP, Tβ4 och Tβ4 i kombination med prolyloligopeptidashämmaren (POP). Ac-SDKP minskade konsekvent fibrosen hos båda genotyperna, vilket visades genom lägre kollagen- och fibronektinavsättning, färre aktiverade myofibroblaster och makrofager samt minskad pro-fibrotisk signalering [41]. Wang et al (2010) visade dessutom att Ac-SDKP hämmade njurinflammation och obstruktionsinducerad fibros. Hos råttor med unilateral ureteral obstruktion minskade 14-dagars behandling tubulointerstitiell ärrbildning och inflammatoriska förändringar vid histologisk undersökning. Peptiden minskade infiltrationen av renala makrofager (ED-1) och sänkte proteinnivåerna av MCP-1, NF-κB, α-SMA och TGF-β1 i tubulära och interstitiella celler. Genuttrycket av MCP-1 och TGF-β1 minskade också, vilket tyder på att detta minskade både inflammatorisk transport och aktivering av extracellulär matris, vilka är viktiga drivkrafter bakom njurfibros [42]. Ytterligare bevis kommer från modeller av hypertoni med kronisk njurskada. Liao et al (2010) administrerade Ac-SDKP i en dos på 800 µg/kg/dag till råttor efter 5/6 nefrektomi, antingen före skadan (förebyggande) eller efter skadan (reversering). Trots ihållande hypertoni och vänsterkammarhypertrofi minskade behandlingen albuminuri, makrofaginfiltration och kollagennivåer i njurarna i båda grupperna. Förlusten av nefrin i glomeruli var också delvis bevarad eller återställd, vilket tyder på förbättrad integritet hos filtrationsbarriären. Dessa resultat belyser att peptiden gav njurskydd i både tidiga och avancerade stadier av sjukdomen, främst genom antiinflammatoriska och antifibrotiska effekter snarare än genom blodtryckskontroll [43].
Vid aldosteron-salt-hypertension minskade peptiden ärrbildningen i både hjärta och njure utan att påverka blodtrycket. Peng et al (2001) studerade råttor som fått en njure bortopererad och som
gavs aldosteron och salt i sex veckor. Denna behandling höjde blodtrycket, förstorade hjärtat och njurarna och ökade ärrvävnaden (kollagen) tillsammans med celltillväxtmarkörer (PCNA). Administrering av Ac-SDKP, särskilt i den högre dosen 800 µg/kg/dag, minskade kollagenet och PCNA signifikant på ett dosberoende sätt. Det är viktigt att notera att blodtryck och organförstoring förblev oförändrade, medan en lägre dos (400 µg/kg/dag) gav partiell effekt [44]. Vid immunmedierad njursjukdom förbättrade peptiden njurfunktionen och minskade fibrosen. Omata et al (2006) behandlade råttor med anti-GBM-nefrit, med start 14 dagar efter sjukdomsdebut, med Ac-SDKP i dosen 1 mg/kg/dag under fyra veckor. Jämfört med obehandlade djur minskade proteinnivåerna i urinen, urea- och kreatininkoncentrationerna i plasma och kreatininclearance förbättrades. Vävnadsanalys visade mindre glomerulär skleros och interstitiell fibros. Mekanistiskt minskade peptiden fibronektin-, kollagen- och TGF-β1-nivåerna, minskade Smad2-signaleringen, ökade Smad7 och minskade makrofagackumuleringen i njurvävnaden [45]. Vid diabetes blockerade peptiden ärrbildning i njurarna genom att förhindra att blodkärlsceller omvandlas till ärrbildande celler. Nagai et al (2014) visade att Ac-SDKP återställde naturliga skyddsvägar, inklusive let-7-mikroRNA och FGF-receptorsignalering, som hämmades av diabetes. Som ett resultat av detta minskade fibrosen och endotel-till-mesenkymal övergång (EndMT). Det är viktigt att notera att kombinationen med en ACE-hämmare förbättrade njurskyddet ännu mer än enbart ACE-hämning [46].
I en annan studie återställde peptiden en sund metabolism i njurarna och minskade fibrosen. Srivastava et al (2020) jämförde ACE-hämmare, ARB, Ac-SDKP och kombinationer av dessa hos möss med diabetes. De blockerade också dess naturliga bildning med en prolinoligopeptidashämmare (POPi). Resultaten visade att Ac-SDKP förmedlade effekterna av ACE-hämmare genom att omprogrammera njurmetabolismen: SIRT3 återställdes, den mitokondriella fettsyraoxidationen förbättrades och det onormala glukosutnyttjandet minskade. POPi minskade däremot de naturliga nivåerna, påskyndade fibrosen och rubbade den metaboliska balansen. Viktigt att notera är att ACE-hämmare (men inte ARB) delvis återställde nivåerna och minskade fibrosen. Både ACE-hämmare och Ac-SDKP minskade mesenkymal remodellering och minskade kollagen I- och fibronektinnivåerna i diabetiska njurar [47].
I cancerterapi hjälpte Ac-SDKP-analogen till att bevara blodceller under kemoterapi. Carde et al (1992) testade seraspenid i en dubbelblind, crossover fas I-II-studie med 53 patienter som fick cytarabin eller ifosfamid. Jämfört med kontrollperioderna hade patienter som behandlades med seraspenid ett bättre skydd av perifera blodkroppar mot kemoterapitoxicitet. Det tolererades väl och visade inga biverkningar. Dessa resultat tyder på att Ac-SDKP-liknande peptider kan skydda benmärgen under cytotoxisk behandling [48]. I en annan studie minskade inte peptiden blodtoxiciteten, men var säker. Cappelaere et al (1995) studerade 84 patienter med avancerad skivepitelcancer som fick karboplatin och en kontinuerlig dos 5-fluorouracil, tillsammans med
placebo eller goralatid (Ac-SDKP) i en dos av 12,5 eller 62,5 µg/kg/dag. Under 221 kemoterapicykler fanns det inga skillnader mellan grupperna vad gäller lägsta blodvärde för leukocyter, granulocyter, trombocyter eller hemoglobin. Varaktigheten av toxiciteten förblev också oförändrad. Anemi och lymfopeni var dock vanligare med goralatid. Sammantaget tolererades läkemedlet väl, men i dessa doser förhindrade det inte kemoterapirelaterad blodcellsförlust [49].
Vid både typ 1- och typ 2-diabetes förbättrade peptiden ärrbildning och njurfunktion. Nitta et al (2016) behandlade CD-1-möss med streptozotocininducerad typ 1-diabetes och db/db-möss med typ 2-diabetes med oral Ac-SDKP, imidapril (ACE-hämmare) eller båda läkemedlen i kombination. Oral behandling, antingen ensam eller i kombination, reducerade glomerulär skleros och tubulointerstitiell fibros. Cystatin C-nivåerna i plasma, som är förhöjda vid njursjukdom, återgick till normala nivåer. Alla behandlingar återställde undertryckta antifibrotiska mikroRNA (miR-29 och let-7), och den största förbättringen observerades i den grupp som fick kombinationsbehandling. Peptidnivåerna i urinen var högst i gruppen som fick kombinationsbehandling, vilket tyder på en förbättring av den systemiska exponeringen [50]. Vid immunmedierad njursjukdom minskade detta proteinnivåerna i urinen och reducerade inflammation och fibros. Tan et al (2012) administrerade MRL/lpr 1,0 mg/kg/dag i 8 veckor till möss med lupus. Jämfört med obehandlade möss med lupus hade möss som fick peptiden mindre proteinuri och bättre njurfunktion. Njurvävnaden innehöll färre infiltrerande T-celler och makrofager. Mekanistiskt sett minskade aktiveringen av NF-κB och produktionen av TNF-α samt pro-fibrotiska markörer (TGF-β1, α-SMA och fibronektin). Fosforyleringen av Smad2/3 hämmades och Smad7 ökade. Det är viktigt att notera att depositionen av immunkomplex och nivåerna av anti-dsDNA-antikroppar inte förändrades, vilket tyder på att fördelarna berodde på en minskning av inflammation och fibros snarare än på en förändring i antikroppsbildningen [51].
Vid fetma och högt saltintag skyddade den njurarna genom att minska inflammation, fibros och till och med blodtrycket. Maheshwari et al. (2018) studerade Zucker lean (ZL) och Zucker obese (ZO) råttor som matades med normalt salt (0,4%) eller högt salt (4%) i 8 veckor, där ZO-undergruppen fick en
1,6 mg/kg/dag. Hög salthalt förvärrade njurinflammation och fibros i båda grupperna, där överviktiga råttor uppvisade den allvarligaste makrofaginfiltrationen (87,8 ± 10,8 jämfört med 19,14 ± 1,5 celler/mm² hos magra råttor). Behandlingen minskade makrofaginfiltrationen hos överviktiga råttor till 32,18 ± 2,4 celler/mm² (P<0,05) och minskade glomerulär skleros samt interstitiell fibros i både cortex och medulla (P<0,05). Det systoliska blodtrycket hos saltutfodrade överviktiga råttor minskade också från 164 ± 6,9 till 144,05
± 14,1 mmHg (P=0,004). Albuminuri var högre hos överviktiga råttor än hos magra råttor, men förändrades inte signifikant av saltintag eller behandling [52].
Ac-SDKP för hjärn- och nervhälsa (baserat på djurstudier)
Skydd i modeller av Parkinsons sjukdom
Denna peptid bidrar till att skydda dopaminproducerande nervceller och främjar bättre motorik och minne i modeller av Parkinsons sjukdom. Kamarehei och Zahednasab (2025) var först med att i cellulära experiment visa att förbehandling av SH-SY5Y-nervceller med 20 nM av denna peptid skyddade dem från 6-OHDA, ett toxin som ofta används för att efterlikna Parkinsons sjukdom. I studier på råttor bevarade dagliga doser på 800 µg/kg efter hjärnskador orsakade av 6-OHDA fler dopaminneuroner och minskade celldöden genom att minska aktiviteten av caspase-3 och caspase-12. Behandlade råttor uppvisade också bättre motorisk koordination, förbättrat spatialt minne och färre symtom på ångest och depression. Mekanistiskt sett berodde fördelarna på minskad oxidativ stress, lindrad stress i endoplasmatiskt retikulum (ER) och minskade inflammatoriska signaler i hjärnan, vilket främjar neuronal överlevnad och regenerering [53].
Regeneration efter ryggmärgsskada
Det påskyndar också återhämtningen och styr om inflammation mot läkning efter ryggmärgsskada. Hashemizadeh et al (2022) administrerade 0,8 mg/kg subkutant till Wistar-råttor en gång dagligen i sju dagar, med start två till sex timmar efter ryggmärgsskada orsakad av viktnedgång. Jämfört med obehandlade djur återfick de behandlade råttorna bättre gångförmåga, förlorade färre motorneuron och hade lägre nivåer av TNF-α (en proinflammatorisk signal) och caspase-3. Samtidigt ökade mRNA-nivån av CD206, en markör för pro-aging M2-makrofager. Vävnadsundersökningar visade mindre områden med skador. Sammantaget förändrade behandlingen immunförsvaret från en skadlig aktivitet av M1-typ till en skyddande aktivitet av M2-typ, med både funktionella och strukturella fördelar [54].
Skydd efter traumatisk hjärnskada (TBI)
Ac-SDKP bidrar till att skydda hjärnan och främjar hjärnreparation när det administreras strax efter skada. Zhang et al (2017) framkallade kontrollerade kortikala skador hos råttor och administrerade detta medel (0,8 mg/kg/dag) till dem via minipump i tre dagar, med början en timme efter skadan. Från dag 7 till dag 35 förbättrades de sensomotoriska testresultaten, och på dag 33-35 var även den spatiala inlärningen bättre jämfört med kontrollgruppen (p < 0,05). Vid slutet av studien hade mängden kortikala skador och förlust av hippocampusneuroner minskat, medan blodkärlstillväxten, nybildningen av neuroner och dendritiska spikdensiteten var högre. Tidig behandling minskade också fibrinackumuleringen och dämpade aktiveringen av immunceller. Mekanistiska tester visade att blockering av TGF-β1/NF-κB-signalering förklarade en stor del av den antiinflammatoriska effekten [55].
Fördelar med en sjukdom som liknar multipel skleros (MS)
Det minskar också hjärnstress och inflammation i modeller av multipel skleros. Pejman et al (2020) utsatte C57BL/6-möss för experimentell autoimmun encefalomyelit (EAE). Vanligtvis ökar EAE markörer för ER-stress (caspase-12, CHOP, PDI), oxidativ stress och inflöde av immunceller i hippocampus. Med behandling minskade nivåerna av caspase-12 och CHOP i oligodendrocyter, aktiveringen av caspase-3 minskade, ROS-oxidation och lipidperoxidation minskade, antioxidantkapaciteten förbättrades och nivåerna av IL-6/IL-1β minskade. Hjärnskanningar bekräftade mindre skador på hippocampus och mindre infiltration av immunceller, vilket tyder på långsammare sjukdomsprogression [56].
Ac-SDKP för leverhälsa (baserat på djurstudier)
Fördröjning av kemiskt inducerad ärrbildning i levern
Ac-SDKP-peptiden hjälper till att skydda levern från kemiska skador genom att reglera en viktig genkontrollswitch och tillväxtväg. Wei et al. (2022) studerade råttor med koltetraklorid (CCl₄)-inducerad leverskada och fann mindre dödlighet hos stellatceller - de viktigaste ärrbildande cellerna i levern. Även fibrosbildningen minskade. Mekanistiska tester visade att behandlingen minskade nivåerna av WTAP, det enzym som lägger till m⁶A-markörer till RNA. Denna förändring stabiliserade RNA Ptch1 och justerade aktiviteten i Hedgehog-vägen, som är den viktigaste drivkraften bakom ärrbildning. Sammantaget visar resultaten på en anti-fibrotisk effekt genom WTAP/m⁶A/Ptch1-vägen, som reglerar Hedgehog-signalering [59].
Skydd vid fibros orsakad av gallgångarna
Ac-SDKP skyddar också levern när ärrbildning orsakas av gallvägsstopp. Zhang et al (2012) använde BDL-modellen (gallgångsligering) på råttor och behandlade dem kontinuerligt under fjorton dagar. Jämfört med obehandlade djur hade de som fick peptiden hämmad TGF-β1-signalering och lägre nivåer av markörer som associeras med aktiverade stellatceller (α-SMA, FSP-1). Uttrycket av kollagenrelaterade gener (Col I, Col III) och omsättningsenzymer (MMP-2, TIMP-1, TIMP-2) minskade också. Blodmarkörer relaterade till leverfunktionen förbättrades, med ALT, AST, bilirubin och protrombintid som närmade sig det normala. På vävnadspreparat observerades färre mastceller, mindre kollagenackumulering och en övergripande minskning av fibros och inflammation [60].
Upprätthållande av naturliga försvars- och reparationssignaler
Den hjälper levern att bibehålla sin naturliga motståndskraft under långvarig kemisk skada. Chen et al (2010) fann att vid kontinuerlig exponering för CCl₄ minskade de naturliga nivåerna av peptiden med tiden. Genom att ersätta den med infusion (800 µg/kg/dag i åtta veckor) bibehölls baslinjenivåerna och leverskador, inflammation och fibros minskade. Leverenzymnivåerna i blodet minskade och antalet CD45⁺-inflammatoriska celler minskade.
och kollagen- och α-SMA-inlagringar minskade. Pro-fibrotiska signaler, såsom TGF-β1 och fosfo-Smad2/3, minskade, medan reparationsrelaterade signaler, BMP-7 och fosfo-Smad1/5/8, ökade. I cellulära analyser blockerade den direkt aktiveringen av stellatceller, vilket bekräftar en antifibrotisk effekt på cellnivå [61].
Ac-SDKP för hud- och vävnadsreparation (baserat på djurstudier) H3. Hydrogel hudhäftämne för att påskynda läkning och minska ärrbildning
Ett speciellt cellulosabaserat hudlim (Dopa-OCMC-PAA, jämfört med OCMC-PAA) utvecklades för att transportera och frisätta Ac-SDKP. Båda versionerna uppvisade goda svällnings- och nedbrytningsprofiler, hög mekanisk styrka och säkerhet för användning med celler, men Dopa-OCMC-PAA presterade bäst. Hos möss med leverblödning stoppade detta lim blödningen snabbare. I tester på fibroblaster ökade nivåerna av enzymer som ansvarar för vävnadsomvandling (MMP-1 och MMP-3), samtidigt som aktiviteten hos kollagengener minskade. Hos kaniner med förtjockade ärr i öronen minskade Dopa-OCMC-PAA i kombination med en peptid ärrpoängen, minskade cellantalet, förbättrade kollagenstrukturen och visade återigen högre nivåer av MMP-1/MMP-3 med lägre aktivitet i kollagengenerna. Sammanfattningsvis visade dessa resultat på bättre sårläkning och mindre ärrbildning [62].
Topikal applicering förbättrar hudens överlevnad och reparation
Vid operationer med hudflikar på råttor (buk och rygg) ökade injektioner av Ac-SDKP i en dos av 5 µg/kg två gånger dagligen i tre dagar överlevnaden av frisk hud. Arean av den livsdugliga klaffen ökade från 50,9 ± 19,3% till 66,4 ± 7,5% för ventrala klaffar och från 53,4 ± 4,2% till 74,7 ± 6,6% för dorsala klaffar. För UVB-skadad hudvävnad förbättrade topikal applicering överlevnaden. Topikal applicering påskyndade också tillväxten av ny hud, ökade keratin-14-nivåerna (en markör för hudbyggande celler) och ökade fibronektinnivåerna, vilket visar på dess roll i utvecklingen och reparationen av blodkärl [63].
Skyddande blodbildning under kemoterapi
Hos möss som behandlades med cellgiftet doxorubicin minskade administrationen av Ac-SDKP i en dos på 2,4 µg/dag (kontinuerlig eller uppdelad) med början 48 timmar före behandlingen dödligheten och skyddade de stamceller som ansvarar för blodbildningen (LTRC, CFU-S, HPP-CFC och CFU-GM). Tillsats av G-CSF påskyndade ytterligare återhämtningen av CFU-GM. Tidpunkten för administreringen var avgörande - för att skydda mot kortvarig benmärgsskada och långvarig stamcellsförlust var det nödvändigt att påbörja administreringen före kemoterapin [64].
Mer potent anti-fibrotisk aktivitet tack vare förbättrade analoger och kombination av ACE-hämmare
I experiment med lungfibroblaster minskade den ACE-resistenta formen av Ac-SDKP ärrbildningssignaler (TGF-β/Smad3) och kollagenackumulering bättre än den naturliga formen. Det förkortade fragmentet (Ac-DKP) hade endast en svag effekt och bröts långsamt ned av ACE. I kombination med ACE-hämmare hämmade peptiden hydroxiprolin (en markör för kollagen) mer än ensam, vilket visar en starkare effekt och klinisk potential. Vid doser på 10-⁶ till 10-¹⁷ M minskade både tymosin-β4 (Tβ4) och peptiden mastcellstillväxten (bäst vid 10-¹⁴ M) och inducerade ovanliga nukleära förändringar i samband med cellcykelstopp. Vid en koncentration på 10-⁸ M inducerade de också frisättning av kemikalier från mastceller (degranulering), där peptiden visade en starkare effekt (~89%) än Tβ4 (~57%). Andra Tβ4-fragment visade ingen effekt, vilket visar att effekten var specifik för intakt Tβ4 och peptiden [65, 66].
Ac-SDKP-dos
I prekliniska studier administreras Ac-SDKP oftast subkutant via minipump i en dos på cirka 0,8 mg/kg/dag för att minska fibros och inflammation i hjärta/kärl och njurar. I studier på möss efter hjärtinfarkt används ibland en dos på 1,6 mg/kg/dag för att ge ett tidigt skydd. I hjärna/neuroner används vanligen en dos på cirka 0,8 mg/kg/dag i 3-7 dagar i korta cykler med start inom några timmar efter skadan. I cellstudier är det vanligt att förbehandla med en dos på cirka 10 nM. I levern i anti-fibrotiska protokoll ges ofta en dos på cirka 0,8 mg/kg/dag under kronisk skada. I lungan användes i bleomycinmodellen en dos på 0,6 mg/kg intraperitonealt med upprepade doser med början dag 0 eller dag 7. Vid reparation av hud/sår inkluderade topikal dosering 5 µg/kg per injektion två gånger dagligen i tre dagar eller hydrogeler som innehåller peptider för topikal frisättning. Inom hematologi/benmärgsreparation används mycket låga mikrogramdoser, t ex 2,4 µg/dag i möss före kemoterapi och korta behandlingar på µg/kg/dag i tidiga kliniska prövningar.
Ansvarsfriskrivning
Denna artikel har skrivits i utbildningssyfte och är avsedd att öka medvetenheten om det ämne som diskuteras. Det är viktigt att notera att artikeln handlar om ämnet i allmänhet - det är inte en beskrivning av en specifik produkt (kemiskt reagens). Vi föreslår inte att kemiska reagenser ska användas på människor - detta är förbjudet enligt lag, för att en produkt ska kunna användas för behandling måste den vara registrerad som läkemedel. Informationen i texten är baserad på tillgänglig vetenskaplig forskning och är inte avsedd som medicinsk rådgivning eller för att främja självmedicinering. Läsaren bör rådgöra med kvalificerad sjukvårdspersonal för alla beslut som rör hälsa och behandling.
Referenser
- Wang, W., Jia, W. och Zhang, C. (2022). Rollen för Tβ4-POP-Ac-SDKP-axeln i organfibros. Internationell tidskrift för molekylära vetenskaper, 23(21), 13282. https://doi.org/10.3390/ ijms232113282
- Nakagawa, P., Romero, C. A., Jiang, X., D'Ambrosio, M., Bordcoch, G., Peterson, E. L., Harding, P., Yang, X. P. och Carretero, O. A. (2018). Ac-SDKP minskar dödligheten och risken för hjärtruptur efter akut hjärtinfarkt. PLoS One, 13(1), e0190300. https://doi.org/10.1371/ journal.pone.0190300 https://pubmed.ncbi.nlm.nih.gov/29364896/
- Peng, H., Carretero, O. A., Brigstock, D. R., Oja-Tebbe, N. och Rhaleb, N. E. (2003). Ac-SDKP reverserar hjärtfibros hos råttor med renal vaskulär hypertension. Hypertoni, 42(6), 1164–1170. https://doi.org/10.1161/01.HYP.0000100423.24330.96 https://pubmed.ncbi.nlm.nih.gov/14581293/
- Yang, F., Yang, X. P., Liu, Y. H., Xu, J., Cingolani, O., Rhaleb, N. E., & Carretero, O. A. (2004). Ac-SDKP reverserar inflammation och fibros hos råttor med hjärtsvikt efter hjärtinfarkt. Hypertoni, 43(2), 229-236. https://doi.org/10.1161/01.HYP.0000107777.91185.89 https:// pubmed.ncbi.nlm.nih.gov/14691195/
- Rasoul, S., Carretero, O. A., Peng, H., Cavasin, M. A., Zhuo, J., Sanchez-Mendoza, A., Brigstock,
D. R. och Rhaleb, N. E. (2004). Anti-fibrotiska effekter av Ac-SDKP och hämning av angiotensinomvandlande enzym vid högt blodtryck. Tidskrift för hypertoni, 22(3), 593-603. https://doi.org/ 10.1097/00004872-200403000-00023 https://pubmed.ncbi.nlm.nih.gov/15076166/
- Rhaleb, N. E., Peng, H., Harding, P., Tayeh, M., LaPointe, M. C. och Carretero, O. A. (2001). Effekter av N-acetyl-seryl-aspartyl-lysyl-prolin på DNA- och kollagensyntes i hjärtfibroblaster från råttor. Hypertoni, 37 (3), 827-832. https://doi.org/10.1161/01.hyp.37.3.827 https:// pubmed.ncbi.nlm.nih.gov/11244003/
- Liu, Y.-H., D'Ambrosio, M., Liao, T.-D., Peng, H., Rhaleb, N.-E., Sharma, U., André, S., Gabius, H.-J. och Carretero, O. A. (2009). N-acetyl-seryl-aspartyl-lysyl-prolin förhindrar hjärtremodellering och dysfunktion som induceras av galectin-3, ett lektin som reglerar vidhäftning/tillväxt hos däggdjur. American Journal of Physiology-Heart and Circulatory Physiology, 296(2), H404-H412. https://doi.org/ 10.1152/ajpheart.00747.2008 https://pubmed.ncbi.nlm.nih.gov/19098114/
- Rhaleb, N. E., Peng, H., Yang, X. P., Liu, Y. H., Mehta, D., Ezan, E. och Carretero, O. A. (2001). Långtidseffekter av N-acetyl-seryl-aspartyl-lysyl-prolin på kollagenavlagringen i vänster kammare hos råttor med högt blodtryck orsakat av skador på två njurar och avklämning av en av dem. Cirkulation, 103(25), 3136-3141. https://doi.org/ 10.1161/01.cir.103.25.3136 https://pubmed.ncbi.nlm.nih.gov/11425781/
- Cavasin M. A. (2006). Terapeutisk potential för thymosin beta4 och dess N-acetyl-seryl-aspartyl-lysyl-prolin (Ac-SDKP) derivat vid behandling av hjärtat efter hjärtinfarkt. American journal of cardiovascular drugs : läkemedel, utrustning och andra interventioner, 6(5), 305-311. https://doi.org/ 10.2165/00129784-200606050-00003 https://pubmed.ncbi.nlm.nih.gov/17083265/
- Rhaleb, N. E., Pokharel, S., Sharma, U. C., Peng, H., Peterson, E., Harding, P., Yang, X. P. och Carretero, O. A. (2013). N-acetyl-Ser-Asp-Lys-Pro hämmar aktivering av matrixmetalloproteinas genom interleukin-1β i hjärtfibroblaster. Pflügers arkiv - Europeisk tidskrift för
Fysiologi, 465(10), 1487-1495. https://doi.org/10.1007/s00424-013-1262-8 https:// pubmed.ncbi.nlm.nih.gov/23652767/
- Nakagawa, P., Liu, Y., Liao, T. D., Chen, X., González, G. E., Bobbitt, K. R., Smolarek, D., Peterson, E. L., Kedl, R., Yang, X. P., Rhaleb, N. E. och Carretero, O. A. (2012). Behandling med N-acetyl-seryl-aspartyl-lysyl-prolin förhindrar experimentell autoimmun myokardit hos råttor. American Journal of Physiology-Heart and Circulatory Physiology, 303(9), H1114-H1127. https:// doi.org/10.1152/ajpheart.00300.2011 https://pubmed.ncbi.nlm.nih.gov/22923621/
- González, G. E., Rhaleb, N. E., Nakagawa, P., Liao, T. D., Liu, Y., Leung, P., Dai, X., Yang, X. P. och Carretero, O. A. (2014). N-acetyl-seryl-aspartyl-lysyl-prolin minskar tvärbindning av kollagen i hjärtat och inflammation hos angiotensin II-inducerade hypertensiva råttor. Klinisk vetenskap, 126(1), 85-
- Peng, H., Xu, J., Yang, X. P., Kassem, K. M., Rhaleb, I. A., Peterson, E. och Rhaleb, N. E. (2019). Behandling med N-acetyl-seryl-aspartyl-lysyl-prolin skyddar hjärtat från överdriven myokardiell skada och hjärtsvikt hos möss. Canadian Journal of Physiology and Pharmacology, 97(8), 753-765. https://doi.org/10.1139/cjpp-2019-0047 https://pubmed.ncbi.nlm.nih.gov/30998852/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Perego, C., Perego, L., Mancini, M., Leopizzi, M., Corradi, B., Perlini, S., Zerbini, G. och Stella, A. (2009). Förebyggande av myokardiell fibros genom N-acetyl-seryl-aspartyl-lysyl-prolin hos diabetiska råttor. Klinisk vetenskap, 118(3), 211-220. https:// doi.org/10.1042/cs20090234 https://pubmed.ncbi.nlm.nih.gov/20310083/
- Sharma, U. C., Sonkawade, S. D., Baird, A., Chen, M., Xu, S., Sexton, S., Singh, A. K., Groman, A., Turowski, S. G., Spernyak, J. A., Mahajan, S. D. och Pokharel, S. (2018). Effekter av en ny Ac-SDKP-peptid på strålningsinducerad koronar endotelskada och vilande myokardiellt blodflöde. Kardio-Onkologi, 4, 8. https://doi.org/10.1186/s40959-018-0034-1 https:// pubmed.ncbi.nlm.nih.gov/31057947/
- Suhail, H., Peng, H., Matrougui, K. och Rhaleb, N. E. (2024). Ac-SDKP dämpar ER-stressstimulerad kollagenproduktion i hjärtfibroblaster genom CHOP-medierad hämning av NF-κB-uttryck. Frontiers in Pharmacology, 15, 1352222. https://doi.org/10.3389/fphar.2024.1352222 https://pubmed.ncbi.nlm.nih.gov/38495093/
- Zhu, L., Yang, X. P., Janic, B., Rhaleb, N. E., Harding, P., Nakagawa, P., Peterson, E. L. och Carretero, O. A. (2016). Ac-SDKP hämmar TNF-α-inducerat ICAM-1-uttryck i endotelceller genom hämning av IκB-kinas och NF-κB-aktivering. American Journal of Physiology-Heart and Circulatory Physiology, 310(9), H1176-H1183. https://doi.org/10.1152/ajpheart.00252.2015 https://pubmed.ncbi.nlm.nih.gov/26945075/
- Lin, C. X., Rhaleb, N. E., Yang, X. P., Liao, T. D., D'Ambrosio, M. A. och Carretero, O. A. (2008). Förebyggande av aortafibros genom N-acetyl-seryl-aspartyl-lysyl-prolin vid angiotensin II-inducerad hypertoni. American Journal of Physiology-Heart and Circulatory Physiology, 295(3), H1253-H1261. https://doi.org/10.1152/ajpheart.00481.2008 https://pubmed.ncbi.nlm.nih.gov/18641275/
- Sharma, U. C., Sonkawade, S. D., Spernyak, J. A., Sexton, S., Nguyen, J., Dahal, S., Attwood, K. M., Singh, A. K., van Berlo, J. H. och Pokharel, S. (2018). Den lilla peptiden Ac-SDKP hämmar
strålningsinducerad kardiomyopati. Cirkulation: Hjärtsvikt, 11(8), e004867. https://doi.org/ 10.1161/CIRCHEARTFAILURE.117.004867 https://pubmed.ncbi.nlm.nih.gov/30354563/
- Conte, E., Iemmolo, M., Fruciano, M., Fagone, E., Gili, E., Genovese, T., Esposito, E., Cuzzocrea, S. och Vancheri, C. (2015). Effekter av thymosin β4 och dess N-terminala fragment Ac-SDKP på TGF-β-behandlade humana lungfibroblaster och i en musmodell av bleomycininducerad lungfibros. Expertutlåtande om biologisk terapi, 15(Suppl 1), S211-S221. https://doi.org/ 10.1517/14712598.2015.1026804 https://pubmed.ncbi.nlm.nih.gov/26098610/
- Liu, S., Jin, R., Zheng, G., Wang, Y., Li, Q., Jin, F., Li, Y., Li, T., Mao, N., Wei, Z., Li, G., Fan, Y,
Xu, H., Li, S. och Yang, F. (2023). Ac-SDKP främjar KIF3A-medierad β-cateninhämning via en ciliär mekanism för att begränsa kiseldioxidinducerad epitelial-myofibroblastisk omvandling. Biomedicin och farmakoterapi, 166, 115411. https://doi.org/10.1016/j.biopha.2023.115411 https://pubmed.ncbi.nlm.nih.gov/37651800/
- Cai, J., Chen, Q., Mehrabi Nasab, E. och Athari, S. S. (2022). Immunmodulerande effekter av N-acetyl-seryl-aspartyl-prolin och vasoaktiv intestinal peptid på patofysiologin vid kronisk obstruktiv lungsjukdom. Grundläggande och klinisk farmakologi, 36(6), 1005-1010. https:// doi.org/10.1111/fcp.12811 https://pubmed.ncbi.nlm.nih.gov/35763864/
- Wang, J., Qian, Y., Gao, X., Mao, N., Geng, Y., Lin, G., Zhang, G., Li, H., Yang, F. och Xu, H. (2020). Syntes och identifiering av en ny Ac-SDK (biotin) prolinpeptid som kan inducera anti-fibrotiska effekter hos råttor som lider av silikos. Läkemedelsdesign, utveckling och terapi, 14, 4315–4326. https://doi.org/10.2147/DDDT.S262716 https://pubmed.ncbi.nlm.nih.gov/33116418/
- Conte, E., Fagone, E., Gili, E., Fruciano, M., Iemmolo, M., Pistorio, M.P., Impellizzeri, D., Cordaro, M., Cuzzocrea, S., & Vancheri, C. (2016). Förebyggande och terapeutiska effekter av det N-terminala thymosin β4-fragmentet Ac-SDKP i en bleomycininducerad lungfibros-modell. Oncotarget, 7(23), 33841-33854. https://doi.org/10.18632/oncotarget.8409 https:// pubmed.ncbi.nlm.nih.gov/27029074/
- Cao, W., Yao, S. S., Gong, H. B., Zhu, L. Y., Miao, Z. Y. och Deng, H. J. (2022). Reglerande effekt av Ac-SDKP på den fosforylerade vägen för värmechockprotein 27/SNAI1 hos råttor med silikos. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 40(2), 90-96. https://doi.org/10.3760/ cma.j.cn121094-20201218-00702 https://pubmed.ncbi.nlm.nih.gov/35255573/
- Gong, H. B., Zhang, C. M., Tang, X. Y., Gong, R. B., Miao, Z. Y. och Deng, H. J. (2023). Metaanalys av hämning av lungfibros av Ac-SDKP i djurmodeller. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Till Zhi, 41 (4), 262-270. https://doi.org/10.3760/ cma.j.cn121094-20211115-00565 https://pubmed.ncbi.nlm.nih.gov/37248179/
- Li, Q., Yang, F., Zhang, L.-J., Yan, J.-B., Chen, P., Li, D.-D. och Wu, K.-F. (2009). [Anti-fibrotisk effekt av N-acetyl-seryl-aspartyl-lysyl-prolin via reglering av uttrycket av transforming growth factor beta och connective tissue growth factor hos råttor med silikos]. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 27(7), 390-394. PMID: 20039536 https:// pubmed.ncbi.nlm.nih.gov/20039536/
28.Yan, J.-B., Zhang, L.-J. och Li, Q. (2008). [Antifibrotisk effekt av N-acetyl-seryl-aspartyl-lysyl-prolin i lungor hos råttor med silikos]. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 26(7), 401-405. PMID: 19080377 https://pubmed.ncbi.nlm.nih.gov/19080377/
- Jin, F., Geng, F., Xu, D., Li, Y., Li, T., Yang, X., Liu, S., Zhang, H., Wei, Z., Li, S., Gao, X., Cai, W,
Mao, N., Yi, X., Liu, H., Sun, Y., Yang, F. och Xu, H. (2021). Ac-SDKP dämpar aktiveringen av lungmakrofager och benosteoklaster hos silikaexponerade råttor genom att hämma TLR4- och RANKL-signalvägarna. Journal of Inflammation Research, 14, 1647-1660. https://doi.org/10.2147/ JIR.S306883 https://pubmed.ncbi.nlm.nih.gov/33948088/
- Xu, H., Yang, F., Sun, Y., Yuan, Y., Cheng, H., Wei, Z., Li, S., Cheng, T., Brann, D. och Wang, R. (2012). Ett nytt anti-fibrotiskt mål för Ac-SDKP: hämning av myofibroblastdifferentiering i lungor från råttor med silikos. PLoS En, 7(7), e40301. https://doi.org/10.1371/journal.pone.0040301 https:// pubmed.ncbi.nlm.nih.gov/22802960/
- Wang, X., Liu, Y., Xu, H., Zhang, X., Li, S., Xu, D., Gao, X., Zhang, L., Zhang, B., Wei, Z., Wang, R., Brann, D. och Yang, F. (2016). Acetylerat α-tubulin som regleras av N-acetyl-seryl-aspartyl-lysyl-prolin (Ac-SDKP) utövar antifibrotiska effekter vid kiseldioxidinducerad lungfibros hos råtta. Vetenskapliga rapporter, 6, 32257. https://doi.org/10.1038/srep32257 https://pubmed.ncbi.nlm.nih.gov/27577858/
- Deng, H., Xu, H., Zhang, X., Sun, Y., Wang, R., Brann, D. och Yang, F. (2016). Skyddande effekter av Ac-SDKP på follikulära epitelceller via TGF-β1/ROCK1-vägmedierad EMT-hämning vid silikos hos råttor. Toxikologi och tillämpad farmakologi, 294, 1-10. https://doi.org/10.1016/ j.taap.2016.01.010 https://pubmed.ncbi.nlm.nih.gov/26785300/
- Zhang, L., Xu, D., Li, Q., Yang, Y., Xu, H., Wei, Z., Wang, R., Zhang, W., Liu, Y., Geng, Y., Li, S., Gao, X. och Yang, F. (2018). N-acetyl-seryl-aspartyl-lysyl-prolin (Ac-SDKP) lindrar silikotisk fibros genom att hämma apoptos i typ II-alveolära epitelceller via förmedling av endoplasmatisk retikulumstress. Toxikologi och tillämpad farmakologi, 350, 1-10. https://doi.org/10.1016/ j.taap.2018.04.025 https://pubmed.ncbi.nlm.nih.gov/29684394/
- Nakagawa, P., Masjoan-Juncos, J. X., Basha, H., Janic, B., Worou, M. E., Liao, T. D., Romero, C. A., Peterson, E. L. och Carretero, O. A. (2017). Effekter av N-acetyl-seryl-aspartyl-lysyl-prolin på blodtryck, njurskada och dödlighet vid systemisk lupus erythematosus. Fysiologiska rapporter, 5(2), e13084. https://doi.org/10.14814/phy2.13084 https://pubmed.ncbi.nlm.nih.gov/ 28126732/
- Worou, M. E., Liao, T. D., D'Ambrosio, M., Nakagawa, P., Janic, B., Peterson, E. L., Rhaleb, N. E. och Carretero, O. A. (2015). Skyddande effekter av N-acetyl-seryl-aspartyl-lysyl-prolin på njuren hos Dahl saltkänsliga råttor. Hypertoni, 66(4), 816-822. https://doi.org/10.1161/ HYPERTENSIONAHA.115.05970 https://pubmed.ncbi.nlm.nih.gov/26324505/
- Liao, T. D., Nakagawa, P., Janic, B., D'Ambrosio, M., Worou, M. E., Peterson, E. L., Rhaleb, N. E., Yang, X. P. och Carretero, O. A. (2015). N-Acetyl-Seryl-Aspartyl-Lysyl-Proline: mekanismer för njurskydd i en musmodell av systemisk lupus erythematosus. Amerikansk tidskrift för Fysiologi-Renal fysiologi, 308 (10), F1146-F1154. https://doi.org/10.1152/ajprenal.00039.2015 https://pubmed.ncbi.nlm.nih.gov/25740596/
37. Rhaleb, N. E., Pokharel, S., Sharma, U. och Carretero, O. A. (2011). Njurskyddande effekter av N-acetyl-Ser-Asp-Lys-Pro i deoxykortikosteronacetat-saltinducerade hypertensiva möss. Tidskrift för hypertoni, 29(2), 330-338. https://doi.org/10.1097/HJH.0b013e32834103ee https:// pubmed.ncbi.nlm.nih.gov/21052020/
- Shibuya, K., Kanasaki, K., Isono, M., Sato, H., Omata, M., Sugimoto, T., Araki, S., Isshiki, K., Kashiwagi, A., Haneda, M. och Koya, D. (2005). N-acetyl-seryl-aspartyl-lysyl-prolin förhindrar njursvikt och proliferation av mesangial matris hos db/db-möss med diabetes. Diabetes, 54(3), 838-845. https://doi.org/10.2337/diabetes.54.3.838 https://pubmed.ncbi.nlm.nih.gov/15734863/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Preziuso, C., Leopizzi, M., Maestroni, S., Corradi, B., Zerbini, G. och Stella, A. (2013). Anti-fibrotiska effekter av N-acetyl-seryl-aspartyl-lysyl-prolin på njurar hos diabetiska råttor. American Journal of Nephrology, 37(1), 65-73. https://doi.org/10.1159/000346116 https://pubmed.ncbi.nlm.nih.gov/23327833/
- Zhang, R., Hu, Z., Wang, Y., Qiu, R., Wang, G., Wang, L. och Hu, B. (2022). Biomimetisk hydrogel med dubbla nät lindrar njurfibros och främjar njurregenerering. Tidskrift för Materialkemi B, 10 (45), 9424-9437. https://doi.org/10.1039/d2tb01939f https:// pubmed.ncbi.nlm.nih.gov/36378134/
- Zuo, Y., Chun, B., Potthoff, S. A., Kazi, N., Brolin, T. J., Orhan, D., Yang, H.-C., Ma, L.-J., Kon, V., Myöhänen, T., Rhaleb, N.-E., Carretero, O. A. och Fogo, A. B. (2013). Thymosin β4 och dess nedbrytningsprodukt, Ac-SDKP, är nya reparationsmedel vid njurfibros. Kidney International, 84(6), 1166-1175. https://doi.org/10.1038/ki.2013.209 https://pubmed.ncbi.nlm.nih.gov/23739235/
- Wang, M., Liu, R., Jia, X., Mu, S. och Xie, R. (2010). N-acetyl-seryl-aspartyl-lysyl-prolin dämpar njurinflammation och tubulointerstitiell fibros hos råttor. Internationell tidskrift för molekylär Medicin, 26 (6), 795-801. https://doi.org/10.3892/ijmm_00000527 https:// pubmed.ncbi.nlm.nih.gov/21042772/
- Liao, T.-D., Yang, X.-P., D'Ambrosio, M., Zhang, Y., Rhaleb, N.-E. och Carretero, O. A. (2010). N-acetyl-seryl-aspartyl-lysyl-prolin dämpar njurskador och dysfunktion hos hypertensiva råttor med minskad njurmassa: Hypertension Research Council. Hypertoni, 55(2), 459-467. https://doi.org/10.1161/HYPERTENSIONAHA.109.144568 https://pubmed.ncbi.nlm.nih.gov/ 20026760/
- Peng, H., Carretero, O. A., Raij, L., Yang, F., Kapke, A. och Rhaleb, N. E. (2001). Antifibrotiska effekter av N-acetyl-seryl-aspartyl-lysyl-prolin på hjärta och njure hos aldosteron-salt-inducerade hypertensiva råttor. Hypertoni, 37(2 Pt 2), 794-800. https://doi.org/10.1161/01.hyp.37.2.794 https:// pubmed.ncbi.nlm.nih.gov/11230375/
- Omata, M., Taniguchi, H., Koya, D., Kanasaki, K., Sho, R., Kato, Y., Kojima, R., Haneda, M. och Inomata, N. (2006). N-acetyl-seryl-aspartyl-lysyl-prolin dämpar utvecklingen av renal dysfunktion och fibros hos WKY-råttor med etablerad glomerulonefrit. Journal of the American Society of Nephrology, 17(3), 674-685. https://doi.org/10.1681/ ASN.2005040385 https://pubmed.ncbi.nlm.nih.gov/16452498/
- Nagai, T., Kanasaki, M., Srivastava, S. P., Nakamura, Y., Ishigaki, Y., Kitada, M., Shi, S., Kanasaki, K. och Koya, D. (2014). N-acetyl-seryl-aspartyl-lysyl-prolin hämmar diabetesrelaterade
diabetesrelaterad njurfibros och endotelial-mesenkymal transition. BioMed Research International, 2014, 696475. https://doi.org/10.1155/2014/696475 https://pubmed.ncbi.nlm.nih.gov/24783220/
- Srivastava, S. P., Goodwin, J. E., Kanasaki, K. och Koya, D. (2020). Metabolisk omprogrammering med N-acetyl-seryl-aspartyl-lysyl-prolin skyddar mot diabetisk njursjukdom. Brittisk tidskrift av farmakologi, 177 (16), 3691-3711. https://doi.org/10.1111/bph.15087 https:// pubmed.ncbi.nlm.nih.gov/32352559/
- Carde, P., Chastang, C., Goncalves, E., Mathieu-Tubiana, N., Vuillemin, E., Delwail, V., Corbion, O., Vekhoff, A., Isnard, F., Ferrero, J. M., et al (1992). [Seraspenid (acetylSDKP): En klinisk fas I-II-prövning av en hematopoetisk hämmare som skyddar mot toxiciteten hos monokemoterapi med aracyklin och ifosfamid]. Klinisk studie C R Acad Sci III, 315(13), 545-550. PMID: 1300237 https:// pubmed.ncbi.nlm.nih.gov/1300237/
- Cappelaere, P., Hecquet, B., Rolland, F., Meeus, L., Domenge, C., Krakowski, I., De Gislain, C., Chauvergne, J., Dufour-Esquerré, F., Carde, P. (1995). [Randomiserad placebostudie av benmärgsskydd med goralatid hos patienter med skivepitelcancer i övre luftvägarna och mag-tarmkanalen eller matstrupen som behandlas med en kombination av karboplatin och fluorouracil]. Bull Cancer, 82(9), 732-737. PMID: 8535033 https://pubmed.ncbi.nlm.nih.gov/8535033/
- Nitta, K., Shi, S., Nagai, T., Kanasaki, M., Kitada, M., Srivastava, S. P., Haneda, M., Kanasaki, K. och Koya, D. (2016). Oral administrering av N-acetyl-seryl-aspartyl-lysyl-prolin förbättrar njursjukdomen hos möss med typ 1- och typ 2-diabetes genom en terapeutisk regim. BioMed forskning Internationell, 2016 , 9172157 . https://doi.org/10.1155/2016/9172157 https:// pubmed.ncbi.nlm.nih.gov/27088094/
- Tan, H., Zhao, J., Wang, S., Zhang, L., Wang, H., Huang, B., Liang, Y., Yu, X. och Yang, N. (2012). Ac-SDKP dämpar utvecklingen av lupusnefrit hos MRL/lpr-möss. Internationell immunofarmakologi, 14(4), 401–409. https://doi.org/10.1016/j.intimp.2012.07.023https:// pubmed.ncbi.nlm.nih.gov/22922317/
- Maheshwari, M., Romero, C. A., Monu, S. R., Kumar, N., Liao, T. D., Peterson, E. L. och Carretero,
O. A. (2018). Njurskyddande effekter av N-acetyl-seryl-aspartyl-lysyl-prolin (Ac-SDKP) hos överviktiga råttor på en diet med hög salthalt. American Journal of Hypertension, 31(8), 902-909. https://doi.org/ 10.1093/ajh/hpy052 https://pubmed.ncbi.nlm.nih.gov/29722788/
- Kamarehei, M., & Zahednasab, H. (2025). Neuroprotektiva effekter av Ac-SDKP-peptid i SH-SY5Y-celler och en råttmodell av Parkinsons sjukdom mot 6-OHDA-inducerad oxidativ stress och ER-stress. Neuropeptider, 112, 102534. https://doi.org/10.1016/j.npep.2025.102534 https:// pubmed.ncbi.nlm.nih.gov/40544680/
- Hashemizadeh, S., Pourkhodadad, S., Hosseindoost, S., Pejman, S., Kamarehei, M., Badripour, A., Omidi, A., Pestehei, S. K., Seifalian, A. M. och Hadjighassem, M. (2022). Ac-SDKP-peptiden förbättrar den funktionella återhämtningen efter ryggmärgsskada i en preklinisk modell. Neuropeptider, 92, 102228. https://doi.org/10.1016/j.npep.2022.102228 https://pubmed.ncbi.nlm.nih.gov/ 35101843/
- Zhang, Y., Zhang, Z. G., Chopp, M., Meng, Y., Zhang, L., Mahmood, A. och Xiong, Y. (2017). Behandling av traumatisk hjärnskada hos råttor med N-acetyl-seryl-aspartyl-lysyl-prolin. Tidskrift för
Neurokirurgi, 126(3), 782-795. https://doi.org/10.3171/2016.3.JNS152699 http:// pubmed.ncbi.nlm.nih.gov/28245754/
- Pejman, S., Kamarehei, M., Riazi, G., Pooyan, S. och Balalaie, S. (2020). Ac-SDKP dämpar utvecklingen av experimentell autoimmun encefalomyelit genom att hämma ER och oxidativ stress i hippocampus hos C57BL/6-möss. Brain Research Bulletin, 154, 21–31. https://doi.org/10.1016/j.brainresbull.2019.09.014 https://pubmed.ncbi.nlm.nih.gov/31589901/
- Zhang, L., Chopp, M., Teng, H., Ding, G., Jiang, Q., Yang, X. P., Rhaleb, N. E. och Zhang, Z. G. (2014). Kombinationsbehandling av N-acetyl-seryl-aspartyl-lysylprolin och vävnadsplasminogenaktivator ger potent nervskydd hos råttor efter stroke. Stroke, 45(4), 1108-1114. https:// doi.org/10.1161/STROKEAHA.113.004399 https://pubmed.ncbi.nlm.nih.gov/24549864/
- Kim, D. H., Moon, E.-Y., Yi, J. H., Lee, H. E., Park, S. J., Ryu, Y.-K., Kim, H.-C., Lee, S. och Ryu, J.
H. (2015). Thymosin β4 peptidfragment förstärker neurogenesen i hippocampus och underlättar spatialt minne. Neurovetenskap, 310, 51-62. https://doi.org/10.1016/j.neuroscience.2015.09.017 https://pubmed.ncbi.nlm.nih.gov/26363149/
- Wei, A., Zhao, F., Hao, A., Liu, B. och Liu, Z. (2022). N-acetyl-seryl-aspartyl-lysyl-prolin (AcSDKP) dämpar leverfibros via WTAP/m6A/Ptch1-axeln via Hedgehog-vägen. Gene, 813, 146125. https://doi.org/10.1016/j.gene.2021.146125 https://pubmed.ncbi.nlm.nih.gov/34921949/
- Zhang, L., Xu, L. M., Chen, Y. W., Ni, Q. W., Zhou, M., Qu, C. Y. och Zhang, Y. (2012). Antifibrotisk effekt av N-acetyl-seryl-aspartyl-lysyl-prolin på leverfibros inducerad av gallligering hos råttor. World Journal of Gastroenterology, 18(37), 5283-5288. https://doi.org/10.3748/wjg.v18.i37.5283 https://pubmed.ncbi.nlm.nih.gov/23066324/
- Chen, Y. W., Liu, B. W., Zhang, Y. J., Chen, Y. W., Dong, G. F., Ding, X. D., Xu, L. M., Pat, B.,
Fan, J. G. och Li, D. G. (2010). Bevarande av basala nivåer av AcSDKP dämpar koltetrakloridinducerad leverfibros hos råttor. Journal of Hepatology, 53(3), 528-536. https://doi.org/10.1016/ j.jhep.2010.03.027 https://pubmed.ncbi.nlm.nih.gov/20646773/
- Ameri, Z., Shahabi, A., Farsinejad, A., Sattarzadeh Bardsiri, M., Javedani, H., Bagher, Z., Saraee, A. och Brouki Milan, P. (2025). Cellulosabaserad självhäftande hydrogel innehållande N-acetyl-seryl-aspartyl-lysyl-prolinpeptid för att påskynda sårläkning och förhindra ärrbildning i en in vivo-modell för ärr i kaninörat. International Journal of Biological Macromolecules, 322(Pt 1), 144981. https:// doi.org/10.1016/j.ijbiomac.2025.144981 https://pubmed.ncbi.nlm.nih.gov/40480579/
- Fromes, Y., Liu, J. M., Kovacevic, M., Bignon, J. och Wdzieczak-Bakala, J. (2006). Acetyl-serin-asparaginyl-lysin-prolin tetrapeptid förbättrar överlevnaden av hudflikar och påskyndar sårläkning. Sårläkning och Regenerering, 14 (3), 306-312. https://doi.org/10.1111/ j.1743-6109.2006.00125.x https://pubmed.ncbi.nlm.nih.gov/16808809/
- Massé, A., Ramirez, L. H., Bindoula, G., Grillon, C., Wdzieczak-Bakala, J., Raddassi, K., Deschamps de Paillette, E., Mencia-Huerta, J. M., Koscielny, S., Potier, P., Sainteny, F. och Carde,
P. (1998). Acetyl-N-Ser-Asp-Lys-Pro tetrapeptid (Goralatide) skyddar mot doxorubicin-inducerad toxicitet: förbättrad musöverlevnad och skydd av benmärgsstam- och progenitorceller. Blod, 91(2), 441-449. PMID: 9427696 https://pubmed.ncbi.nlm.nih.gov/9427696/
65. Ramasamy, V., Ntsekhe, M. och Sturrock, E. (2021). Undersökning av den anti-fibrotiska potentialen hos peptider med en N-acetyl-seryl-aspartyl-lysyl-prolinsekvens. Klinisk och experimentell farmakologi och fysiologi, 48(11), 1558-1565. https://doi.org/10.1111/1440-1681.13565 https:// pubmed.ncbi.nlm.nih.gov/34347311/
- Leeanansaksiri, W., DeSimone, S. K., Huff, T., Hannappel, E. och Huff, T. F. (2004). Thymosin beta
4 och dess N-terminala tetrapeptid, AcSDKP, hämmar proliferation och inducerar dysplastiska, icke-apoptotiska kärnor och mastcellsdegranulering. Kemi & biologisk mångfald, 1(7), 1091–1100. https://doi.org/10.1002/cbdv.200490081 https://pubmed.ncbi.nlm.nih.gov/17191900/