


Descrição dos efeitos potenciais do fragmento 4 (1-4) da timosina beta (Ac-SDKP) com base na literatura. (Não se trata de uma descrição do produto, declaração de exoneração de responsabilidade no final da página)
A Ac-SDKP (N-acetil-seril-aspartil-lisil-prolina) é um fragmento proteico muito pequeno derivado de outra proteína natural chamada timosina β4. No organismo, enzimas especiais cortam a timosina β4 em pedaços mais pequenos, e um dos resultados deste processo é a Ac-SDKP [1]. Esta pequena molécula é importante porque ajuda a proteger os órgãos da formação de cicatrizes (fibrose), que ocorre quando demasiado tecido rígido se acumula após uma lesão ou doença. O problema é que a Ac-SDKP não dura muito tempo no corpo
- é rapidamente degradado por uma enzima chamada ECA (enzima de conversão da angiotensina). Curiosamente, os medicamentos bloqueadores da ECA (como alguns medicamentos para a hipertensão) podem aumentar os níveis de Ac-SDKP até cinco vezes, reforçando o seu efeito protetor [1].
Inicialmente, os cientistas pensavam que o principal papel da Ac-SDKP era impedir que as células estaminais do sangue crescessem demasiado depressa. No entanto, estudos mais recentes mostram que o seu papel mais importante é na cicatrização e proteção dos tecidos. Ajuda a impedir a proliferação excessiva de tecido cicatricial em órgãos como o coração, os pulmões, o fígado e os rins. Por exemplo, reduz a atividade de certos sinais que levam as células a produzir demasiado colagénio (a principal proteína das cicatrizes) e impede que as células reparadoras (fibroblastos) se transformem em células formadoras de cicatrizes. No caso das doenças renais, o Ac-SDKP é realmente prometedor. Não só ajuda os rins a funcionar melhor, como também reduz as cicatrizes, bloqueando o acesso de demasiadas células imunitárias e atenuando os processos nocivos que normalmente agravam as lesões. Em suma, o Ac-
A SDKP actua como uma molécula natural "anti-cicatrização" e "protetora dos tecidos" no organismo. Promove a cicatrização, reduz a inflamação e pode ser útil no tratamento de doenças em que a cicatrização e os danos nos tecidos desempenham um papel importante.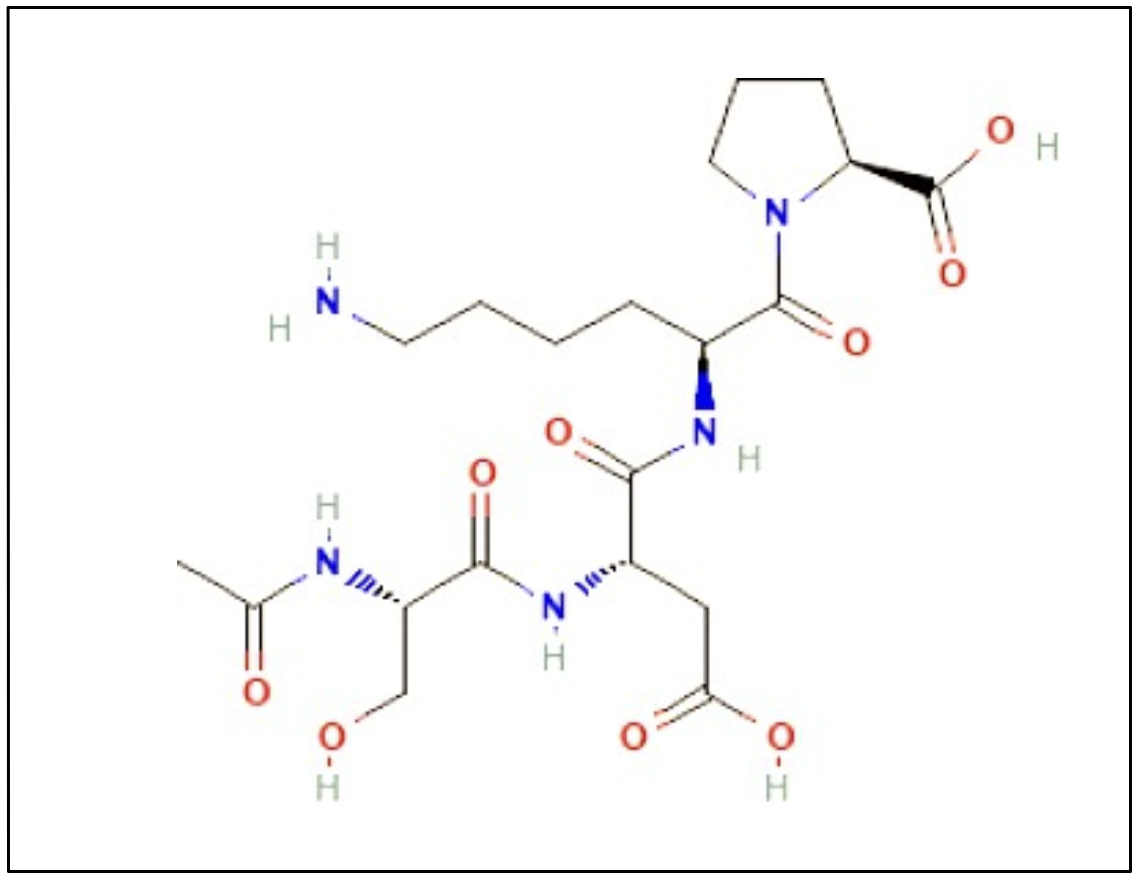
O Ac-SDKP protege o coração (com base em estudos em animais)
Vários estudos científicos descreveram o potencial do Ac-SDKP para a saúde do coração, tanto em situações de emergência como a longo prazo. Num modelo de ratinho de enfarte do miocárdio, Nakagawa et al. administraram Ac-SDKP numa dose de 1,6 mg/kg/dia através de uma pequena bomba subcutânea e encontraram benefícios claros: as rupturas da parede cardíaca (rupturas do coração) diminuíram de 51,0% para 27,3% e a mortalidade diminuiu de 56,9% para 31,8%. O péptido parecia atuar acalmando as células imunitárias "de primeira ajuda" que podem agravar os danos (macrófagos M1), sem alterar os macrófagos reparadores úteis (M2) ou os neutrófilos. Diminuiu igualmente a ação de uma enzima (MMP-9) que decompõe o tecido cardíaco após o enfarte, enquanto um outro marcador (MPO) se manteve inalterado, o que sugere uma ação orientada e intencional [2]. No caso de cicatrizes cardíacas causadas por pressão arterial elevada prolongada, Peng et al. mostraram que o Ac-SDKP podia reduzir o tecido cicatricial existente, e não apenas evitá-lo. Em ratos com um modelo bem estabelecido de hipertensão, a administração diária de Ac-SDKP numa dose de 400-800 µg/kg (por via subcutânea) durante 8 semanas reduziu a quantidade de colagénio no coração - o principal sinal de cicatrização - de forma dependente da dose (a dose mais elevada foi mais eficaz). A pressão arterial per se não baixou e as respostas normais à angiotensina I e à bradicinina não foram afectadas, pelo que o benefício não se deveu apenas a uma redução da pressão arterial. Os níveis sanguíneos de Ac-SDKP aumentaram 2-5 vezes e os principais sinais indutores de cicatriz no coração (TGF-β e CTGF) foram reduzidos, confirmando um efeito anti-cicatricial direto [3].
Após o enfarte do miocárdio, a persistência do inchaço e das cicatrizes pode levar à insuficiência cardíaca. Yang et al. testaram o Ac-SDKP precocemente (para prevenir danos) e mais tarde (para reverter danos). Em ambos os casos, o conteúdo total de colagénio cardíaco diminuiu (por exemplo, de ~24 para ~15 µg/mg no grupo de prevenção e de ~23 para
~14 µg/mg no grupo de reversão). A acumulação nociva de células imunitárias também foi reduzida: os macrófagos diminuíram em cerca de um terço em cada grupo e as células positivas para TGF-β diminuíram em paralelo. Estes benefícios foram alcançados sem diminuir a pressão arterial ou reduzir o tamanho do coração, e a potência de bombeamento não foi marcadamente melhorada no grupo de profilaxia. No entanto, a diminuição constante da cicatrização e da inflamação indica uma melhoria da estrutura cardíaca ao longo do tempo [4].
O Ac-SDKP pode também explicar alguns dos benefícios tecidulares "adicionais" observados com os medicamentos inibidores da ECA. Rasoul et al. compararam um modelo de hipertensão induzida pela angiotensina II com grupos que receberam captopril ou Ac-SDKP (400-800 µg/kg/dia). Este último aumentou os níveis sanguíneos várias vezes e reproduziu muitas das propriedades protectoras semelhantes às dos inibidores da ECA: menos hipertrofia celular no coração, menos macrófagos e mastócitos, níveis mais baixos de TGF-β e CTGF e menos acumulação de colagénio. É importante notar que estes benefícios ocorreram sem baixar a pressão arterial ou reduzir o espessamento cardíaco, o que indica uma
efeito protetor direto no tecido cardíaco [5]. A Ac-SDKP retarda a formação de cicatrizes no coração a nível celular. Em culturas laboratoriais de células de suporte cardíaco de ratos (fibroblastos), Rhaleb et al. testaram doses muito baixas de Ac-SDKP (0,05-100 nmol/l) e descobriram dois efeitos principais: uma redução do crescimento celular (cópia de ADN) para o normal a cerca de 1 nmol/l e uma redução do colagénio (a principal proteína "cicatricial") produzido em resposta à endotelina-1, um potente sinal de cicatrização. As doses mais baixas são mais eficazes para o colagénio; as doses muito elevadas são menos eficazes. O péptido parecia silenciar um interrutor de sinal celular comum (p44/42 MAPK/ERK), e um bloqueador de MAPK conhecido proporcionou o mesmo benefício. Em termos simples, o Ac-SDKP comanda os fibroblastos para abrandar a proliferação e a formação excessiva de cicatrizes, presumivelmente reduzindo a atividade de uma via de crescimento chave [6].
Num estudo realizado em ratos adultos, Liu et al. administraram galectina-3 (uma proteína que induz inflamação e cicatrizes) durante quatro semanas e observaram mais células inflamatórias, paredes cardíacas mais espessas, cicatrizes mais graves à volta dos vasos e entre as células, níveis mais elevados de sinalização TGF-β/Smad3 (uma via que promove a formação de cicatrizes) e um bombeamento mais fraco na ecocardiografia. A adição de Ac-SDKP (800 µg/kg/dia) preveniu a maioria destas alterações: as células inflamatórias, as cicatrizes e o espessamento da parede cardíaca diminuíram e a função cardíaca melhorou. Os dados sugerem que protege o coração, desligando o "interrutor de cicatrização" TGF-β/Smad3 e atenuando a inflamação [7]. Além disso, reduz a formação de cicatrizes cardíacas na hipertensão a longo prazo sem alterar a própria pressão arterial. Utilizando um modelo vascular clássico (2 rins, 1 pinça) em ratos, Rhaleb et al. administraram Ac-SDKP (400 µg/kg/dia, por via subcutânea). Embora a pressão sanguínea e a hipertrofia cardíaca permanecessem elevadas, o tratamento com o péptido reduziu significativamente as células inflamatórias e as células em proliferação no miocárdio. É importante notar que normalizou a fração de colagénio intersticial, reduzindo-a de cerca de 10,1% nos ratos hipertensos para cerca de 5,4%, um nível quase idêntico ao dos animais de controlo (≈5,3%). Em suma, reduziu as lesões tecidulares deletérias mesmo quando a carga de pressão permaneceu inalterada, sugerindo um papel direto na cicatrização dos tecidos [8]. Adicionalmente, em combinação com a timosina-β4, a Ac-SDKP promove a reparação tecidular após enfarte do miocárdio. Numa revisão narrativa, Cavasin et al. descobriram que a timosina-β4 promove tanto a migração como a sobrevivência das células. O seu derivado, Ac-SDKP, proporciona benefícios adicionais, actuando como um agente anti-fibrótico na hipertensão. Em modelos de enfarte do miocárdio, o Ac-SDKP demonstrou reverter a formação de cicatrizes e reduzir a inflamação. Também promoveu a angiogénese, como demonstrado em estudos in vivo e ex vivo. Além disso, a Ac-SDKP reduziu o risco de rutura da parede cardíaca em ratinhos, realçando o seu potencial terapêutico na reparação cardiovascular. Existe uma grande sobreposição de benefícios, sugerindo que a Ac-SDKP transporta parte do efeito terapêutico da timosina β4. No entanto, o investigador mencionou que ainda são necessários estudos em humanos para confirmar estes resultados laboratoriais e estudos em animais [9].
Além disso, o Ac-SDKP reduz a atividade das enzimas de degradação dos tecidos desencadeadas pela IL-1β. Em fibroblastos cardíacos de ratos adultos, Rhaleb et al. mostraram que a interleucina-1β (IL-1β), uma citocina pró-inflamatória,
aumentou significativamente a expressão das metaloproteinases da matriz (MMP-2, MMP-9 e MMP-13). Estas enzimas degradam os componentes da matriz extracelular e contribuem para a remodelação adversa. O Ac-SDKP não alterou a expressão basal das MMPs. No entanto, inibiu fortemente o aumento dos níveis destas enzimas induzido pela IL-1β. Ao mesmo tempo, o Ac-SDKP aumentou a expressão dos inibidores tecidulares das metaloproteinases (TIMP-1 e TIMP-2), inibidores naturais da atividade das MMP. Este facto ajudou a reequilibrar a renovação da matriz. O Ac-SDKP também reduziu a ativação de duas vias de sinalização principais que impulsionam a inflamação e a proliferação: NF-κB e ERK/MAPK. Curiosamente, a estimulação com IL-1β não aumentou a produção de colagénio neste modelo. O Ac-SDKP também não teve qualquer efeito na síntese de colagénio. Isto sugere que o seu papel protetor se deve ao reequilíbrio seletivo da remodelação dos tecidos, em vez de uma alteração geral na produção de colagénio. Em conjunto, estes resultados indicam que a Ac-SDKP pode proteger o miocárdio da remodelação patológica através do reequilíbrio da regulação da matriz [10].
A Ac-SDKP protege contra lesões cardíacas auto-imunes em ratos. Num modelo de miocardite induzida por células T, Nakagawa et al. trataram ratos Lewis imunizados com Ac-SDKP e observaram a preservação da função cardíaca, tanto sistólica como diastólica. O tratamento também reduziu o alargamento cardíaco, reduziu a formação de cicatrizes e preservou uma estrutura miocárdica mais saudável. A análise histológica revelou um menor número de células imunitárias infiltrantes, incluindo macrófagos, células dendríticas e linfócitos T. Paralelamente, os níveis dos principais mediadores inflamatórios, incluindo citocinas (IL-1α, TNF-α, IL-2, IL-17), quimiocinas (CINC-1, IP-10), moléculas de adesão (ICAM-1, L-selectina) e metaloproteinases da matriz, foram significativamente reduzidos. Curiosamente, o Ac-SDKP não alterou os níveis de auto-anticorpos específicos da miosina ou as respostas das células T específicas do antigénio. Isto indica que o seu efeito cardioprotector é principalmente devido a uma redução no recrutamento de células imunitárias e inibição de mediadores inflamatórios, em vez de uma alteração na produção de auto-anticorpos ou ativação de células T [11].
O Ac-SDKP reduz a inflamação e a formação de ligações cruzadas de colagénio na hipertensão induzida pela angiotensina II. González et al. administraram angiotensina II a ratos durante três semanas, e um grupo separado foi tratado com Ac-SDKP. A pressão arterial e a hipertrofia cardíaca permaneceram elevadas em ambos os grupos, mas a Ac-SDKP impediu o aumento do colagénio total e do colagénio reticulado. Este efeito protetor deveu-se à inibição do mRNA da lisil oxidase (LOX) e da proteína LOXL1, enzimas responsáveis pela ligação cruzada do colagénio e pelo endurecimento da cicatriz. Além disso, o Ac-SDKP reduziu a expressão de TGF-β, inibiu a ativação do NF-κB e reduziu a infiltração de linfócitos T CD4 ⁺ e CD8 ⁺ e macrófagos CD68 ⁺ no tecido cardíaco. É importante ressaltar que o influxo de células T CD4⁺ se correlacionou com a expressão de LOXL1, sugerindo uma ligação mecanicista entre a atividade das células imunes e a fibrose. Esses achados destacam que o Ac-SDKP exerce potentes efeitos anti-fibróticos e anti-inflamatórios, independentemente de seus efeitos sobre a pressão arterial [12].
Além disso, protege o coração após enfarte do miocárdio em ratos nas fases inicial e final. Peng et al. administraram Ac-SDKP (1,6 mg/kg/dia) a ratinhos C57BL/6J após enfarte do miocárdio. Na primeira semana, o tratamento reduziu o número de rupturas letais da parede, diminuiu os níveis de ICAM-1, reduziu o afluxo de macrófagos e a atividade de digestão da gelatina, inibiu a p53 e reduziu a morte de células do miocárdio; ao mesmo tempo, o número de pequenos vasos sanguíneos no limite da lesão aumentou, sugerindo um melhor crescimento de novos vasos. Na quinta semana, os corações apresentavam menos colagénio intersticial, estrutura preservada, níveis mais baixos de stress do retículo endoplasmático (CHOP) e manutenção do SERCA2 (crucial para o metabolismo do cálcio), bem como uma função globalmente melhor. Em suma, reduz os danos precoces e promove uma remodelação mais saudável a longo prazo [13].
Noutro estudo, o Ac-SDKP reduz as cicatrizes cardíacas e melhora a função diastólica na cardiomiopatia diabética. Castoldi et al. induziram diabetes em ratos e, dois meses depois, iniciaram o Ac-SDKP (1 mg/kg/dia com minibombas) durante oito semanas. Os ratos com diabetes desenvolveram níveis elevados de açúcar, fibrose intersticial e perivascular marcada e níveis mais elevados de TGF-β1 e fosfo-Smad2/3 no coração. A Ac-SDKP reduziu ambos os tipos de fibrose e reduziu a sinalização TGF-β/Smad, também em animais que receberam o inibidor da ECA ramipril. A ecografia cardíaca mostrou que a diabetes prejudicava a sístole e a diástole; a insulina e o ramipril restauraram ambas as funções, enquanto o Ac-SDKP melhorou parcialmente a diástole (função diastólica). Estes dados evidenciam o benefício antifibrótico com um aumento moderado da função neste modelo [14]. Além disso, protege os vasos coronários da lesão por radiação e preserva o fluxo sangüíneo. Num modelo de rato com irradiação torácica, Sharma et al. administraram Ac-SDKP por via subcutânea durante 18 semanas. A radiação reduziu o fluxo sanguíneo em repouso, matou as células endoteliais, aumentou a fibrose coronária e desregulou as proteínas da junção estreita (claudina-1, JAM-2). O fluxo sanguíneo voltou ao normal, as células endoteliais foram preservadas, a fibrose foi reduzida e as junções estreitas foram restauradas. Estudos laboratoriais mostraram que o Ac-SDKP penetra nas células endoteliais e reduz os níveis de espécies reactivas de oxigénio induzidas pela radiação; em animais vivos, o péptido marcado concentrou-se nas células endoteliais em poucas horas. Estes resultados indicam proteção vascular, menos danos oxidativos e melhor integridade microvascular após a irradiação [15]. Além disso, reduz a formação de cicatrizes induzidas pelo stress nas células de suporte cardíaco. Nos fibroblastos cardíacos humanos, as células foram pré-tratadas com Ac-SDKP (10 nM) e depois tratadas com tunicamicina (0,25 µg/ml), que causa "stress proteico" no interior da fábrica celular (retículo endoplasmático). O Ac-SDKP ajudou a impedir que as células stressadas produzissem demasiado colagénio. Actua acalmando a resposta celular ao stress, diminuindo a atividade de uma proteína de stress chamada CHOP e reduzindo a atividade de um interrutor inflamatório chamado NF-κB. Também reduziu os níveis de IL-6, o sinal que desencadeia a inflamação. Quando o CHOP foi geneticamente reduzido, continuou a diminuir a atividade do NF-κB e do colagénio de tipo I, tanto ao nível das proteínas como do ARNm, confirmando a mesma via [16]. Em termos simples: em condições de stress, isto ajuda as células a evitar a produção excessiva de proteínas cicatrizantes.
Além disso, reduz a inflamação do revestimento dos vasos induzida pelo TNF-α. Nas células endoteliais da artéria coronária humana, a estimulação do TNF-α induziu um aumento significativo da expressão de ICAM-1. Esta molécula de adesão desempenha um papel fundamental na promoção da adesão dos leucócitos à superfície dos vasos sanguíneos. O pré-tratamento com Ac-SDKP reduziu significativamente os níveis de ICAM-1 de uma forma dependente da dose. A análise mecanicista mostrou que este efeito foi mediado pela inibição da cascata de sinalização IKK → IκB → NF-κB, que é crucial para a ativação da expressão de genes inflamatórios. Curiosamente, duas outras vias de sinalização, p38 MAPK e ERK, não foram alteradas, indicando que o Ac-SDKP interage seletivamente com a via NF-κB para exercer efeitos anti-inflamatórios nas células endoteliais [17]. A Ac-SDKP ajuda a manter o revestimento vascular quiescente e reduz a sua "pegajosidade" durante a inflamação. Além disso, previne a formação de cicatrizes nas grandes artérias na hipertensão induzida pela angiotensina II, mesmo sem baixar a própria pressão. Em ratos tratados com angiotensina II, o Ac-SDKP reduziu a acumulação de colagénio na aorta e reduziu os sinais (ARNm do colagénio de tipo I e III) que provocam a formação de cicatrizes. Reduziu também a sobreactividade da proteína quinase C, o stress oxidativo, o ICAM-1 e a entrada de macrófagos na parede do vaso. Os sinais de fibrose diminuíram (menos atividade do TGF-β1 e do Smad2), enquanto o inibidor natural desta via (Smad7) aumentou. A pressão sanguínea e a espessura da aorta permaneceram elevadas, pelo que estes benefícios para a parede do vaso foram devidos a efeitos diretos nos tecidos e não a alterações da pressão [18].
A Ac-SDKP também protege o coração dos danos causados pela radiação. Em ratos que receberam radiação torácica direcionada, 18 semanas de Ac-SDKP preservaram a função cardíaca, reduziram a acumulação de matriz extracelular e a fibrose, reduziram o influxo de macrófagos e reduziram a morte de células cardíacas. O nível e a libertação de Mac-2 (galectina-3), uma proteína macrofágica responsável pela fibrose, também diminuíram. A Ac-SDKP foi observada no interior dos macrófagos, perto do núcleo celular, e impediu a libertação de Mac-2 desencadeada pela radiação; quando os fibroblastos não tinham Mac-2, a radiação provocou sinais de cicatrização muito mais fracos [19]. Ajuda a manter a vasculatura e o tecido cardíaco mais saudáveis após a irradiação, reduzindo a inflamação e a formação de cicatrizes.
Ac-SDKP para a saúde dos pulmões (com base em estudos com animais)
A Ac-SDKP mostrou efeitos antifibróticos mais potentes do que a timosina-β4 em modelos pulmonares. Em primeiro lugar, em estudos laboratoriais que utilizaram células pulmonares de pessoas com fibrose pulmonar idiopática (FPI), abrandou o crescimento excessivo das células e reduziu dois sinais de fibrose induzidos por TGF-β: α-SMA e colagénio. Entretanto, em ratinhos que receberam bleomicina para induzir lesões pulmonares, a timosina-β4 ajudou numa fase inicial (dia 7), reduzindo a inflamação e as cicatrizes iniciais, mas não impediu a fibrose em fases posteriores (dias 14-21). Estes resultados sugerem que a Ac-SDKP bloqueia as fases primárias da formação de cicatrizes nas células e pode proporcionar benefícios anti-fibróticos mais estáveis e duradouros do que o seu precursor, a timosina-β4 [20]. Além disso, inibe a formação de cicatrizes pulmonares associadas à sílica, restaurando o KIF3A e desactivando a sinalização da β-catenina
. Na silicose, em particular, os níveis de KIF3A eram baixos em amostras de doentes e em pulmões de ratos. Quando o KIF3A foi restaurado, a atividade da β-catenina e dos seus impulsionadores a jusante MRTF-A e SRF diminuiu, abrandando assim a transição epitelial para miofibroblastos (EMyT) associada à formação de cicatrizes. Isto aumentou consistentemente a função do KIF3A e, consequentemente, diminuiu a sinalização da β-catenina/MRTF-A/SRF. No entanto, uma vez eliminado o KIF3A, o Ac-SDKP perdeu estes benefícios, confirmando que o KIF3A é essencial para a sua ação anti-fibrótica [21].
Num outro estudo, o Ac-SDKP em combinação com VIP atenuou as alterações relacionadas com a DPOC causadas pelo consumo de cigarros em ratinhos. Reduziu os danos oxidativos (níveis mais baixos de MDA), a formação de cicatrizes (níveis mais baixos de hidroxiprolina) e um fator-chave da fibrose (níveis mais baixos de TGF-β). Ao mesmo tempo, as citocinas inflamatórias (TNF-α, IL-1β, IL-6) diminuíram e a proteção antioxidante melhorou (maior atividade da SOD). De forma correspondente, o tecido pulmonar ao microscópio mostrou menos inflamação e menos remodelação estrutural. A combinação destas substâncias proporcionou benefícios antioxidantes, anti-inflamatórios e anti-fibróticos num modelo de lesão provocada pelo fumo [22, 23]. A Ac-SDKP também apresentou resultados significativos tanto na prevenção como no tratamento da fibrose pulmonar induzida pela bleomicina. Em ratinhos CD-1, o Ac-SDKP (0,6 mg/kg, i.p.) administrado a partir do dia 0 ou O dia 7 melhorou a sobrevivência e reduziu a perda de peso relacionada com a bleomicina. Além disso, os pulmões apresentaram menos inchaço e menos células imunitárias invasivas, uma estrutura de tecido mais saudável e menos fibrose: tanto a coloração de colagénio como os níveis de colagénio solúvel diminuíram. Mecanisticamente, os sinais pró-fibróticos de IL-17 e TGF-β diminuíram, e o α-SMA diminuiu, indicando menos miofibroblastos. É importante notar que os benefícios ocorreram tanto em esquemas precoces (profilácticos) como tardios (terapêuticos) [24]. Além disso, reduz a fibrose pulmonar induzida pela silicose através da via P-HSP27/SNAI1. Em ratos, a silicose causou um aumento de P-HSP27, SNAI1, α-SMA e colagénio I/III no tecido pulmonar. Em contrapartida, o Ac-SDKP - administrado antes da exposição ou após o início da doença - diminuiu todos estes marcadores e reduziu o número de células positivas tanto para P-HSP27 como para α-SMA na imagiologia. É importante notar que a sua administração a controlos saudáveis não alterou a expressão da proteína, sugerindo que o seu efeito é seletivo para os pulmões doentes [25].
Além disso, demonstrou fortes efeitos antifibróticos em vários estudos com animais. Uma meta-análise que incluiu 18 ensaios aleatorizados (428 animais, 2008-2021) concluiu que a Ac-SDKP reduziu vários sinais de fibrose em comparação com modelos não tratados: α-SMA (SMD -2,44), colagénio de tipo I (SMD -5,36), colagénio de tipo III (SMD -3,07), TGF-β (SMD -2,88) e área de nódulos pulmonares (SMD
-Além disso, a hidroxiprolina, uma leitura química do colagénio, também foi significativamente alterada [SMD 7,62; 95% CI 4,90-10,33; P=0,000], consistente com um efeito na renovação do colagénio. Estes resultados indicam que o Ac-SDKP retarda consistentemente a fibrose em modelos de doença pulmonar [26]. Noutro estudo, reduziu os níveis de TGF-β e CTGF, inibindo a cicatrização pulmonar associada à sílica em ratos. Os ratos receberam sílica para induzir a fibrose, seguida de Ac-SDKP profilático ou terapêutico (800 µg/kg/dia). Em comparação com o grupo de controlo da silicose, os níveis de proteína TGF-β1 (para ~0,244 ± 0,016) e CTGF (para ~0,241 ± 0,017) foram significativamente reduzidos nos pulmões tratados. Da mesma forma, os níveis de mRNA
diminuiu e o mRNA do CTGF foi notavelmente menor em comparação com os grupos modelo (P<0,05). No grupo de profilaxia, tanto a proteína como o ARNm do TGF-β1 estavam significativamente abaixo dos níveis do modelo de silicose de 8 semanas (P<0,05). Finalmente, a histologia pulmonar confirmou uma menor fibrose [27]. Além disso, inibe a acumulação de colagénio e melhora a estrutura pulmonar na silicose. Os ratos expostos à silicose receberam Ac-SDKP após a lesão (tratamento) ou 48 horas antes da exposição (profilaxia). Nos grupos de tratamento, em comparação com os modelos de silicose, a área dos nódulos de silicose diminuiu para 84,28% e 67,93%, a hidroxiprolina para 70,89% e 58,18%, o colagénio de tipo I para 71,08% e 58,13%, e o colagénio de tipo III para 80,13% e 70,70% (nos respectivos momentos). Nos grupos profiláticos, em comparação com o modelo de silicose de 8 semanas, os nódulos diminuíram para 61,13%, a hidroxiprolina para 60,27% e o colagénio de tipo I e III para 40,13% e 65,77%. De forma correspondente, a coloração HE e VG mostrou uma fibrose mais ligeira. Isto reduziu tanto o conteúdo de colagénio como as cicatrizes visíveis [28].
Além disso, protege os pulmões e os ossos, acalmando as vias dos macrófagos quando expostos à sílica. Em ratos e em modelos celulares, a sílica activou o TLR4 e o RANKL, provocando uma inflamação pulmonar e a reabsorção óssea pelos osteoclastos. Em contrapartida, o tratamento com Ac-SDKP inibiu a sinalização de TLR4 e RANKL, protegeu a elastina pulmonar, reduziu a inflamação pulmonar e diminuiu a ativação dos macrófagos. Ao mesmo tempo, no osso, o Ac-SDKP bloqueou a diferenciação dos osteoclastos e ajudou a manter a densidade e a microarquitectura ósseas. Estes resultados indicam uma dupla proteção: pulmões mais saudáveis e ossos mais estáveis em doenças relacionadas com a sílica [29]. Também reduz a formação de cicatrizes nos pulmões, inibindo a maturação das células formadoras de cicatrizes. O TGF-β1 estimula normalmente as células de suporte dos pulmões (fibroblastos) a transformarem-se em miofibroblastos e a produzirem colagénio adicional. Quando o Ac-SDKP foi administrado antes do TGF-β1, os níveis de α-SMA e de colagénio diminuíram, e os níveis de TGF-β1 e do seu recetor também diminuíram. Posteriormente, em ratos com lesão pulmonar induzida por sílica, a administração de Ac-SDKP antes ou após a exposição diminuiu os níveis de TGF-β1, sinais RAS e atividade SRF, e reduziu o número de miofibroblastos positivos para α-SMA em nódulos pulmonares. Como resultado, a acumulação de colagénio diminuiu, demonstrando proteção contra a fibrose [30, 31]. Além disso, a Ac-SDKP protege o revestimento alveolar, impedindo que as células epiteliais se transformem em células formadoras de cicatrizes. Sob a influência de sinais de danos como a silicose e o TGF-β1, os marcadores epiteliais (E-caderina, SP-A) diminuem, enquanto os marcadores mesenquimais e de fibrose (vimentina, α-SMA, colagénio I/III) aumentam. Com o Ac-SDKP, esta alteração prejudicial foi invertida: a identidade epitelial foi preservada, os marcadores de fibrose diminuíram e a via TGF-β1/ROCK1 foi atenuada. Consequentemente, a delicada superfície alveolar permaneceu mais próxima do normal e menos propensa a cicatrizes [32]. Além disso, alivia o stress da "fábrica de proteínas" e a morte celular nas células alveolares, o que, por sua vez, reduz as cicatrizes pulmonares. Quando ocorre a silicose, as células apresentam sinais elevados de stress do ER (GRP78, PERK fosforilado e eIF2α), CHOP e caspase-12, e muitas células morrem. Com o Ac-SDKP - bem como com o bloqueador do stress do ER 4-PBA - estes marcadores de stress diminuíram, a morte celular diminuiu em ensaios celulares e em ratos, e o colagénio pulmonar diminuiu. De um modo geral, ao acalmar a via PERK/eIF2α/CHOP e a caspase-12, o Ac-SDKP ajuda a proteger a camada epitelial e retarda a progressão da fibrose [33].
Ac-SDKP para a saúde dos rins (com base em estudos com animais)
O Ac-SDKP protege os rins no lúpus sem baixar a tensão arterial. Nakagawa et al (2017) mostraram que, em ratinhos NZBWF1 propensos ao lúpus, preservou os filtros renais (menos esclerose glomerular) e reduziu os danos globais sem baixar a pressão arterial sistólica. O aparecimento de hipertensão grave, albumina urinária e morte prematura ocorreu mais tarde com Ac-SDKP, mas esses atrasos não foram estatisticamente significativos [34]. A substância também protege a função renal durante o stress salino. Worou et al (2015) estudaram ratos Dahl sensíveis ao sal que foram tratados com 800 ou 1600 µg/kg/dia durante seis semanas. A pressão sanguínea continuou a aumentar devido à dieta salina, mas os rins apresentaram menos inflamação, menos fibrose e filtros mais saudáveis. Apenas a dose mais elevada reduziu os níveis de albumina urinária nos ratos sensíveis ao sal. Na estirpe mais resistente (SS13BN), ambas as doses impediram a fuga de albumina e os danos estruturais [35]. Isto indica que o efeito protetor é independente da pressão arterial. O peptídeo também reduz o dano renal imunomediado no lúpus. Liao et al (2015) verificaram que, às 20 semanas, os ratinhos com tendência para o lúpus tratados apresentavam uma melhor função renal, embora os níveis de auto-anticorpos do lúpus se mantivessem inalterados. Os rins continham menos células imunes invasivas, como macrófagos e células T. Os sinais inflamatórios, como citocinas e quimiocinas, eram menores, e a ativação das proteínas do complemento (C5-9), RANTES, MCP-5 e ICAM-1 foi inibida. Como resultado, a função de filtração foi preservada e o dano microscópico foi reduzido [36].
Noutro estudo, previne as lesões renais relacionadas com a hipertensão, apesar da persistência de uma pressão arterial elevada. Rhaleb et al (2011) mostraram que, em ratinhos tratados com DOCA salina, o Ac-SDKP (800 µg/kg/dia durante 12 semanas) reduziu a formação de cicatrizes renais (colagénio), a expansão da matriz de filtração e o influxo de monócitos/macrófagos, ao passo que a pressão arterial se manteve elevada. É importante notar que os níveis de albumina urinária normalizaram - de 41 ± 5 µg para 13 ± 3 µg por 10 g de peso corporal por dia, aproximando-se dos níveis de controlo - e a perda de nefrina (uma proteína chave da lacuna de filtração) foi parcialmente restaurada [37]. Assim, a Ac-SDKP protegeu a barreira de filtração e reduziu as cicatrizes, independentemente da pressão arterial. Além disso, protege contra a formação de cicatrizes e a disfunção renal induzida pela diabetes. Shibuya et al (2005) mostraram que em ratinhos db/db com diabetes tipo 2, a administração de Ac-SDKP durante oito semanas através de minibombas resultou num aumento de aproximadamente três vezes na concentração plasmática de Ac-SDKP sem qualquer alteração nos níveis de açúcar no sangue. Como resultado, o edema glomerular, a proliferação excessiva da matriz mesangial e a acumulação de matriz extracelular foram evitados e os níveis de creatinina plasmática aproximaram-se do normal. A albuminúria também diminuiu, embora a diminuição não tenha sido estatisticamente significativa. Mecanicamente, bloqueou a entrada de Smad3 no núcleo da célula, reduzindo assim a sinalização TGF-β/Smad associada à fibrose [38]. Além disso, o Ac-SDKP reduz a cicatrização renal no diabetes e é um benefício adicional além da inibição da ECA. Castoldi et al (2013) induziram diabetes em ratos e depois administraram Ac-SDKP (1 mg / kg / dia), ramipril (3 mg / kg / dia), ambos os medicamentos juntos ou placebo. Em primeiro lugar, os ratos diabéticos não tratados desenvolveram níveis elevados de açúcar no sangue, níveis mais elevados de albumina urinária (albuminúria), fibrose renal
fibrose renal e redução dos níveis de nefrina glomerular. Com o Ac-SDKP isolado, a fibrose renal diminuiu, mas a albuminúria não melhorou. Com o ramipril, tanto a albuminúria como a fibrose diminuíram e os níveis de nefrina foram restaurados. É importante notar que a combinação de Ac-SDKP com ramipril proporcionou uma maior redução da fibrose do que o ramipril isoladamente, embora a albuminúria não tenha melhorado mais. O Ac-SDKP reduz a fibrose na nefropatia diabética e aumenta a proteção anti-fibrótica dos inibidores da ECA sem benefício adicional na albuminúria [39].
Curiosamente, Zhang et al (2022) desenvolveram um hidrogel de rede dupla bio-inspirado composto por gelatina e curcumina-zinco, revestido com DOPA e funcionalizado com Ac-SDKP imobilizado. Este sistema foi concebido para ultrapassar as limitações dos fármacos livres, incluindo a fraca solubilidade, absorção e estabilidade. A aplicação in vivo em rins de ratos parcialmente nefrectomizados mostrou que o hidrogel reduziu consistentemente a fibrose local, promoveu a angiogénese e estimulou a formação de novos túbulos renais. Os testes de materiais confirmaram uma porosidade, resistência mecânica e biocompatibilidade adequadas, apoiando ainda mais o seu potencial terapêutico [40]. Estudos comparativos também destacam os efeitos distintos e dependentes do estágio da timosina-β4 (Tβ4). Zuo et al (2013) utilizaram modelos de obstrução ureteral unilateral em ratinhos de tipo selvagem e excluídos do gene PAI-1 para avaliar a Ac-SDKP, a Tβ4 e a Tβ4 em combinação com o inibidor da prolil oligopeptidase (POP). A Ac-SDKP reduziu consistentemente a fibrose em ambos os genótipos, como demonstrado pela menor deposição de colagénio e fibronectina, menos miofibroblastos e macrófagos activados e sinalização pró-fibrótica reduzida [41]. Além disso, Wang et al (2010) demonstraram que a Ac-SDKP inibiu a inflamação renal e a fibrose induzida pela obstrução. Em ratos com obstrução ureteral unilateral, o tratamento de 14 dias reduziu a cicatrização tubulointersticial e as alterações inflamatórias no exame histológico. O péptido reduziu a infiltração de macrófagos renais (ED-1) e diminuiu os níveis das proteínas MCP-1, NF-κB, α-SMA e TGF-β1 nas células tubulares e intersticiais. A expressão dos genes MCP-1 e TGF-β1 também foi reduzida, indicando que isso reduziu tanto o transporte inflamatório quanto a ativação da matriz extracelular, que são os principais motores da fibrose renal [42]. Outras evidências provêm de modelos de hipertensão com lesão renal crónica. Liao et al (2010) administraram Ac-SDKP numa dose de 800 µg/kg/dia a ratos após nefrectomia 5/6, quer antes da lesão (prevenção) quer após a lesão (reversão). Apesar da hipertensão persistente e da hipertrofia ventricular esquerda, o tratamento reduziu a albuminúria, reduziu a infiltração de macrófagos e reduziu os níveis de colagénio renal em ambos os grupos. A perda de nefrina nos glomérulos foi também parcialmente preservada ou restaurada, sugerindo uma melhoria da integridade da barreira de filtração. Estes resultados sublinham que o péptido proporcionou proteção renal tanto nas fases iniciais como nas fases avançadas da doença, principalmente através de efeitos anti-inflamatórios e anti-fibróticos e não através do controlo da pressão arterial [43].
Na hipertensão causada por sal de aldosterona, o péptido reduziu a formação de cicatrizes no coração e nos rins sem afetar a pressão arterial. Peng et al (2001) estudaram ratos aos quais foi retirado um rim e que foram
foi medicado com aldosterona e sal durante seis semanas. Este tratamento fez subir a pressão arterial, aumentou o coração e os rins e aumentou o tecido cicatricial (colagénio) juntamente com os marcadores de crescimento celular (PCNA). A administração de Ac-SDKP, especialmente na dose mais elevada de 800 µg/kg/dia, diminuiu significativamente o colagénio e o PCNA de forma dependente da dose. É importante notar que a pressão arterial e o aumento dos órgãos permaneceram inalterados, enquanto uma dose mais baixa (400 µg/kg/dia) proporcionou um benefício parcial [44]. Na doença renal imunomediada, o péptido melhorou a função renal e reduziu a fibrose. Omata et al (2006) trataram ratos com nefrite anti-GBM, com início 14 dias após o início da doença, com Ac-SDKP a 1 mg/kg/dia durante quatro semanas. Em comparação com animais não tratados, reduziu os níveis de proteína urinária, diminuiu as concentrações de ureia e creatinina no plasma e melhorou a depuração da creatinina. A análise dos tecidos revelou uma menor esclerose glomerular e uma menor fibrose intersticial. Mecanicamente, diminuiu os níveis de fibronectina, colagénio e TGF-β1, diminuiu a sinalização Smad2, aumentou Smad7 e diminuiu a acumulação de macrófagos no tecido renal [45]. Na diabetes, o péptido bloqueou a formação de cicatrizes renais, impedindo que as células dos vasos sanguíneos se transformassem em células formadoras de cicatrizes. Nagai et al (2014) mostraram que o Ac-SDKP restaurou as vias naturais de proteção, incluindo o microRNA let-7 e a sinalização do recetor FGF, que foram inibidas pela diabetes. Como resultado, reduziu a fibrose e a transição endotelial-mesenquimal (EndMT). É importante notar que a sua combinação com um inibidor da ECA melhorou a proteção renal ainda mais do que a inibição da ECA isolada [46].
Noutro estudo, o péptido restaurou o metabolismo renal saudável e reduziu a fibrose. Srivastava et al (2020) compararam os inibidores da ECA, os BRA, o Ac-SDKP e as suas combinações em ratinhos com diabetes. Bloquearam também a sua formação natural com um inibidor da prolina oligopeptidase (POPi). Os resultados mostraram que o Ac-SDKP media os efeitos dos inibidores da ECA reprogramando o metabolismo renal: a SIRT3 foi restaurada, a oxidação mitocondrial dos ácidos gordos foi melhorada e a utilização anormal da glicose foi reduzida. Em contraste, o POPi reduziu os níveis naturais, acelerou a fibrose e perturbou o equilíbrio metabólico. É importante notar que os inibidores da ECA (mas não os ARB) restauraram parcialmente os seus níveis e reduziram a fibrose. Tanto os inibidores da ECA como o Ac-SDKP reduziram a remodelação mesenquimal e diminuíram os níveis de colagénio I e de fibronectina nos rins diabéticos [47].
Na terapia do cancro, o análogo Ac-SDKP ajudou a preservar as células sanguíneas durante a quimioterapia. Carde et al (1992) testaram a seraspenida num ensaio de fase I-II, em dupla ocultação e cruzado, que envolveu 53 pacientes que receberam citarabina ou ifosfamida. Em comparação com os períodos de controlo, os pacientes tratados com seraspenida apresentaram uma melhor proteção das células do sangue periférico contra a toxicidade da quimioterapia. Foi bem tolerado e não apresentou efeitos adversos. Estes resultados sugerem que os péptidos do tipo Ac-SDKP podem proteger a medula óssea durante o tratamento citotóxico [48]. Noutro estudo, o péptido não reduziu a toxicidade sanguínea, mas foi seguro. Cappelaere et al (1995) estudaram 84 doentes com carcinoma de células escamosas avançado que receberam carboplatina e uma dose contínua de 5-fluorouracil, juntamente com
placebo ou goralatide (Ac-SDKP) numa dose de 12,5 ou 62,5 µg/kg/dia. Durante 221 ciclos de quimioterapia, não se registaram diferenças nas contagens sanguíneas mais baixas de leucócitos, granulócitos, plaquetas ou hemoglobina entre os grupos. A duração da toxicidade também se manteve inalterada. No entanto, a anemia e a linfopenia foram mais frequentes com o goralatide. Globalmente, o medicamento foi bem tolerado, mas nestas doses não impediu a perda de células sanguíneas relacionada com a quimioterapia [49].
Tanto na diabetes de tipo 1 como na de tipo 2, o péptido melhorou a cicatrização e a função renal. Nitta et al (2016) trataram ratinhos CD-1 com diabetes de tipo 1 induzida por estreptozotocina e ratinhos db/db com diabetes de tipo 2 com Ac-SDKP oral, imidapril (inibidor da ECA) ou ambos os fármacos combinados. O tratamento oral, isolado ou em combinação, reduziu a esclerose glomerular e a fibrose tubulointersticial. Os níveis plasmáticos de cistatina C, que estão elevados na doença renal, voltaram aos níveis normais. Todas as terapias restauraram os microRNAs anti-fibróticos suprimidos (miR-29 e let-7), com a maior melhoria observada no grupo que recebeu tratamento combinado. Os níveis de péptidos urinários foram mais elevados no grupo que recebeu o tratamento combinado, indicando uma melhoria na exposição sistémica [50]. No caso da doença renal imunomediada, isto reduziu os níveis de proteína urinária e reduziu a inflamação e a fibrose. Tan et al (2012) administraram LMR/lpr 1,0 mg/kg/dia durante 8 semanas a ratinhos com lúpus. Em comparação com ratinhos com lúpus não tratados, os ratinhos que receberam o péptido apresentaram menos proteinúria e melhor função renal. O tecido renal continha menos células T e macrófagos infiltrados. Mecanisticamente, verificou-se uma redução da ativação do NF-κB e da produção de TNF-α, bem como uma redução dos marcadores pró-fibróticos (TGF-β1, α-SMA e fibronectina). A fosforilação de Smad2/3 foi inibida e a de Smad7 aumentada. É importante salientar que a deposição de complexos imunitários e os níveis de anticorpos anti-dsDNA não foram alterados, sugerindo que os benefícios se deveram a uma redução da inflamação e da fibrose e não a uma alteração na formação de anticorpos [51].
Na obesidade e no consumo elevado de sal, protegeu os rins reduzindo a inflamação, a fibrose e até a pressão arterial. Maheshwari et al. (2018) estudaram ratos Zucker magros (ZL) e Zucker obesos (ZO) alimentados com sal normal (0,4%) ou sal elevado (4%) durante 8 semanas, tendo o subgrupo ZO recebido um
1,6 mg/kg/dia. O sal elevado agravou a inflamação renal e a fibrose em ambos os grupos, com os ratos obesos a apresentarem a infiltração macrofágica mais grave (87,8 ± 10,8 versus 19,14 ± 1,5 células/mm² nos ratos magros). O tratamento reduziu a infiltração de macrófagos nos ratos obesos para 32,18 ± 2,4 células/mm² (P<0,05) e reduziu a esclerose glomerular, bem como a fibrose intersticial tanto no córtex como na medula (P<0,05). A pressão arterial sistólica em ratos obesos alimentados com sal também diminuiu de 164 ± 6,9 para 144,05
± 14,1 mmHg (P=0,004). A albuminúria foi maior em ratos obesos do que em ratos magros, mas não foi significativamente alterada pela ingestão de sal ou pelo tratamento [52].
Ac-SDKP para a saúde do cérebro e dos nervos (com base em estudos com animais)
Proteção em modelos da doença de Parkinson
Este péptido ajuda a proteger os neurónios produtores de dopamina e promove a melhoria das capacidades motoras e da memória em modelos da doença de Parkinson. Kamarehei e Zahednasab (2025) foram os primeiros a demonstrar, em experiências celulares, que o pré-tratamento de células nervosas SH-SY5Y com 20 nM deste péptido as protegia da 6-OHDA, uma toxina habitualmente utilizada para simular a doença de Parkinson. Em estudos realizados com ratos, doses diárias de 800 µg/kg após lesões cerebrais provocadas pela 6-OHDA preservaram mais neurónios dopaminérgicos e reduziram a morte celular diminuindo a atividade da caspase-3 e da caspase-12. Os ratos tratados apresentaram igualmente uma melhor coordenação motora, uma melhor memória espacial e menos sintomas de ansiedade e de depressão. Mecanisticamente, os benefícios deveram-se à redução do stress oxidativo, ao alívio do stress do retículo endoplasmático (ER) e à redução dos sinais inflamatórios no cérebro, o que promove a sobrevivência e a regeneração neuronais [53].
Regeneração após lesão da espinal medula
Acelera igualmente a recuperação e reorienta a inflamação para a cura após uma lesão da espinal medula. Hashemizadeh et al (2022) administraram 0,8 mg/kg por via subcutânea a ratos Wistar uma vez por dia durante sete dias, com início duas a seis horas após a lesão da espinal medula causada por uma queda de peso. Em comparação com os animais não tratados, os ratos tratados recuperaram uma melhor capacidade de andar, perderam menos neurónios motores e apresentaram níveis mais baixos de TNF-α (um sinal pró-inflamatório) e de caspase-3. Ao mesmo tempo, o nível de ARNm de CD206, um marcador de macrófagos M2 pró-envelhecimento, aumentou. Os exames dos tecidos revelaram áreas de danos mais pequenas. Globalmente, o tratamento alterou a resposta imunitária, passando de uma atividade prejudicial do tipo M1 para uma atividade protetora do tipo M2, com benefícios funcionais e estruturais [54].
Proteção após traumatismo crânio-encefálico (TCE)
O Ac-SDKP ajuda a proteger o cérebro e promove a reparação cerebral quando administrado logo após a lesão. Zhang et al (2017) induziram lesões corticais controladas em ratos e administraram-lhes este agente (0,8 mg/kg/dia) através de uma minibomba durante três dias, com início uma hora após a lesão. Do dia 7 ao dia 35, os resultados dos testes sensório-motores melhoraram e, nos dias 33-35, a aprendizagem espacial também melhorou em comparação com o grupo de controlo (p <0,05). No final do estudo, a quantidade de danos corticais e a perda de neurónios do hipocampo tinham diminuído, enquanto o crescimento dos vasos sanguíneos, a formação de novos neurónios e a densidade de picos dendríticos eram maiores. O tratamento precoce também reduziu a acumulação de fibrina e atenuou a ativação das células imunitárias. Testes mecanicistas mostraram que o bloqueio da sinalização TGF-β1/NF-κB explicava grande parte do efeito anti-inflamatório [55].
Benefícios numa doença semelhante à esclerose múltipla (EM)
Reduz igualmente o stress cerebral e a inflamação em modelos de esclerose múltipla. Pejman et al (2020) submeteram ratinhos C57BL/6 a uma encefalomielite autoimune experimental (EAE). Normalmente, a EAE aumenta os marcadores de stress ER (caspase-12, CHOP, PDI), o stress oxidativo e o influxo de células imunitárias no hipocampo. Com o tratamento, os níveis de caspase-12 e CHOP nos oligodendrócitos diminuíram, a ativação da caspase-3 diminuiu, a oxidação de ROS e a peroxidação lipídica diminuíram, a capacidade antioxidante melhorou e os níveis de IL-6/IL-1β diminuíram. Os exames cerebrais confirmaram menos danos no hipocampo e menos infiltração de células imunitárias, o que indica uma progressão mais lenta da doença [56].
Ac-SDKP para a saúde do fígado (com base em estudos com animais)
Abrandamento das cicatrizes hepáticas induzidas por produtos químicos
O péptido Ac-SDKP ajuda a proteger o fígado de danos químicos, regulando um interrutor de controlo de genes chave e uma via de crescimento. Wei et al. (2022) estudaram ratos com lesão hepática induzida por tetracloreto de carbono (CCl₄) e encontraram menos morte de células estreladas - as principais células formadoras de cicatrizes no fígado. A fibrose também foi reduzida. Testes mecanísticos mostraram que o tratamento reduziu os níveis de WTAP, a enzima que adiciona marcadores m⁶A ao RNA. Esta alteração estabilizou o RNA Ptch1 e ajustou a atividade da via Hedgehog, o principal motor da formação de cicatrizes. No geral, os resultados destacam um efeito anti-fibrótico através da via WTAP/m⁶A/Ptch1, que regula a sinalização Hedgehog [59].
Proteção na fibrose causada pelos canais biliares
A Ac-SDKP também protege o fígado quando a cicatrização é causada por bloqueio biliar. Zhang et al (2012) utilizaram o modelo de ligadura do ducto biliar (BDL) em ratos e trataram-nos continuamente durante quinze dias. Em comparação com os animais não tratados, os que receberam o péptido tiveram uma inibição da sinalização do TGF-β1 e níveis mais baixos de marcadores associados às células estreladas activadas (α-SMA, FSP-1). A expressão dos genes relacionados com o colagénio (Col I, Col III) e das enzimas de renovação (MMP-2, TIMP-1, TIMP-2) também diminuiu. Os marcadores sanguíneos relacionados com a função hepática melhoraram, com a ALT, a AST, a bilirrubina e o tempo de protrombina a aproximarem-se do normal. Nas preparações de tecidos, observou-se um menor número de mastócitos, uma menor acumulação de colagénio e uma redução global da fibrose e da inflamação [60].
Manutenção dos sinais naturais de defesa e reparação
Ajuda o fígado a manter a sua resistência natural durante danos químicos prolongados. Chen et al (2010) descobriram que, com a exposição contínua ao CCl₄, os níveis naturais do péptido diminuíam ao longo do tempo. A sua substituição por infusão (800 µg/kg/dia durante oito semanas) manteve os níveis de base e reduziu os danos no fígado, a inflamação e a fibrose. Os níveis de enzimas hepáticas no sangue diminuíram, as células inflamatórias CD45⁺ diminuíram.
e os depósitos de colagénio e α-SMA diminuíram. Os sinais pró-fibróticos, como TGF-β1 e fosfo-Smad2/3, diminuíram, enquanto os sinais relacionados com a reparação, BMP-7 e fosfo-Smad1/5/8, aumentaram. Em ensaios celulares, bloqueou diretamente a ativação das células estreladas, confirmando um efeito anti-fibrótico a nível celular [61].
Ac-SDKP para reparação da pele e dos tecidos (com base em estudos em animais) H3. Adesivo cutâneo de hidrogel para acelerar a cicatrização e reduzir as cicatrizes
Foi desenvolvido um adesivo especial para a pele à base de celulose (Dopa-OCMC-PAA, comparado com OCMC-PAA) para transportar e libertar Ac-SDKP. Ambas as versões apresentaram bons perfis de inchaço e degradação, elevada resistência mecânica e segurança para utilização com células, mas o Dopa-OCMC-PAA teve o melhor desempenho. Em ratinhos com hemorragia hepática, este adesivo parou a hemorragia mais rapidamente. Em testes com fibroblastos, aumentou os níveis de enzimas responsáveis pela remodelação dos tecidos (MMP-1 e MMP-3), enquanto diminuía a atividade dos genes do colagénio. Em coelhos com cicatrizes auriculares espessadas, o Dopa-OCMC-PAA combinado com um péptido reduziu a pontuação das cicatrizes, diminuiu a contagem de células, melhorou a estrutura do colagénio e voltou a apresentar níveis mais elevados de MMP-1/MMP-3 com uma menor atividade dos genes do colagénio. Em resumo, estes resultados revelaram uma melhor cicatrização das feridas e menos cicatrizes [62].
A aplicação tópica melhora a sobrevivência e a reparação da pele
Em cirurgias de retalhos cutâneos em ratos (abdominal e dorsal), as injecções de Ac-SDKP numa dose de 5 µg/kg duas vezes por dia durante três dias aumentaram a sobrevivência da pele saudável. A área do retalho viável aumentou de 50,9 ± 19,3% para 66,4 ± 7,5% nos retalhos ventrais e de 53,4 ± 4,2% para 74,7 ± 6,6% nos retalhos dorsais. No tecido cutâneo danificado por UVB, a aplicação tópica melhorou a sobrevivência. A aplicação tópica também acelerou o crescimento de pele nova, aumentou os níveis de queratina-14 (um marcador de células de construção da pele) e aumentou os níveis de fibronectina, demonstrando o seu papel no desenvolvimento e reparação de vasos sanguíneos [63].
Proteção da formação do sangue durante a quimioterapia
Em ratinhos que receberam o medicamento de quimioterapia doxorrubicina, a administração de Ac-SDKP numa dose de 2,4 µg/dia (contínua ou dividida), com início 48 horas antes do tratamento, reduziu a mortalidade e protegeu as células estaminais responsáveis pela formação de sangue (LTRC, CFU-S, HPP-CFC e CFU-GM). A adição de G-CSF acelerou ainda mais a recuperação das CFU-GM. O momento da administração foi crucial - para proteger contra danos na medula a curto prazo e perda de células estaminais a longo prazo, foi necessário iniciar a administração antes da quimioterapia [64].
Efeito anti-fibrótico mais forte devido a análogos melhorados e à combinação de inibidores da ECA
Em experiências com fibroblastos pulmonares, a forma resistente à ECA da Ac-SDKP reduziu os sinais de cicatrização (TGF-β/Smad3) e a acumulação de colagénio melhor do que a forma natural. O fragmento encurtado (Ac-DKP) teve apenas um efeito fraco e foi lentamente degradado pela ECA. Em combinação com inibidores da ECA, o péptido inibiu a hidroxiprolina (um marcador de colagénio) mais do que isoladamente, mostrando um efeito mais forte e potencial clínico. Em doses de 10-⁶ a 10-¹⁷ M, tanto a timosina-β4 (Tβ4) quanto o peptídeo reduziram o crescimento de mastócitos (melhor em 10-¹⁴ M) e induziram mudanças nucleares incomuns associadas à parada do ciclo celular. A uma concentração de 10-⁸ M, eles também induziram a liberação de produtos químicos dos mastócitos (desgranulação), com o peptídeo mostrando um efeito mais forte (~ 89%) do que Tβ4 (~ 57%). Outros fragmentos de Tβ4 não apresentaram qualquer efeito, demonstrando que o efeito era específico do Tβ4 intacto e do péptido [65, 66].
Dose de Ac-SDKP
Em estudos pré-clínicos, a Ac-SDKP é mais frequentemente administrada por via subcutânea através de minibomba numa dose de aproximadamente 0,8 mg/kg/dia para reduzir a fibrose e a inflamação no coração/vasculatura e nos rins. Em estudos realizados em ratos após enfarte do miocárdio, é por vezes utilizada uma dose de 1,6 mg/kg/dia para proporcionar uma proteção precoce. No cérebro/neurónios, é normalmente utilizada uma dose de aproximadamente 0,8 mg/kg/dia durante 3-7 dias, em ciclos curtos que começam horas após a lesão. Em estudos celulares, é comum o pré-tratamento com uma dose de cerca de 10 nM. No fígado, em protocolos anti-fibróticos, é frequentemente administrada uma dose de aproximadamente 0,8 mg/kg/dia durante a lesão crónica. No pulmão, o modelo da bleomicina utilizou uma dose de 0,6 mg/kg por via intraperitoneal com doses repetidas a partir do dia 0 ou do dia 7. Na reparação da pele/feridas, a dosagem tópica incluiu 5 µg/kg por injeção duas vezes por dia durante três dias ou hidrogéis contendo péptidos para libertação tópica. Na hematologia/reparação da medula óssea, são utilizadas doses muito baixas de microgramas, como 2,4 µg/dia em ratinhos antes da quimioterapia e tratamentos curtos de µg/kg/dia nos primeiros ensaios clínicos.
Declaração de exoneração de responsabilidade
Este artigo foi escrito para fins educativos e tem como objetivo aumentar a sensibilização para a substância em questão. É importante notar que o artigo é sobre a substância em geral - não é uma descrição de um produto específico (reagente químico). Não estamos a sugerir a utilização de reagentes químicos em seres humanos - isso é proibido por lei, pois para um produto ser utilizado para tratamento tem de estar registado como medicamento. A informação contida no texto baseia-se em estudos científicos disponíveis e não pretende ser um conselho médico ou promover a auto-medicação. O leitor deve consultar um profissional de saúde qualificado para todas as decisões de saúde e tratamento.
Referências
- Wang, W., Jia, W. e Zhang, C. (2022). O papel do eixo Tβ4-POP-Ac-SDKP na fibrose de órgãos. Revista internacional de ciências moleculares, 23(21), 13282. https://doi.org/10.3390/ ijms232113282
- Nakagawa, P., Romero, C. A., Jiang, X., D'Ambrosio, M., Bordcoch, G., Peterson, E. L., Harding, P., Yang, X. P. e Carretero, O. A. (2018). Ac-SDKP reduz a mortalidade e o risco de rutura cardíaca após infarto agudo do miocárdio. PLoS Um, 13(1), e0190300. https://doi.org/10.1371/ journal.pone.0190300 https://pubmed.ncbi.nlm.nih.gov/29364896/
- Peng, H., Carretero, O. A., Brigstock, D. R., Oja-Tebbe, N. e Rhaleb, N. E. (2003). O Ac-SDKP reverte a fibrose cardíaca em ratos com hipertensão vascular renal. Hipertensão, 42(6), 1164–1170. https://doi.org/10.1161/01.HYP.0000100423.24330.96 https://pubmed.ncbi.nlm.nih.gov/14581293/
- Yang, F., Yang, X. P., Liu, Y. H., Xu, J., Cingolani, O., Rhaleb, N. E., & Carretero, O. A. (2004). Ac-SDKP reverte a inflamação e a fibrose em ratos com insuficiência cardíaca após infarto do miocárdio. Hipertensão, 43(2), 229-236. https://doi.org/10.1161/01.HYP.0000107777.91185.89 https:// pubmed.ncbi.nlm.nih.gov/14691195/
- Rasoul, S., Carretero, O. A., Peng, H., Cavasin, M. A., Zhuo, J., Sanchez-Mendoza, A., Brigstock,
D. R. e Rhaleb, N. E. (2004). Efeitos anti-fibróticos do Ac-SDKP e da inibição da enzima de conversão da angiotensina na hipertensão. Jornal de Hipertensão, 22(3), 593-603. https://doi.org/ 10.1097/00004872-200403000-00023 https://pubmed.ncbi.nlm.nih.gov/15076166/
- Rhaleb, N. E., Peng, H., Harding, P., Tayeh, M., LaPointe, M. C. e Carretero, O. A. (2001). Effects of N-acetyl-seryl-aspartyl-lysyl-proline on DNA and collagen synthesis in rat cardiac fibroblasts. Hipertensão, 37 (3), 827-832. https://doi.org/10.1161/01.hyp.37.3.827 https:// pubmed.ncbi.nlm.nih.gov/11244003/
- Liu, Y.-H., D'Ambrosio, M., Liao, T.-D., Peng, H., Rhaleb, N.-E., Sharma, U., André, S., Gabius, H.-J. e Carretero, O. A. (2009). N-acetil-seril-aspartil-lisil-prolina previne a remodelação e disfunção cardíaca induzida pela galectina-3, uma lectina que regula a adesão/crescimento em mamíferos. American Journal of Physiology-Heart and Circulatory Physiology, 296(2), H404-H412. https://doi.org/ 10.1152/ajpheart.00747.2008 https://pubmed.ncbi.nlm.nih.gov/19098114/
- Rhaleb, N. E., Peng, H., Yang, X. P., Liu, Y. H., Mehta, D., Ezan, E. e Carretero, O. A. (2001). Long-term effects of N-acetyl-seryl-aspartyl-lysyl-proline on left ventricular collagen deposition in rats with hypertension caused by damage to two kidneys and clamping of one of them. Circulation, 103(25), 3136-3141. https://doi.org/ 10.1161/01.cir.103.25.3136 https://pubmed.ncbi.nlm.nih.gov/11425781/
- Cavasin M. A. (2006). Potencial terapêutico da timosina beta4 e seu derivado N-acetil-seril-aspartil-lisil-prolina (Ac-SDKP) no tratamento do coração após infarto do miocárdio. American journal of cardiovascular drugs : medicamentos, dispositivos e outras intervenções, 6(5), 305-311. https://doi.org/ 10.2165/00129784-200606050-00003 https://pubmed.ncbi.nlm.nih.gov/17083265/
- Rhaleb, N. E., Pokharel, S., Sharma, U. C., Peng, H., Peterson, E., Harding, P., Yang, X. P. e Carretero, O. A. (2013). N-acetil-Ser-Asp-Lys-Pro inibe a ativação da metaloproteinase da matriz pela interleucina-1β em fibroblastos cardíacos. Arquivo Pflügers - Jornal Europeu de
Fisiologia, 465(10), 1487-1495. https://doi.org/10.1007/s00424-013-1262-8 https:// pubmed.ncbi.nlm.nih.gov/23652767/
- Nakagawa, P., Liu, Y., Liao, T. D., Chen, X., González, G. E., Bobbitt, K. R., Smolarek, D., Peterson, E. L., Kedl, R., Yang, X. P., Rhaleb, N. E. e Carretero, O. A. (2012). O tratamento com N-acetil-seril-aspartil-lisil-prolina previne a miocardite autoimune experimental em ratos. American Journal of Physiology-Heart and Circulatory Physiology, 303(9), H1114-H1127. https:// doi.org/10.1152/ajpheart.00300.2011 https://pubmed.ncbi.nlm.nih.gov/22923621/
- González, G. E., Rhaleb, N. E., Nakagawa, P., Liao, T. D., Liu, Y., Leung, P., Dai, X., Yang, X. P. e Carretero, O. A. (2014). A N-acetil-seril-aspartil-lisil-prolina reduz a reticulação do colagénio cardíaco e a inflamação em ratos hipertensos induzidos pela angiotensina II. Ciências clínicas, 126(1), 85-
- Peng, H., Xu, J., Yang, X. P., Kassem, K. M., Rhaleb, I. A., Peterson, E. e Rhaleb, N. E. (2019). O tratamento com N-acetil-seril-aspartil-lisil-prolina protege o coração de danos excessivos no miocárdio e insuficiência cardíaca em camundongos. Canadian Journal of Physiology and Pharmacology, 97(8), 753-765. https://doi.org/10.1139/cjpp-2019-0047 https://pubmed.ncbi.nlm.nih.gov/30998852/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Perego, C., Perego, L., Mancini, M., Leopizzi, M., Corradi, B., Perlini, S., Zerbini, G. e Stella, A. (2009). Prevenção da fibrose miocárdica por N-acetil-seril-aspartil-lisil-prolina em ratos diabéticos. Ciências clínicas, 118(3), 211-220. https:// doi.org/10.1042/cs20090234 https://pubmed.ncbi.nlm.nih.gov/20310083/
- Sharma, U. C., Sonkawade, S. D., Baird, A., Chen, M., Xu, S., Sexton, S., Singh, A. K., Groman, A., Turowski, S. G., Spernyak, J. A., Mahajan, S. D. e Pokharel, S. (2018). Efeitos de um novo peptídeo Ac-SDKP no dano endotelial coronário induzido por radiação e no fluxo sanguíneo do miocárdio em repouso. Cardio-Oncologia, 4, 8. https://doi.org/10.1186/s40959-018-0034-1 https:// pubmed.ncbi.nlm.nih.gov/31057947/
- Suhail, H., Peng, H., Matrougui, K. e Rhaleb, N. E. (2024). Ac-SDKP atenua a produção de colágeno estimulada por estresse de ER em fibroblastos cardíacos por meio da inibição mediada por CHOP da expressão de NF-κB. Frontiers in Pharmacology, 15, 1352222. https://doi.org/10.3389/fphar.2024.1352222 https://pubmed.ncbi.nlm.nih.gov/38495093/
- Zhu, L., Yang, X. P., Janic, B., Rhaleb, N. E., Harding, P., Nakagawa, P., Peterson, E. L. e Carretero, O. A. (2016). Ac-SDKP inibe a expressão de ICAM-1 induzida por TNF-α em células endoteliais através da inibição da quinase IκB e da ativação de NF-κB. American Journal of Physiology-Heart and Circulatory Physiology, 310(9), H1176-H1183. https://doi.org/10.1152/ajpheart.00252.2015 https://pubmed.ncbi.nlm.nih.gov/26945075/
- Lin, C. X., Rhaleb, N. E., Yang, X. P., Liao, T. D., D'Ambrosio, M. A. e Carretero, O. A. (2008). Prevenção da fibrose aórtica pela N-acetil-seril-aspartil-lisil-prolina na hipertensão induzida pela angiotensina II. American Journal of Physiology-Heart and Circulatory Physiology, 295(3), H1253-H1261. https://doi.org/10.1152/ajpheart.00481.2008 https://pubmed.ncbi.nlm.nih.gov/18641275/
- Sharma, U. C., Sonkawade, S. D., Spernyak, J. A., Sexton, S., Nguyen, J., Dahal, S., Attwood, K. M., Singh, A. K., van Berlo, J. H. e Pokharel, S. (2018). O pequeno peptídeo Ac-SDKP inibe
cardiomiopatia induzida por radiação. Circulation: Insuficiência Cardíaca, 11(8), e004867. https://doi.org/ 10.1161/CIRCHEARTFAILURE.117.004867 https://pubmed.ncbi.nlm.nih.gov/30354563/
- Conte, E., Iemmolo, M., Fruciano, M., Fagone, E., Gili, E., Genovese, T., Esposito, E., Cuzzocrea, S. e Vancheri, C. (2015). Efeitos da timosina β4 e seu fragmento N-terminal Ac-SDKP em fibroblastos pulmonares humanos tratados com TGF-β e em um modelo de camundongo de fibrose pulmonar induzida por bleomicina. Parecer de peritos em terapia biológica, 15(Suppl 1), S211-S221. https://doi.org/ 10.1517/14712598.2015.1026804 https://pubmed.ncbi.nlm.nih.gov/26098610/
- Liu, S., Jin, R., Zheng, G., Wang, Y., Li, Q., Jin, F., Li, Y., Li, T., Mao, N., Wei, Z., Li, G., Fan, Y.,
Xu, H., Li, S. e Yang, F. (2023). Ac-SDKP promove a inibição de β-catenina mediada por KIF3A por meio de um mecanismo ciliar para limitar a transformação epitelial-miofibroblástica induzida por sílica. Biomedicina e Farmacoterapia, 166, 115411. https://doi.org/10.1016/j.biopha.2023.115411 https://pubmed.ncbi.nlm.nih.gov/37651800/
- Cai, J., Chen, Q., Mehrabi Nasab, E. e Athari, S. S. (2022). Efeitos imunomoduladores da N-acetil-seril-aspartil-prolina e do peptídeo intestinal vasoativo na fisiopatologia da doença pulmonar obstrutiva crônica. Fundamental & Clinical Pharmacology, 36(6), 1005-1010. https:// doi.org/10.1111/fcp.12811 https://pubmed.ncbi.nlm.nih.gov/35763864/
- Wang, J., Qian, Y., Gao, X., Mao, N., Geng, Y., Lin, G., Zhang, G., Li, H., Yang, F. e Xu, H. (2020). Síntese e identificação de um novo peptídeo de prolina Ac-SDK (biotina) que pode induzir efeitos anti-fibróticos em ratos que sofrem de silicose. Conceção, desenvolvimento e terapia de medicamentos, 14, 4315–4326. https://doi.org/10.2147/DDDT.S262716 https://pubmed.ncbi.nlm.nih.gov/33116418/
- Conte, E., Fagone, E., Gili, E., Fruciano, M., Iemmolo, M., Pistorio, M. P., Impellizzeri, D., Cordaro, M., Cuzzocrea, S., & Vancheri, C. (2016). Efeitos preventivos e terapêuticos do fragmento N-terminal da timosina β4 Ac-SDKP em um modelo de fibrose pulmonar induzida por bleomicina. Oncotarget, 7(23), 33841-33854. https://doi.org/10.18632/oncotarget.8409 https:// pubmed.ncbi.nlm.nih.gov/27029074/
- Cao, W., Yao, S. S., Gong, H. B., Zhu, L. Y., Miao, Z. Y. e Deng, H. J. (2022). Efeito regulador do Ac-SDKP na via da proteína de choque térmico fosforilada 27 / SNAI1 em ratos com silicose. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 40(2), 90-96. https://doi.org/10.3760/ cma.j.cn121094-20201218-00702 https://pubmed.ncbi.nlm.nih.gov/35255573/
- Gong, H. B., Zhang, C. M., Tang, X. Y., Gong, R. B., Miao, Z. Y. e Deng, H. J. (2023). Meta-análise da inibição da fibrose pulmonar por Ac-SDKP em modelos animais. Zhonghua Lao Dong Wei Sheng Zhi Sim Bing Para Zhi, 41 (4), 262-270. https://doi.org/10.3760/ cma.j.cn121094-20211115-00565 https://pubmed.ncbi.nlm.nih.gov/37248179/
- Li, Q., Yang, F., Zhang, L.-J., Yan, J.-B., Chen, P., Li, D.-D. e Wu, K.-F. (2009). [Efeito anti-fibrótico da N-acetil-seril-aspartil-lisil-prolina através da regulação da expressão do fator de crescimento transformador beta e do fator de crescimento do tecido conjuntivo em ratos com silicose]. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 27(7), 390-394 PMID: 20039536 https:// pubmed.ncbi.nlm.nih.gov/20039536/
28.Yan, J.-B., Zhang, L.-J. e Li, Q. (2008). [Efeito antifibrótico da N-acetil-seril-aspartil-lisil-prolina nos pulmões de ratos com silicose]. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 26(7), 401-405. PMID: 19080377 https://pubmed.ncbi.nlm.nih.gov/19080377/
- Jin, F., Geng, F., Xu, D., Li, Y., Li, T., Yang, X., Liu, S., Zhang, H., Wei, Z., Li, S., Gao, X., Cai, W.,
Mao, N., Yi, X., Liu, H., Sun, Y., Yang, F. e Xu, H. (2021). Ac-SDKP atenua a ativação de macrófagos pulmonares e osteoclastos ósseos em ratos expostos à sílica, inibindo as vias de sinalização TLR4 e RANKL. Journal of Inflammation Research, 14, 1647-1660. https://doi.org/10.2147/ JIR.S306883 https://pubmed.ncbi.nlm.nih.gov/33948088/
- Xu, H., Yang, F., Sun, Y., Yuan, Y., Cheng, H., Wei, Z., Li, S., Cheng, T., Brann, D. e Wang, R. (2012). Um novo alvo anti-fibrótico de Ac-SDKP: inibição da diferenciação de miofibroblastos em pulmões de ratos com silicose. PLoS Um, 7(7), e40301. https://doi.org/10.1371/journal.pone.0040301 https:// pubmed.ncbi.nlm.nih.gov/22802960/
- Wang, X., Liu, Y., Xu, H., Zhang, X., Li, S., Xu, D., Gao, X., Zhang, L., Zhang, B., Wei, Z., Wang, R., Brann, D. e Yang, F. (2016). A α-tubulina acetilada regulada pela N-acetil-seril-aspartil-lisil-prolina (Ac-SDKP) exerce efeitos antifibróticos na fibrose pulmonar de ratos induzida por sílica. Scientific Reports, 6, 32257. https://doi.org/10.1038/srep32257 https://pubmed.ncbi.nlm.nih.gov/27577858/
- Deng, H., Xu, H., Zhang, X., Sun, Y., Wang, R., Brann, D. e Yang, F. (2016). Efeitos protetores do Ac-SDKP nas células epiteliais foliculares via inibição da EMT mediada pela via TGF-β1 / ROCK1 na silicose em ratos. Toxicologia e farmacologia aplicada, 294, 1-10. https://doi.org/10.1016/ j.taap.2016.01.010 https://pubmed.ncbi.nlm.nih.gov/26785300/
- Zhang, L., Xu, D., Li, Q., Yang, Y., Xu, H., Wei, Z., Wang, R., Zhang, W., Liu, Y., Geng, Y., Li, S., Gao, X. e Yang, F. (2018). A N-acetil-seril-aspartil-lisil-prolina (Ac-SDKP) alivia a fibrose silicótica inibindo a apoptose das células epiteliais alveolares do tipo II através da mediação do estresse do retículo endoplasmático. Toxicologia e farmacologia aplicada, 350, 1-10. https://doi.org/10.1016/ j.taap.2018.04.025 https://pubmed.ncbi.nlm.nih.gov/29684394/
- Nakagawa, P., Masjoan-Juncos, J. X., Basha, H., Janic, B., Worou, M. E., Liao, T. D., Romero, C. A., Peterson, E. L. e Carretero, O. A. (2017). Efeitos da N-acetil-seril-aspartil-lisil-prolina na pressão arterial, dano renal e mortalidade no lúpus eritematoso sistémico. Relatórios Fisiológicos, 5(2), e13084. https://doi.org/10.14814/phy2.13084 https://pubmed.ncbi.nlm.nih.gov/ 28126732/
- Worou, M. E., Liao, T. D., D'Ambrosio, M., Nakagawa, P., Janic, B., Peterson, E. L., Rhaleb, N. E. e Carretero, O. A. (2015). Efeitos protetores da N-acetil-seril-aspartil-lisil-prolina no rim em ratos sensíveis ao sal de Dahl. Hipertensão, 66(4), 816-822. https://doi.org/10.1161/ HYPERTENSIONAHA.115.05970 https://pubmed.ncbi.nlm.nih.gov/26324505/
- Liao, T. D., Nakagawa, P., Janic, B., D'Ambrosio, M., Worou, M. E., Peterson, E. L., Rhaleb, N. E., Yang, X. P. e Carretero, O. A. (2015). N-Acetil-Seril-Aspartil-Lisil-Prolina: mecanismos de proteção renal em um modelo de rato de lúpus eritematoso sistêmico. Jornal Americano de Fisiologia - Fisiologia renal, 308 (10), F1146-F1154. https://doi.org/10.1152/ajprenal.00039.2015 https://pubmed.ncbi.nlm.nih.gov/25740596/
37.Rhaleb, N. E., Pokharel, S., Sharma, U. e Carretero, O. A. (2011). Efeitos protetores renais de N-acetil-Ser-Asp-Lys-Pro em ratos hipertensos induzidos por sal de acetato de desoxicorticosterona. Jornal de Hipertensão, 29(2), 330-338. https://doi.org/10.1097/HJH.0b013e32834103ee https:// pubmed.ncbi.nlm.nih.gov/21052020/
- Shibuya, K., Kanasaki, K., Isono, M., Sato, H., Omata, M., Sugimoto, T., Araki, S., Isshiki, K., Kashiwagi, A., Haneda, M. e Koya, D. (2005). A N-acetil-seril-aspartil-lisil-prolina previne a insuficiência renal e a proliferação da matriz mesangial em ratinhos db/db com diabetes. Diabetes, 54(3), 838-845. https://doi.org/10.2337/diabetes.54.3.838 https://pubmed.ncbi.nlm.nih.gov/15734863/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Preziuso, C., Leopizzi, M., Maestroni, S., Corradi, B., Zerbini, G. e Stella, A. (2013). Efeitos antifibróticos da N-acetil-seril-aspartil-lisil-prolina no rim em ratos diabéticos. American Journal of Nephrology, 37(1), 65-73. https://doi.org/10.1159/000346116 https://pubmed.ncbi.nlm.nih.gov/23327833/
- Zhang, R., Hu, Z., Wang, Y., Qiu, R., Wang, G., Wang, L. e Hu, B. (2022). O hidrogel biomimético de rede dupla alivia a fibrose renal e promove a regeneração renal. Jornal de Química dos materiais B, 10 (45), 9424-9437. https://doi.org/10.1039/d2tb01939f https:// pubmed.ncbi.nlm.nih.gov/36378134/
- Zuo, Y., Chun, B., Potthoff, S. A., Kazi, N., Brolin, T. J., Orhan, D., Yang, H.-C., Ma, L.-J., Kon, V., Myöhänen, T., Rhaleb, N.-E., Carretero, O. A. e Fogo, A. B. (2013). A timosina β4 e seu produto de degradação, Ac-SDKP, são novos agentes de reparo na fibrose renal. Kidney International, 84(6), 1166-1175. https://doi.org/10.1038/ki.2013.209 https://pubmed.ncbi.nlm.nih.gov/23739235/
- Wang, M., Liu, R., Jia, X., Mu, S. e Xie, R. (2010). N-acetil-seril-aspartil-lisil-prolina atenua a inflamação renal e a fibrose tubulointersticial em ratos. Revista Internacional de Medicina Molecular Medicina, 26 (6), 795-801. https://doi.org/10.3892/ijmm_00000527 https:// pubmed.ncbi.nlm.nih.gov/21042772/
- Liao, T.-D., Yang, X.-P., D'Ambrosio, M., Zhang, Y., Rhaleb, N.-E. e Carretero, O. A. (2010). A N-acetil-seril-aspartil-lisil-prolina atenua a lesão e a disfunção renal em ratos hipertensos com massa renal reduzida: Hypertension Research Council. Hipertensão, 55(2), 459-467. https://doi.org/10.1161/HYPERTENSIONAHA.109.144568 https://pubmed.ncbi.nlm.nih.gov/ 20026760/
- Peng, H., Carretero, O. A., Raij, L., Yang, F., Kapke, A. e Rhaleb, N. E. (2001). Antifibrotic effects of N-acetyl-seryl-aspartyl-lysyl-proline on heart and kidney in aldosterone-salt-induced hypertensive rats. Hipertensão, 37(2 Pt 2), 794-800. https://doi.org/10.1161/01.hyp.37.2.794 https:// pubmed.ncbi.nlm.nih.gov/11230375/
- Omata, M., Taniguchi, H., Koya, D., Kanasaki, K., Sho, R., Kato, Y., Kojima, R., Haneda, M. e Inomata, N. (2006). A N-acetil-seril-aspartil-lisil-prolina atenua a progressão da disfunção renal e da fibrose em ratos WKY com glomerulonefrite estabelecida. Jornal da Sociedade Americana de Nefrologia, 17(3), 674-685. https://doi.org/10.1681/ ASN.2005040385 https://pubmed.ncbi.nlm.nih.gov/16452498/
- Nagai, T., Kanasaki, M., Srivastava, S. P., Nakamura, Y., Ishigaki, Y., Kitada, M., Shi, S., Kanasaki, K. e Koya, D. (2014). N-acetil-seril-aspartil-lisil-prolina inibe relacionado ao diabetes
fibrose renal relacionada com a diabetes e transição endotelial-mesenquimal. BioMed Research International, 2014, 696475. https://doi.org/10.1155/2014/696475 https://pubmed.ncbi.nlm.nih.gov/24783220/
- Srivastava, S. P., Goodwin, J. E., Kanasaki, K. e Koya, D. (2020). A reprogramação metabólica com N-acetil-seril-aspartil-lisil-prolina protege contra a doença renal diabética. Jornal Britânico de Farmacologia, 177 (16), 3691-3711. https://doi.org/10.1111/bph.15087 https:// pubmed.ncbi.nlm.nih.gov/32352559/
- Carde, P., Chastang, C., Goncalves, E., Mathieu-Tubiana, N., Vuillemin, E., Delwail, V., Corbion, O., Vekhoff, A., Isnard, F., Ferrero, J. M., et al. (1992). [Seraspenid (acetylSDKP): A phase I-II clinical trial of a haematopoietic inhibitor protecting against the toxicity of aracycline and ifosfamide monochemotherapy]. Estudo clínico C R Acad Sci III, 315(13), 545-550 PMID: 1300237 https:// pubmed.ncbi.nlm.nih.gov/1300237/
- Cappelaere, P., Hecquet, B., Rolland, F., Meeus, L., Domenge, C., Krakowski, I., De Gislain, C., Chauvergne, J., Dufour-Esquerré, F., Carde, P. (1995). [Estudo aleatório placebo de proteção da medula óssea com goralatide em doentes com carcinoma de células escamosas do trato respiratório superior e do trato gastrointestinal ou esófago tratados com uma combinação de carboplatina e fluorouracil]. Bula Cancro, 82(9), 732-737. PMID: 8535033 https://pubmed.ncbi.nlm.nih.gov/8535033/
- Nitta, K., Shi, S., Nagai, T., Kanasaki, M., Kitada, M., Srivastava, S. P., Haneda, M., Kanasaki, K. e Koya, D. (2016). A administração oral de N-acetil-seril-aspartil-lisil-prolina melhora a doença renal em ratos com diabetes tipo 1 e tipo 2 através de um regime terapêutico. Investigação BioMed Internacional, 2016 , 9172157 . https://doi.org/10.1155/2016/9172157 https:// pubmed.ncbi.nlm.nih.gov/27088094/
- Tan, H., Zhao, J., Wang, S., Zhang, L., Wang, H., Huang, B., Liang, Y., Yu, X. e Yang, N. (2012). Ac-SDKP atenua a progressão da nefrite lúpica em camundongos MRL / lpr. International Immunopharmacology, 14(4), 401–409. https://doi.org/10.1016/j.intimp.2012.07.023https:// pubmed.ncbi.nlm.nih.gov/22922317/
- Maheshwari, M., Romero, C. A., Monu, S. R., Kumar, N., Liao, T. D., Peterson, E. L. e Carretero,
O. A. (2018). Efeitos protetores renais da N-acetil-seril-aspartil-lisil-prolina (Ac-SDKP) em ratos obesos com uma dieta rica em sal. Jornal Americano de Hipertensão, 31(8), 902-909. https://doi.org/ 10.1093/ajh/hpy052 https://pubmed.ncbi.nlm.nih.gov/29722788/
- Kamarehei, M., & Zahednasab, H. (2025). Efeitos neuroprotectores do péptido Ac-SDKP em células SH-SY5Y e num modelo de rato da doença de Parkinson contra o stress oxidativo induzido por 6-OHDA e o stress do ER. Neuropeptídeos, 112, 102534. https://doi.org/10.1016/j.npep.2025.102534 https:// pubmed.ncbi.nlm.nih.gov/40544680/
- Hashemizadeh, S., Pourkhodadad, S., Hosseindoost, S., Pejman, S., Kamarehei, M., Badripour, A., Omidi, A., Pestehei, S. K., Seifalian, A. M. e Hadjighassem, M. (2022). O peptídeo Ac-SDKP melhora a recuperação funcional após lesão da medula espinhal em um modelo pré-clínico. Neuropeptídeos, 92, 102228. https://doi.org/10.1016/j.npep.2022.102228 https://pubmed.ncbi.nlm.nih.gov/ 35101843/
- Zhang, Y., Zhang, Z. G., Chopp, M., Meng, Y., Zhang, L., Mahmood, A. e Xiong, Y. (2017). Tratamento de lesão cerebral traumática em ratos com N-acetil-seril-aspartil-lisil-prolina. Jornal de
Neurocirurgia, 126(3), 782-795. https://doi.org/10.3171/2016.3.JNS152699 http:// pubmed.ncbi.nlm.nih.gov/28245754/
- Pejman, S., Kamarehei, M., Riazi, G., Pooyan, S. e Balalaie, S. (2020). Ac-SDKP atenua a progressão da encefalomielite autoimune experimental, inibindo o ER e o estresse oxidativo no hipocampo de camundongos C57BL / 6. Boletim de Investigação do Cérebro, 154, 21–31. https://doi.org/10.1016/j.brainresbull.2019.09.014 https://pubmed.ncbi.nlm.nih.gov/31589901/
- Zhang, L., Chopp, M., Teng, H., Ding, G., Jiang, Q., Yang, X. P., Rhaleb, N. E. e Zhang, Z. G. (2014). O tratamento combinado de N-acetil-seril-aspartil-lisil-prolina e ativador de plasminogênio tecidual fornece neuroproteção potente em ratos após acidente vascular cerebral. Acidente vascular cerebral, 45(4), 1108-1114. https:// doi.org/10.1161/STROKEAHA.113.004399 https://pubmed.ncbi.nlm.nih.gov/24549864/
- Kim, D. H., Moon, E.-Y., Yi, J. H., Lee, H. E., Park, S. J., Ryu, Y.-K., Kim, H.-C., Lee, S. e Ryu, J.
H. (2015). O fragmento do peptídeo da timosina β4 aumenta a neurogénese no hipocampo e facilita a memória espacial. Neurociência, 310, 51-62. https://doi.org/10.1016/j.neuroscience.2015.09.017 https://pubmed.ncbi.nlm.nih.gov/26363149/
- Wei, A., Zhao, F., Hao, A., Liu, B. e Liu, Z. (2022). N-acetil-seril-aspartil-lisil-prolina (AcSDKP) atenua a fibrose hepática através do eixo WTAP / m6A / Ptch1 através da via Hedgehog. Gene, 813, 146125. https://doi.org/10.1016/j.gene.2021.146125 https://pubmed.ncbi.nlm.nih.gov/34921949/
- Zhang, L., Xu, L. M., Chen, Y. W., Ni, Q. W., Zhou, M., Qu, C. Y. e Zhang, Y. (2012). Efeito antifibrótico da N-acetil-seril-aspartil-lisil-prolina na fibrose hepática induzida por ligadura biliar em ratos. Jornal Mundial de Gastroenterologia, 18(37), 5283-5288. https://doi.org/10.3748/wjg.v18.i37.5283 https://pubmed.ncbi.nlm.nih.gov/23066324/
- Chen, Y. W., Liu, B. W., Zhang, Y. J., Chen, Y. W., Dong, G. F., Ding, X. D., Xu, L. M., Pat, B.,
Fan, J. G. e Li, D. G. (2010). A preservação dos níveis basais de AcSDKP atenua a fibrose hepática induzida pelo tetracloreto de carbono em ratos. Jornal de Hepatologia, 53(3), 528-536. https://doi.org/10.1016/ j.jhep.2010.03.027 https://pubmed.ncbi.nlm.nih.gov/20646773/
- Ameri, Z., Shahabi, A., Farsinejad, A., Sattarzadeh Bardsiri, M., Javedani, H., Bagher, Z., Saraee, A. e Brouki Milan, P. (2025). Hidrogel adesivo à base de celulose contendo o péptido N-acetil-seril-aspartil-lisil-prolina para acelerar a cicatrização de feridas e evitar cicatrizes num modelo in vivo de cicatriz da orelha de coelho. International Journal of Biological Macromolecules, 322(Pt 1), 144981. https:// doi.org/10.1016/j.ijbiomac.2025.144981 https://pubmed.ncbi.nlm.nih.gov/40480579/
- Fromes, Y., Liu, J. M., Kovacevic, M., Bignon, J. e Wdzieczak-Bakala, J. (2006). Acetyl-serine-asparaginyl-lysine-proline tetrapeptide improves skin flap survival and accelerates wound healing. Reparação de feridas e Regeneração, 14 (3), 306-312. https://doi.org/10.1111/ j.1743-6109.2006.00125.x https://pubmed.ncbi.nlm.nih.gov/16808809/
- Massé, A., Ramirez, L. H., Bindoula, G., Grillon, C., Wdzieczak-Bakala, J., Raddassi, K., Deschamps de Paillette, E., Mencia-Huerta, J. M., Koscielny, S., Potier, P., Sainteny, F. e Carde,
P. (1998). O tetrapeptídeo acetil-N-Ser-Asp-Lys-Pro (Goralatide) protege contra a toxicidade induzida pela doxorrubicina: melhoria da sobrevivência dos ratos e proteção das células estaminais e progenitoras da medula óssea. Sangue, 91(2), 441-449. PMID: 9427696 https://pubmed.ncbi.nlm.nih.gov/9427696/
65.Ramasamy, V., Ntsekhe, M. e Sturrock, E. (2021). Investigando o potencial anti-fibrótico de peptídeos com uma sequência de N-acetil-seril-aspartil-lisil-prolina. Farmacologia e Fisiologia Clínica e Experimental, 48(11), 1558-1565. https://doi.org/10.1111/1440-1681.13565 https:// pubmed.ncbi.nlm.nih.gov/34347311/
- Leeanansaksiri, W., DeSimone, S. K., Huff, T., Hannappel, E. e Huff, T. F. (2004). Thymosin beta
4 e o seu tetrapeptídeo N-terminal, AcSDKP, inibem a proliferação e induzem núcleos displásicos, não apoptóticos e a desgranulação dos mastócitos. Química e Biodiversidade, 1(7), 1091–1100. https://doi.org/10.1002/cbdv.200490081 https://pubmed.ncbi.nlm.nih.gov/17191900/