


Beschreibung der möglichen Wirkungen von Thymosin-Beta-Fragment 4 (1-4) (Ac-SDKP) auf der Grundlage der Literatur. (Dies ist keine Produktbeschreibung, Haftungsausschluss am Ende der Seite)
Ac-SDKP (N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin) ist ein sehr kleines Proteinfragment, das von einem anderen natürlichen Protein namens Thymosin β4 abgeleitet ist. Im Körper zerschneiden spezielle Enzyme Thymosin β4 in kleinere Stücke, und eines der Ergebnisse dieses Prozesses ist Ac-SDKP [1]. Dieses kleine Molekül ist wichtig, weil es dazu beiträgt, Organe vor Narbenbildung (Fibrose) zu schützen, die auftritt, wenn sich nach Verletzungen oder Krankheiten zu viel steifes Gewebe bildet. Das Problem ist, dass Ac-SDKP nicht sehr lange im Körper verbleibt
- wird durch ein Enzym namens ACE (Angiotensin-konvertierendes Enzym) schnell abgebaut. Interessanterweise können ACE-blockierende Medikamente (wie z. B. einige Bluthochdruckmedikamente) den Ac-SDKP-Spiegel um das bis zu Fünffache erhöhen und damit seine Schutzwirkung verstärken [1].
Ursprünglich dachten die Wissenschaftler, dass die Hauptaufgabe von Ac-SDKP darin besteht, Blutstammzellen daran zu hindern, zu schnell zu wachsen. Neuere Studien zeigen jedoch, dass die größere Rolle von Ac-SDKP in der Heilung und im Schutz von Gewebe liegt. Es hilft, die übermäßige Vermehrung von Narbengewebe in Organen wie Herz, Lunge, Leber und Nieren zu verhindern. So reduziert es beispielsweise die Aktivität bestimmter Signale, die die Zellen veranlassen, zu viel Kollagen (das Hauptprotein von Narben) zu produzieren, und verhindert, dass sich Reparaturzellen (Fibroblasten) in narbenbildende Zellen verwandeln. Im Falle von Nierenerkrankungen ist Ac-SDKP sehr vielversprechend. Es hilft nicht nur den Nieren, besser zu funktionieren, sondern reduziert auch die Narbenbildung, indem es den Zugang zu vielen Immunzellen blockiert und die schädlichen Prozesse, die normalerweise die Schäden verschlimmern, abschwächt. Kurz gesagt, Ac-
SDKP wirkt im Körper als natürliches "Anti-Narben"- und "gewebeschützendes" Molekül. Es fördert die Heilung, reduziert Entzündungen und kann bei der Behandlung von Krankheiten nützlich sein, bei denen Narbenbildung und Gewebeschäden eine wichtige Rolle spielen.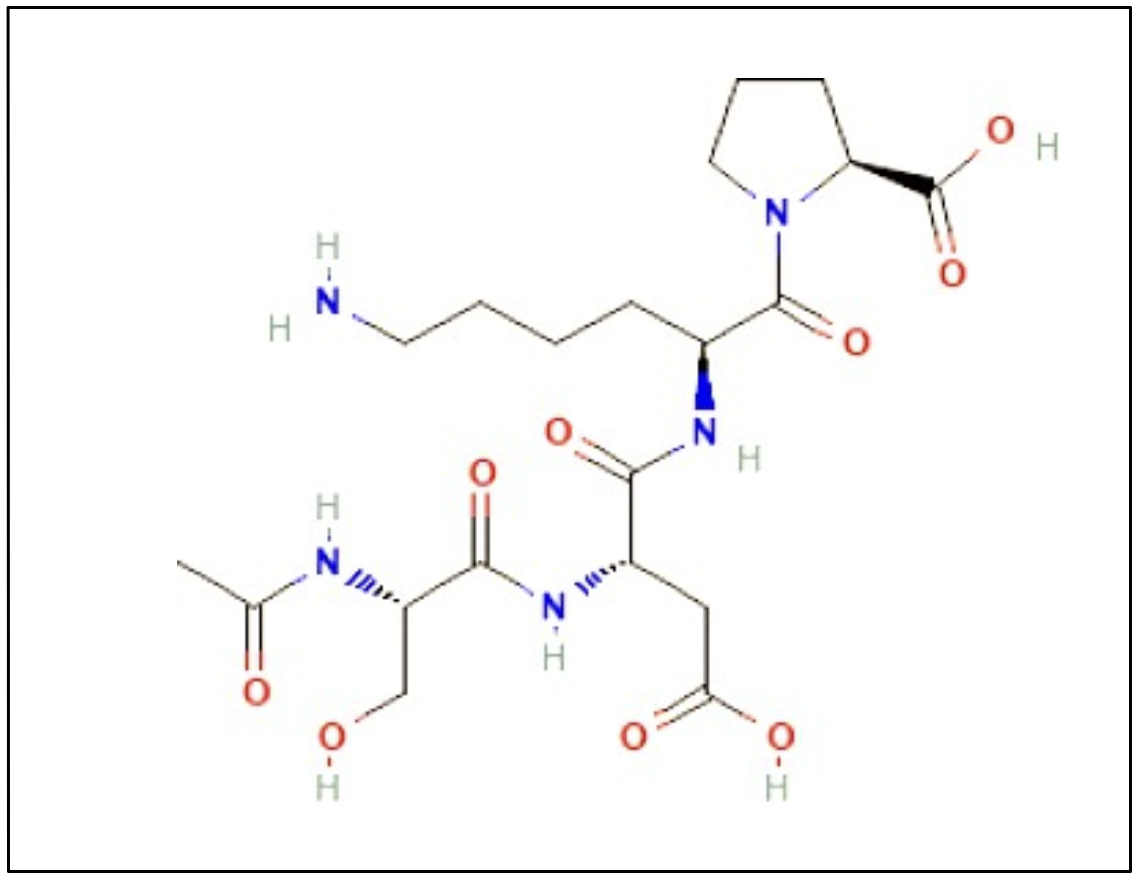
Ac-SDKP schützt das Herz (basierend auf Tierstudien)
In mehreren wissenschaftlichen Studien wurde das Potenzial von Ac-SDKP für die Herzgesundheit sowohl bei akuten als auch bei langfristigen Problemen beschrieben. In einem Mausmodell für Herzinfarkt verabreichten Nakagawa et al. Ac-SDKP in einer Dosis von 1,6 mg/kg/Tag über eine kleine subkutane Pumpe und stellten eindeutige Vorteile fest: Die Risse in der Herzwand (Herzrisse) gingen von 51,0% auf 27,3% zurück, und die Sterblichkeitsrate sank von 56,9% auf 31,8%. Das Peptid scheint zu wirken, indem es die "Ersthelfer"-Immunzellen beruhigt, die den Schaden verschlimmern können (M1-Makrophagen), während es die hilfreichen Reparaturmakrophagen (M2) oder Neutrophilen nicht verändert. Es verlangsamte auch die Wirkung eines Enzyms (MMP-9), das Herzgewebe nach einem Infarkt abbaut, während ein anderer Marker (MPO) unverändert blieb, was auf eine gezielte, beabsichtigte Wirkung schließen lässt [2]. Bei der durch lang anhaltenden Bluthochdruck verursachten Vernarbung des Herzens konnten Peng et al. zeigen, dass Ac-SDKP vorhandenes Narbengewebe reduzieren und nicht nur verhindern kann. Bei Ratten mit einem etablierten Bluthochdruckmodell verringerte die tägliche Verabreichung von Ac-SDKP in einer Dosis von 400-800 µg/kg (subkutan) über einen Zeitraum von 8 Wochen dosisabhängig (die höhere Dosis war wirksamer) die Kollagenmenge im Herzen - das wichtigste Zeichen der Narbenbildung. Der Blutdruck als solcher sank nicht, und die normalen Reaktionen auf Angiotensin I und Bradykinin blieben unbeeinflusst, so dass der Nutzen nicht allein auf eine Senkung des Blutdrucks zurückzuführen ist. Die Blutspiegel von Ac-SDKP stiegen um das 2-5-fache an, und wichtige "narbentreibende" Signale im Herzen (TGF-β und CTGF) wurden reduziert, was eine direkte Anti-Narbentreibungswirkung bestätigt [3].
Nach einem Myokardinfarkt können anhaltende Schwellungen und Narbenbildung zu Herzversagen führen. Yang et al. testeten Ac-SDKP sowohl zu einem frühen Zeitpunkt (um Schäden zu verhindern) als auch zu einem späteren Zeitpunkt (um Schäden rückgängig zu machen). In beiden Fällen sank der Gesamtkollagengehalt des Herzens (z. B. von ~24 auf ~15 µg/mg in der Präventionsgruppe und von ~23 auf
~14 µg/mg in der Umkehrgruppe). Die schädliche Anhäufung von Immunzellen wurde ebenfalls reduziert: Makrophagen nahmen in jeder Gruppe um etwa ein Drittel ab, und TGF-β-positive Zellen gingen parallel dazu zurück. Diese Vorteile wurden erreicht, ohne den Blutdruck zu senken oder die Größe des Herzens zu verringern, und die Pumpleistung wurde in der Prophylaxe-Gruppe nicht merklich verbessert. Dennoch deutet der stetige Rückgang von Narbenbildung und Entzündung auf eine Verbesserung der Herzstruktur im Laufe der Zeit hin [4].
Ac-SDKP könnte auch einige der "zusätzlichen" Gewebevorteile erklären, die bei ACE-hemmenden Medikamenten beobachtet werden. Rasoul et al. verglichen ein Modell der Angiotensin-II-induzierten Hypertonie mit Gruppen, die Captopril oder Ac-SDKP (400-800 µg/kg/Tag) erhielten. Dadurch wurden die Blutspiegel um ein Vielfaches erhöht und viele der schützenden Eigenschaften, die denen von ACE-Hemmern ähneln, reproduziert: weniger Zellhypertrophie im Herzen, weniger Makrophagen und Mastzellen, geringere TGF-β- und CTGF-Spiegel und weniger Kollagenakkumulation. Wichtig ist, dass diese Vorteile eintraten, ohne den Blutdruck zu senken oder die Herzverdickung zu verringern, was auf eine
direkte schützende Wirkung auf das Herzgewebe [5]. Ac-SDKP verlangsamt die Narbenbildung im Herzen auf zellulärer Ebene. In kultivierten Ratten-Herzunterstützungszellen (Fibroblasten) testeten Rhaleb et al. im Labor sehr niedrige Ac-SDKP-Dosen (0,05-100 nmol/l) und stellten zwei Schlüsseleffekte fest: eine Verringerung des Zellwachstums (DNA-Kopieren) auf ein normales Niveau bei etwa 1 nmol/l und eine Verringerung des Kollagens (das wichtigste "Narben"-Protein), das als Reaktion auf Endothelin-1, ein starkes Narbensignal, produziert wird. Niedrigere Dosen wirkten am besten auf das Kollagen; sehr hohe Dosen waren weniger wirksam. Das Peptid schien einen gemeinsamen zellulären Signalschalter (p44/42 MAPK/ERK) zum Schweigen zu bringen, und ein bekannter MAPK-Blocker bot denselben Nutzen. Vereinfacht ausgedrückt, befiehlt Ac-SDKP den Fibroblasten, sowohl die Proliferation als auch die übermäßige Narbenbildung zu verlangsamen, vermutlich durch die Verringerung der Aktivität eines wichtigen Wachstumsweges [6].
In einer Studie an erwachsenen Ratten verabreichten Liu et al. vier Wochen lang Galektin-3 (ein Protein, das Entzündungen und Narbenbildung hervorruft) und beobachteten mehr Entzündungszellen, dickere Herzwände, stärkere Narbenbildung um die Gefäße und zwischen den Zellen, höhere TGF-β/Smad3-Signale (ein Signalweg, der die Narbenbildung fördert) und eine schwächere Pumpleistung in der Echokardiographie. Die Zugabe von Ac-SDKP (800 µg/kg/Tag) verhinderte die meisten dieser Veränderungen: Entzündungszellen, Vernarbung und Verdickung der Herzwand nahmen ab, und die Herzfunktion verbesserte sich. Die Daten deuten darauf hin, dass Ac-SDKP das Herz schützt, indem es den TGF-β/Smad3-"Vernarbungsschalter" ausschaltet und die Entzündung mildert [7]. Darüber hinaus reduziert es die Narbenbildung am Herzen bei Langzeit-Hypertonie, ohne den Blutdruck selbst zu verändern. Rhaleb et al. verabreichten Ac-SDKP (400 µg/kg/Tag, subkutan) in einem klassischen Gefäßmodell (2 Nieren, 1 Klemme) bei Ratten. Obwohl der Blutdruck und die Herzhypertrophie erhöht blieben, reduzierte die Behandlung mit dem Peptid sowohl die entzündlichen als auch die proliferierenden Zellen im Herzmuskel erheblich. Vor allem aber normalisierte es die interstitielle Kollagenfraktion, indem es sie von etwa 10,1% bei den hypertensiven Ratten auf etwa 5,4% reduzierte, ein Wert, der fast identisch mit dem der Kontrolltiere ist (≈5,3%). Kurz gesagt, es verringerte die schädlichen Gewebeläsionen, selbst wenn die Druckbelastung unverändert blieb, was auf eine direkte Rolle bei der Gewebeheilung hindeutet [8]. Darüber hinaus fördert Ac-SDKP in Kombination mit Thymosin-β4 die Gewebereparatur nach einem Myokardinfarkt. In einer Übersichtsarbeit stellten Cavasin et al. fest, dass Thymosin-β4 sowohl die Zellmigration als auch das Überleben fördert. Sein Derivat, Ac-SDKP, bietet zusätzliche Vorteile, indem es bei Bluthochdruck als Antifibrotikum wirkt. In Herzinfarktmodellen konnte Ac-SDKP die Narbenbildung umkehren und Entzündungen reduzieren. Außerdem förderte es die Angiogenese, wie in In-vivo- und Ex-vivo-Studien gezeigt wurde. Darüber hinaus verringerte Ac-SDKP bei Mäusen das Risiko einer Ruptur der Herzwand, was sein therapeutisches Potenzial bei der kardiovaskulären Reparatur unterstreicht. Es gibt viele Überschneidungen bei den Vorteilen, was darauf hindeutet, dass Ac-SDKP einen Teil der therapeutischen Wirkung von Thymosin β4 trägt. Der Forscher erwähnte jedoch, dass Studien am Menschen noch erforderlich sind, um diese Laborergebnisse und Tierstudien zu bestätigen [9].
Darüber hinaus reduziert Ac-SDKP die Aktivität von gewebeabbauenden Enzymen, die durch IL-1β ausgelöst werden. In adulten Rattenherzfibroblasten zeigten Rhaleb et al., dass Interleukin-1β (IL-1β), ein pro-inflammatorisches Zytokin,
die Expression von Matrix-Metalloproteinasen (MMP-2, MMP-9 und MMP-13) deutlich erhöht. Diese Enzyme bauen Bestandteile der extrazellulären Matrix ab und tragen zu einer nachteiligen Umgestaltung bei. Ac-SDKP veränderte die Basalexpression von MMPs nicht. Es hemmte jedoch stark den IL-1β-induzierten Anstieg dieser Enzyme. Gleichzeitig erhöhte Ac-SDKP die Expression von Gewebsinhibitoren der Metalloproteinasen (TIMP-1 und TIMP-2), natürlichen Inhibitoren der MMP-Aktivität. Dies trug dazu bei, den Matrixumsatz wieder ins Gleichgewicht zu bringen. Ac-SDKP verringerte auch die Aktivierung von zwei wichtigen Signalwegen, die Entzündung und Proliferation antreiben: NF-κB und ERK/MAPK. Interessanterweise führte die IL-1β-Stimulation in diesem Modell nicht zu einer erhöhten Kollagenproduktion. Ac-SDKP hatte auch keine Auswirkungen auf die Kollagensynthese. Dies deutet darauf hin, dass seine schützende Wirkung auf eine selektive Umstrukturierung des Gewebes zurückzuführen ist und nicht auf eine allgemeine Veränderung der Kollagenproduktion. Zusammengenommen deuten diese Ergebnisse darauf hin, dass Ac-SDKP das Myokard vor pathologischem Umbau schützen kann, indem es die Matrixregulation wieder ins Gleichgewicht bringt [10].
Ac-SDKP schützt vor Autoimmunschäden am Herzen von Ratten. In einem Modell der T-Zell-induzierten Myokarditis behandelten Nakagawa et al. immunisierte Lewis-Ratten mit Ac-SDKP und beobachteten den Erhalt der Herzfunktion, sowohl der systolischen als auch der diastolischen. Die Behandlung verringerte auch die Vergrößerung des Herzens, reduzierte die Narbenbildung und bewahrte eine gesündere Myokardstruktur. Die histologische Analyse zeigte eine geringere Anzahl von infiltrierenden Immunzellen, einschließlich Makrophagen, dendritischen Zellen und T-Lymphozyten. Parallel dazu wurden die Konzentrationen wichtiger Entzündungsmediatoren wie Zytokine (IL-1α, TNF-α, IL-2, IL-17), Chemokine (CINC-1, IP-10), Adhäsionsmoleküle (ICAM-1, L-Selektin) und Matrixmetalloproteinasen deutlich reduziert. Interessanterweise veränderte Ac-SDKP weder die Konzentration myosinspezifischer Autoantikörper noch antigenspezifische T-Zell-Reaktionen. Dies deutet darauf hin, dass die kardioprotektive Wirkung von Ac-SDKP in erster Linie auf eine Verringerung der Rekrutierung von Immunzellen und die Hemmung von Entzündungsmediatoren zurückzuführen ist und nicht auf eine Veränderung der Autoantikörperproduktion oder der T-Zell-Aktivierung [11].
Ac-SDKP reduziert Entzündungen und die Bildung von Kollagenvernetzungen bei Angiotensin-II-induziertem Bluthochdruck. González et al. verabreichten Ratten drei Wochen lang Angiotensin II, und eine weitere Gruppe wurde mit Ac-SDKP behandelt. Der Blutdruck und die Herzhypertrophie blieben in beiden Gruppen erhöht, aber Ac-SDKP verhinderte den Anstieg des Gesamtkollagens und des vernetzten Kollagens. Diese schützende Wirkung war auf die Hemmung der Lysyloxidase (LOX) mRNA und des LOXL1-Proteins zurückzuführen, Enzyme, die für die Kollagenvernetzung und die Narbenversteifung verantwortlich sind. Darüber hinaus reduzierte Ac-SDKP die TGF-β-Expression, hemmte die NF-κB-Aktivierung und verringerte die Infiltration von CD4⁺- und CD8⁺-T-Lymphozyten und CD68⁺-Makrophagen in das Herzgewebe. Wichtig ist, dass der Zustrom von CD4⁺-T-Zellen mit der LOXL1-Expression korrelierte, was auf eine mechanistische Verbindung zwischen Immunzellenaktivität und Fibrose hindeutet. Diese Ergebnisse zeigen, dass Ac-SDKP unabhängig von seinen Auswirkungen auf den Blutdruck starke antifibrotische und entzündungshemmende Wirkungen entfaltet [12].
Darüber hinaus schützt es das Herz nach einem Myokardinfarkt bei Mäusen im Früh- und Spätstadium. Peng et al. verabreichten Ac-SDKP (1,6 mg/kg/Tag) an C57BL/6J-Mäuse nach einem Myokardinfarkt. In der ersten Woche reduzierte die Behandlung die Zahl der tödlichen Wandrisse, verringerte den ICAM-1-Spiegel, reduzierte den Makrophageneinstrom und die Gelatineverdauungsaktivität, hemmte p53 und verringerte den Herzmuskelzelltod; gleichzeitig nahm die Zahl der kleinen Blutgefäße am Rand der Verletzung zu, was auf ein besseres Wachstum neuer Gefäße schließen lässt. In der fünften Woche wiesen die Herzen weniger interstitielles Kollagen, eine intakte Struktur, niedrigere Werte für endoplasmatischen Retikulumstress (CHOP) und eine intakte SERCA2 (entscheidend für den Kalziumstoffwechsel) sowie eine insgesamt bessere Funktion auf. Kurz gesagt, es reduziert frühe Schäden und fördert eine gesündere langfristige Umstrukturierung [13].
In einer anderen Studie reduzierte Ac-SDKP die Vernarbung des Herzens und verbesserte die diastolische Funktion bei diabetischer Kardiomyopathie. Castoldi et al. induzierten bei Ratten Diabetes und begannen zwei Monate später mit Ac-SDKP (1 mg/kg/Tag mit Minipumpen) für acht Wochen. Die Ratten mit Diabetes entwickelten hohe Zuckerspiegel, eine ausgeprägte interstitielle und perivaskuläre Fibrose und höhere TGF-β1- und Phospho-Smad2/3-Spiegel im Herzen. Ac-SDKP reduzierte beide Arten von Fibrose und verringerte den TGF-β/Smad-Signalweg, auch bei Tieren, die den ACE-Hemmer Ramipril erhielten. Der Herzultraschall zeigte, dass der Diabetes die Systole und die Diastole beeinträchtigte; Insulin und Ramipril stellten beide Funktionen wieder her, während Ac-SDKP die Diastole (diastolische Funktion) teilweise verbesserte. Diese Daten unterstreichen den antifibrotischen Nutzen bei einer moderaten Verbesserung der Funktion in diesem Modell [14]. Darüber hinaus schützt es die Koronargefäße vor Strahlenschäden und bewahrt den Blutfluss. In einem Rattenmodell mit thorakaler Bestrahlung verabreichten Sharma et al. Ac-SDKP subkutan über 18 Wochen. Die Strahlung verringerte den Ruheblutfluss, tötete Endothelzellen ab, verstärkte die Koronarfibrose und zerstörte die Tight-Junction-Proteine (Claudin-1, JAM-2). Dadurch wurde der Blutfluss wieder normalisiert, die Endothelzellen blieben erhalten, die Fibrose ging zurück und die tight junctions wurden wiederhergestellt. Laborstudien zeigten, dass Ac-SDKP in Endothelzellen eindringt und die durch die Strahlung verursachten reaktiven Sauerstoffspezies reduziert; bei lebenden Tieren konzentrierte sich das markierte Peptid innerhalb von Stunden in den Endothelzellen. Diese Ergebnisse deuten auf einen Gefäßschutz, weniger oxidative Schäden und eine bessere mikrovaskuläre Integrität nach der Bestrahlung hin [15]. Darüber hinaus reduziert es die stressbedingte Narbenbildung in Herzstützzellen. Bei menschlichen Herzfibroblasten wurden die Zellen mit Ac-SDKP (10 nM) vorbehandelt und anschließend mit Tunicamycin (0,25 µg/ml) behandelt, das in der Zellfabrik (endoplasmatisches Retikulum) "Proteinstress" verursacht. Ac-SDKP half, die gestressten Zellen davon abzuhalten, zu viel Kollagen zu produzieren. Es wirkte, indem es die zelluläre Reaktion auf Stress beruhigte, die Aktivität eines Stressproteins namens CHOP verringerte und die Aktivität eines Entzündungsschalters namens NF-κB reduzierte. Es senkte auch die Werte von IL-6, dem Signal, das Entzündungen auslöst. Wenn CHOP genetisch reduziert wurde, verringerte es weiterhin die Aktivität von NF-κB und Typ-I-Kollagen sowohl auf der Protein- als auch auf der mRNA-Ebene, was den gleichen Weg bestätigt [16]. Einfach ausgedrückt: Unter Stressbedingungen hilft dies den Zellen, eine übermäßige Produktion von Narbenproteinen zu vermeiden.
Darüber hinaus reduziert es die durch TNF-α ausgelöste Entzündung der Gefäßwand. In menschlichen Koronararterien-Endothelzellen führte die TNF-α-Stimulation zu einem signifikanten Anstieg der Expression von ICAM-1. Dieses Adhäsionsmolekül spielt eine Schlüsselrolle bei der Förderung der Leukozytenadhäsion an der Blutgefäßoberfläche. Die Vorbehandlung mit Ac-SDKP reduzierte die ICAM-1-Konzentration signifikant und dosisabhängig. Eine mechanistische Analyse zeigte, dass diese Wirkung durch die Hemmung der IKK → IκB → NF-κB-Signalkaskade vermittelt wurde, die für die Aktivierung der entzündlichen Genexpression entscheidend ist. Interessanterweise blieben zwei andere Signalwege, p38 MAPK und ERK, unverändert, was darauf hinweist, dass Ac-SDKP selektiv mit dem NF-κB-Signalweg interagiert, um entzündungshemmende Wirkungen in Endothelzellen zu entfalten [17]. Ac-SDKP trägt dazu bei, die Gefäßauskleidung in Ruhe zu halten, und verringert ihre "Klebrigkeit" während der Entzündung. Darüber hinaus verhindert es die Vernarbung großer Arterien bei Angiotensin-II-induziertem Bluthochdruck, auch ohne den Druck selbst zu senken. Bei mit Angiotensin II behandelten Ratten verringerte Ac-SDKP die Kollagenakkumulation in der Aorta und reduzierte die Signale (mRNA von Typ-I- und Typ-III-Kollagen), die die Narbenbildung verursachen. Es reduzierte auch die Überaktivität der Proteinkinase C, oxidativen Stress, ICAM-1 und das Eindringen von Makrophagen in die Gefäßwand. Die Fibrosesignale nahmen ab (weniger TGF-β1- und Smad2-Aktivität), während der natürliche Inhibitor dieses Signalwegs (Smad7) zunahm. Der Blutdruck und die Aortendicke blieben hoch, so dass diese Vorteile für die Gefäßwand eher auf direkte Gewebeeffekte als auf Druckänderungen zurückzuführen waren [18].
Ac-SDKP schützt das Herz auch vor Strahlenschäden. Bei Ratten, die einer gezielten Thoraxbestrahlung ausgesetzt waren, bewahrte eine 18-wöchige Ac-SDKP-Gabe die Herzfunktion, verringerte die Anhäufung von extrazellulärer Matrix und die Fibrose, reduzierte den Makrophageneinstrom und verringerte den Herzzelltod. Auch der Spiegel und die Freisetzung von Mac-2 (Galectin-3), einem für die Fibrose verantwortlichen Makrophagenprotein, gingen zurück. Ac-SDKP wurde innerhalb der Makrophagen in der Nähe des Zellkerns beobachtet und verhinderte die durch die Strahlung ausgelöste Freisetzung von Mac-2; fehlte den Fibroblasten Mac-2, verursachte die Strahlung viel schwächere Signale der Narbenbildung [19]. Es trägt zur Aufrechterhaltung eines gesünderen Gefäß- und Herzgewebes nach der Bestrahlung bei, indem es Entzündungen und Narbenbildung verringert.
Ac-SDKP für die Lungengesundheit (basierend auf Tierversuchen)
Ac-SDKP zeigte in Lungenmodellen eine stärkere antifibrotische Wirkung als Thymosin-β4. Zunächst bremste es in Laborstudien mit Lungenzellen von Menschen mit idiopathischer Lungenfibrose (IPF) übermäßiges Zellwachstum und reduzierte zwei TGF-β-induzierte Fibrosesignale: α-SMA und Kollagen. Bei Mäusen, denen Bleomycin verabreicht wurde, um eine Lungenschädigung auszulösen, half Thymosin-β4 in einem frühen Stadium (Tag 7), indem es die Entzündung und die frühe Narbenbildung verringerte, aber die Fibrose in späteren Stadien (Tag 14-21) nicht stoppte. Diese Ergebnisse deuten darauf hin, dass Ac-SDKP die primären Stadien der Narbenbildung in den Zellen blockiert und möglicherweise eine stabilere und länger anhaltende antifibrotische Wirkung hat als sein Vorläufer, Thymosin-β4 [20]. Darüber hinaus hemmt es die Siliziumdioxid-assoziierte Lungenvernarbung, indem es KIF3A wiederherstellt und die β-Catenin-Signalisierung ausschaltet
. Insbesondere bei Silikose waren die KIF3A-Spiegel in Patientenproben und in der Lunge von Ratten niedrig. Wurde KIF3A wiederhergestellt, verringerte sich die Aktivität von β-Catenin und seinen nachgeschalteten Treibern MRTF-A und SRF, wodurch der mit der Narbenbildung verbundene Übergang vom Epithel zum Myofibroblasten (EMyT) verlangsamt wurde. Dies führte zu einer konsequenten Erhöhung der KIF3A-Funktion und folglich zu einer Verringerung der β-Catenin/MRTF-A/SRF-Signalgebung. Sobald jedoch KIF3A eliminiert wurde, verlor Ac-SDKP diese Vorteile, was bestätigt, dass KIF3A für seine antifibrotische Wirkung wesentlich ist [21].
In einer anderen Studie milderte Ac-SDKP in Kombination mit VIP die durch Zigarettenrauchen verursachten Veränderungen der COPD bei Mäusen ab. Es verringerte oxidative Schäden (niedrigere MDA-Werte), Narbenbildung (niedrigere Hydroxyprolin-Werte) und einen der Hauptfaktoren der Fibrose (niedrigere TGF-β-Werte). Gleichzeitig gingen die entzündlichen Zytokine (TNF-α, IL-1β, IL-6) zurück und der antioxidative Schutz verbesserte sich (höhere SOD-Aktivität). Dementsprechend zeigte das Lungengewebe unter dem Mikroskop weniger Entzündungen und weniger strukturelle Umbauten. Die Kombination dieser Substanzen wirkte in einem Modell für Rauchschäden antioxidativ, entzündungshemmend und antifibrotisch [22, 23]. Ac-SDKP zeigte auch signifikante Ergebnisse sowohl bei der Vorbeugung als auch bei der Behandlung der Bleomycin-induzierten Lungenfibrose. Bei CD-1-Mäusen führte die Verabreichung von Ac-SDKP (0,6 mg/kg, i.p.) ab Tag 0 oder Tag 7 verbesserte die Überlebensrate und verringerte den bleomycinbedingten Gewichtsverlust. Darüber hinaus wiesen die Lungen weniger Schwellungen und weniger invasive Immunzellen, eine gesündere Gewebestruktur und weniger Fibrose auf: Sowohl die Kollagenfärbung als auch der Gehalt an löslichem Kollagen nahmen ab. Mechanistisch gesehen gingen die pro-fibrotischen IL-17- und TGF-β-Signale zurück, und α-SMA nahm ab, was auf weniger Myofibroblasten hinweist. Wichtig ist, dass die Vorteile sowohl bei einer frühen (prophylaktischen) als auch bei einer verzögerten (therapeutischen) Behandlung eintraten [24]. Darüber hinaus reduziert es die durch Silikose ausgelöste Lungenfibrose über den P-HSP27/SNAI1-Stoffwechselweg. Bei Ratten verursachte die Silikose einen Anstieg von P-HSP27, SNAI1, α-SMA und Kollagen I/III im Lungengewebe. Im Gegensatz dazu verringerte Ac-SDKP - verabreicht entweder vor der Exposition oder nach Ausbruch der Krankheit - alle diese Marker und reduzierte die Anzahl der Zellen, die bei der Bildgebung sowohl für P-HSP27 als auch für α-SMA positiv waren. Wichtig ist, dass die Verabreichung von Ac-SDKP an gesunde Kontrollpersonen die Proteinexpression nicht veränderte, was darauf hindeutet, dass seine Wirkung selektiv für erkrankte Lungen ist [25].
Darüber hinaus hat es in mehreren Tierstudien starke antifibrotische Wirkungen gezeigt. Eine Meta-Analyse, die 18 randomisierte Studien (428 Tiere, 2008-2021) umfasste, ergab, dass Ac-SDKP im Vergleich zu unbehandelten Modellen mehrere Fibrosesignale reduzierte: α-SMA (SMD -2,44), Typ-I-Kollagen (SMD -5,36), Typ-III-Kollagen (SMD -3,07), TGF-β (SMD -2,88) und Lungenknotenfläche (SMD
-1,80); alle P<0,001. Außerdem war Hydroxyprolin, ein chemischer Indikator für Kollagen, ebenfalls signifikant verändert [SMD 7,62; 95% CI 4,90-10,33; P=0,000], was mit einer Wirkung auf den Kollagenumsatz übereinstimmt. Diese Ergebnisse zeigen, dass Ac-SDKP die Fibrose in Lungenkrankheitsmodellen konsequent verlangsamt [26]. In einer anderen Studie reduzierte Ac-SDKP die TGF-β- und CTGF-Spiegel und hemmte die durch Siliziumdioxid verursachte Narbenbildung in der Lunge von Ratten. Die Ratten erhielten Siliziumdioxid, um eine Fibrose zu induzieren, und anschließend prophylaktisch oder therapeutisch Ac-SDKP (800 µg/kg/Tag). Im Vergleich zur Silikose-Kontrollgruppe waren die TGF-β1- (auf ~0,244 ± 0,016) und CTGF-Proteinspiegel (auf ~0,241 ± 0,017) in den behandelten Lungen signifikant reduziert. Ähnlich waren die mRNA-Spiegel
sank und die CTGF-mRNA war im Vergleich zu den Modellgruppen deutlich niedriger (P<0,05). In der Prophylaxe-Gruppe lagen sowohl das Protein als auch die mRNA für TGF-β1 deutlich unter den Werten im 8-Wochen-Silikose-Modell (P<0,05). Schließlich bestätigte die Lungenhistologie eine geringere Fibrose [27]. Außerdem hemmt es die Kollagenakkumulation und verbessert die Lungenstruktur bei Silikose. Ratten, die einer Silikose ausgesetzt waren, erhielten Ac-SDKP entweder nach der Verletzung (Behandlung) oder 48 Stunden vor der Exposition (Prophylaxe). In den Behandlungsgruppen verringerte sich im Vergleich zu den Silikose-Modellen die Silikose-Knötchenfläche auf 84,28% und 67,93%, das Hydroxyprolin auf 70,89% und 58,18%, das Typ-I-Kollagen auf 71,08% und 58,13% und das Typ-III-Kollagen auf 80,13% und 70,70% (zu den jeweiligen Zeitpunkten). In den prophylaktischen Gruppen verringerten sich im Vergleich zum 8-wöchigen Silikosemodell die Knötchen auf 61,13%, das Hydroxyprolin auf 60,27% und das Kollagen vom Typ I und III auf 40,13% und 65,77%. Dementsprechend zeigten die HE- und VG-Färbungen eine mildere Fibrose. Dies reduzierte sowohl den Kollagengehalt als auch die sichtbare Narbenbildung [28].
Darüber hinaus schützt es die Lunge und die Knochen, indem es die Makrophagenwege beruhigt, wenn sie Kieselsäure ausgesetzt sind. Bei Ratten und in Zellmodellen aktivierte Siliziumdioxid TLR4 und RANKL, was zu einer Entzündung der Lunge und einer Knochenresorption durch Osteoklasten führte. Im Gegensatz dazu hemmte die Behandlung mit Ac-SDKP die TLR4- und RANKL-Signalübertragung, schützte das Lungenelastin, verringerte die Lungenentzündung und reduzierte die Makrophagenaktivierung. Gleichzeitig blockierte Ac-SDKP im Knochen die Osteoklastendifferenzierung und trug zur Erhaltung der Knochendichte und -mikroarchitektur bei. Diese Ergebnisse deuten auf einen doppelten Schutz hin: gesündere Lungen und stabilere Knochen bei siliziumdioxidbedingten Erkrankungen [29]. Es reduziert auch die Narbenbildung in der Lunge, indem es die Reifung der narbenbildenden Zellen hemmt. TGF-β1 regt normalerweise Lungenstützzellen (Fibroblasten) an, sich in Myofibroblasten umzuwandeln und zusätzliches Kollagen zu produzieren. Wenn Ac-SDKP vor TGF-β1 verabreicht wurde, sanken die Werte von α-SMA und Kollagen, und auch die Werte von TGF-β1 und seinem Rezeptor gingen zurück. Bei Ratten mit Siliziumdioxid-induzierter Lungenverletzung verringerte die Verabreichung von Ac-SDKP vor oder nach der Exposition die TGF-β1-Spiegel, die RAS-Signale und die SRF-Aktivität und reduzierte die Anzahl der α-SMA-positiven Myofibroblasten in den Lungenknötchen. Infolgedessen nahm die Kollagenakkumulation ab, was einen Schutz vor Fibrose zeigt [30, 31]. Darüber hinaus schützt Ac-SDKP die Alveolarauskleidung, indem es verhindert, dass sich Epithelzellen in narbenbildende Zellen umwandeln. Unter dem Einfluss von Schadenssignalen wie Silikose und TGF-β1 nehmen epitheliale Marker (E-Cadherin, SP-A) ab, während mesenchymale und Fibrosemarker (Vimentin, α-SMA, Kollagen I/III) zunehmen. Mit Ac-SDKP wurde diese schädliche Veränderung umgekehrt: Die epitheliale Identität blieb erhalten, die Fibrosemarker nahmen ab und der TGF-β1/ROCK1-Signalweg wurde abgeschwächt. Infolgedessen blieb die empfindliche Alveolaroberfläche näher am Normalzustand und war weniger anfällig für Narbenbildung [32]. Außerdem werden der Stress der "Proteinfabrik" und der Zelltod in den Alveolarzellen verringert, was wiederum die Narbenbildung in der Lunge reduziert. Bei Silikose zeigen die Zellen hohe ER-Stresssignale (GRP78, phosphoryliertes PERK und eIF2α), CHOP und Caspase-12, und viele Zellen sterben ab. Mit Ac-SDKP - wie auch mit dem ER-Stress-Blocker 4-PBA - gingen diese Stressmarker zurück, der Zelltod ging in Zelltests und bei Ratten zurück, und das Lungenkollagen nahm ab. Insgesamt trägt Ac-SDKP durch die Beruhigung des PERK/eIF2α/CHOP-Wegs und der Caspase-12 zum Schutz der Epithelschicht bei und verlangsamt das Fortschreiten der Fibrose [33].
Ac-SDKP für die Nierengesundheit (basierend auf Tierversuchen)
Ac-SDKP schützt die Nieren bei Lupus, ohne den Blutdruck zu senken. Nakagawa et al. (2017) zeigten, dass Ac-SDKP bei lupusanfälligen NZBWF1-Mäusen die Nierenfilter bewahrt (weniger glomeruläre Sklerose) und die Gesamtschäden reduziert, ohne den systolischen Blutdruck zu senken. Das Auftreten von schwerem Bluthochdruck, Urin-Albumin und vorzeitigem Tod trat unter Ac-SDKP später ein, aber diese Verzögerungen waren statistisch nicht signifikant [34]. Die Substanz schützt auch die Nierenfunktion bei Salzstress. Worou et al. (2015) untersuchten salzempfindliche Dahl-Ratten, die sechs Wochen lang mit 800 oder 1600 µg/kg/Tag behandelt wurden. Der Blutdruck stieg durch die Salzdiät weiter an, aber die Nieren zeigten weniger Entzündungen, weniger Fibrose und gesündere Filter. Nur die höhere Dosis verringerte bei den salzempfindlichen Ratten den Albuminspiegel im Urin. Beim resistenteren Stamm (SS13BN) verhinderten beide Dosen den Austritt von Albumin und strukturelle Schäden [35]. Dies deutet darauf hin, dass die Schutzwirkung unabhängig vom Blutdruck war. Das Peptid reduziert auch immunvermittelte Nierenschäden bei Lupus. Liao et al. (2015) fanden heraus, dass behandelte Mäuse mit Lupus nach 20 Wochen eine bessere Nierenfunktion aufwiesen, obwohl die Lupus-Autoantikörperspiegel unverändert waren. Die Nieren enthielten weniger invasive Immunzellen wie Makrophagen und T-Zellen, Entzündungssignale wie Zytokine und Chemokine waren geringer, und die Aktivierung von Komplementproteinen (C5-9), RANTES, MCP-5 und ICAM-1 war gehemmt. Infolgedessen blieb die Filtrationsfunktion erhalten und mikroskopische Schäden wurden reduziert [36].
In einer anderen Studie verhinderte es bluthochdruckbedingte Nierenschäden trotz anhaltend hohen Blutdrucks. Rhaleb et al. (2011) zeigten, dass Ac-SDKP (800 µg/kg/Tag über 12 Wochen) bei mit DOCA-Salzlösung behandelten Mäusen die Nierenvernarbung (Kollagen), die Ausdehnung der Filtrationsmatrix und den Einstrom von Monozyten/Makrophagen reduzierte, während der Blutdruck erhöht blieb. Wichtig ist, dass sich die Albuminwerte im Urin normalisierten - von 41 ± 5 µg auf 13 ± 3 µg pro 10 g Körpergewicht pro Tag, was einer Annäherung an die Kontrollwerte entspricht - und der Verlust von Nephrin (ein wichtiges Filtrationslückenprotein) teilweise wiederhergestellt wurde [37]. Somit schützte Ac-SDKP die Filtrationsbarriere und reduzierte die Narbenbildung unabhängig vom Blutdruck. Darüber hinaus schützt es vor Narbenbildung und Diabetes-bedingter Nierenfunktionsstörung. Shibuya et al. (2005) zeigten, dass bei db/db-Mäusen mit Typ-2-Diabetes die achtwöchige Verabreichung von Ac-SDKP über Minipumpen zu einem etwa dreifachen Anstieg der Ac-SDKP-Konzentration im Plasma führte, ohne dass sich der Blutzuckerspiegel veränderte. Infolgedessen wurden ein glomeruläres Ödem, eine übermäßige Proliferation der Mesangialmatrix und eine Akkumulation der extrazellulären Matrix verhindert, und die Plasmakreatininwerte näherten sich der Norm. Auch die Albuminurie ging zurück, wenngleich der Rückgang statistisch nicht signifikant war. Mechanistisch gesehen blockierte es den Eintritt von Smad3 in den Zellkern und verringerte so die mit der Fibrose verbundene TGF-β/Smad-Signalisierung [38]. Darüber hinaus reduziert Ac-SDKP die Nierenvernarbung bei Diabetes und ist ein zusätzlicher Nutzen neben der ACE-Hemmung. Castoldi et al. (2013) induzierten Diabetes bei Ratten und verabreichten dann Ac-SDKP (1 mg/kg/Tag), Ramipril (3 mg/kg/Tag), beide Medikamente zusammen oder Placebo. Zunächst entwickelten die unbehandelten diabetischen Ratten hohe Blutzuckerwerte, höhere Albuminwerte im Urin (Albuminurie), Nierenfibrose
Nierenfibrose und reduzierte glomeruläre Nephrinwerte. Mit Ac-SDKP allein ging die Nierenfibrose zurück, aber die Albuminurie verbesserte sich nicht. Mit Ramipril verringerten sich sowohl Albuminurie als auch Fibrose, und die Nephrinwerte wurden wiederhergestellt. Wichtig ist, dass die Kombination von Ac-SDKP mit Ramipril eine stärkere Verringerung der Fibrose bewirkte als Ramipril allein, obwohl sich die Albuminurie nicht weiter verbesserte. Ac-SDKP reduziert die Fibrose bei diabetischer Nephropathie und verstärkt den antifibrotischen Schutz von ACE-Hemmern ohne zusätzlichen Nutzen für die Albuminurie [39].
Interessanterweise entwickelten Zhang et al. (2022) ein bioinspiriertes Hydrogel mit zwei Netzwerken aus Gelatine und Curcumin-Zink, das mit DOPA beschichtet und mit immobilisiertem Ac-SDKP funktionalisiert ist. Dieses System wurde entwickelt, um die Einschränkungen freier Arzneimittel zu überwinden, einschließlich der schlechten Löslichkeit, Absorption und Stabilität. Die In-vivo-Anwendung in teilweise nephrektomierten Rattennieren zeigte, dass das Hydrogel die lokale Fibrose konsequent reduzierte, die Angiogenese förderte und die Bildung neuer Nierentubuli anregte. Materialtests bestätigten eine angemessene Porosität, mechanische Festigkeit und Biokompatibilität, was sein therapeutisches Potenzial weiter untermauert [40]. Vergleichende Studien zeigen auch die unterschiedlichen und stufenabhängigen Wirkungen von Thymosin-β4 (Tβ4). Zuo et al. (2013) untersuchten Ac-SDKP, Tβ4 und Tβ4 in Kombination mit dem Prolyl-Oligopeptidase (POP)-Inhibitor in Modellen der unilateralen Ureterobstruktion bei Wildtyp- und PAI-1-Gen-ausgeschlossenen Mäusen. Ac-SDKP reduzierte die Fibrose in beiden Genotypen, was sich in einer geringeren Kollagen- und Fibronektinablagerung, weniger aktivierten Myofibroblasten und Makrophagen und einer reduzierten pro-fibrotischen Signalübertragung zeigte [41]. Darüber hinaus zeigten Wang et al. (2010), dass Ac-SDKP die Nierenentzündung und die durch die Obstruktion ausgelöste Fibrose hemmt. Bei Ratten mit einseitiger Ureterobstruktion reduzierte eine 14-tägige Behandlung die tubulointerstitielle Vernarbung und entzündliche Veränderungen bei der histologischen Untersuchung. Das Peptid verringerte die Infiltration von Nierenmakrophagen (ED-1) und senkte die MCP-1-, NF-κB-, α-SMA- und TGF-β1-Proteinspiegel in tubulären und interstitiellen Zellen. Auch die MCP-1- und TGF-β1-Genexpression war reduziert, was darauf hindeutet, dass dadurch sowohl der Entzündungstransport als auch die Aktivierung der extrazellulären Matrix, die die Haupttriebkräfte der Nierenfibrose sind, verringert wurden [42]. Weitere Belege stammen aus Modellen für Bluthochdruck mit chronischer Nierenschädigung. Liao et al. (2010) verabreichten Ratten nach einer 5/6-Nephrektomie Ac-SDKP in einer Dosis von 800 µg/kg/Tag, entweder vor der Schädigung (Prävention) oder nach der Schädigung (Umkehrung). Trotz persistierendem Bluthochdruck und linksventrikulärer Hypertrophie reduzierte die Behandlung in beiden Gruppen die Albuminurie, die Makrophageninfiltration und die Nierenkollagenwerte. Der Nephrinverlust in den Glomeruli blieb ebenfalls teilweise erhalten oder wurde wiederhergestellt, was auf eine verbesserte Integrität der Filtrationsbarriere hindeutet. Diese Ergebnisse zeigen, dass das Peptid die Nieren sowohl in frühen als auch in fortgeschrittenen Stadien der Erkrankung schützt, und zwar hauptsächlich durch entzündungshemmende und antifibrotische Wirkungen und weniger durch die Kontrolle des Blutdrucks [43].
Bei Aldosteron-Salz-Hypertonie reduzierte das Peptid die Narbenbildung in Herz und Niere, ohne den Blutdruck zu beeinflussen. Peng et al. (2001) untersuchten Ratten, denen eine Niere entfernt worden war und die
wurde sechs Wochen lang Aldosteron und Salz verabreicht. Diese Behandlung erhöhte den Blutdruck, vergrößerte das Herz und die Nieren und führte zu einer Zunahme des Narbengewebes (Kollagen) und der Zellwachstumsmarker (PCNA). Die Verabreichung von Ac-SDKP, insbesondere in der höheren Dosis von 800 µg/kg/Tag, verringerte Kollagen und PCNA signifikant in einer dosisabhängigen Weise. Wichtig ist, dass der Blutdruck und die Organvergrößerung unverändert blieben, während eine niedrigere Dosis (400 µg/kg/Tag) einen teilweisen Nutzen brachte [44]. Bei immunvermittelter Nierenerkrankung verbesserte das Peptid die Nierenfunktion und verringerte die Fibrose. Omata et al. (2006) behandelten Ratten mit Anti-GBM-Nephritis ab 14 Tage nach Krankheitsbeginn vier Wochen lang mit Ac-SDKP in einer Dosis von 1 mg/kg/Tag. Im Vergleich zu unbehandelten Tieren verringerte es die Proteinkonzentration im Urin, senkte die Plasmaharnstoff- und Kreatininkonzentration und verbesserte die Kreatinin-Clearance. Die Gewebeanalyse zeigte weniger glomeruläre Sklerose und interstitielle Fibrose. Mechanistisch gesehen verringerte es die Fibronektin-, Kollagen- und TGF-β1-Spiegel, verringerte die Smad2-Signalisierung, erhöhte Smad7 und verringerte die Makrophagenansammlung im Nierengewebe [45]. Bei Diabetes blockierte das Peptid die Nierenvernarbung, indem es Blutgefäßzellen daran hinderte, sich in narbenbildende Zellen zu verwandeln. Nagai et al. (2014) zeigten, dass Ac-SDKP die natürlichen Schutzwege wiederherstellt, einschließlich der mikroRNA let-7 und der FGF-Rezeptor-Signalisierung, die durch Diabetes gehemmt waren. Infolgedessen reduzierte es die Fibrose und den endothelialen-mesenchymalen Übergang (EndMT). Wichtig ist, dass die Kombination mit einem ACE-Hemmer den Nierenschutz sogar noch stärker verbesserte als die ACE-Hemmung allein [46].
In einer anderen Studie stellte das Peptid einen gesunden Nierenstoffwechsel wieder her und reduzierte die Fibrose. Srivastava et al. (2020) verglichen ACE-Hemmer, ARBs, Ac-SDKP und deren Kombinationen bei Mäusen mit Diabetes. Außerdem blockierten sie seine natürliche Bildung mit einem Prolin-Oligopeptidase-Inhibitor (POPi). Die Ergebnisse zeigten, dass Ac-SDKP die Wirkungen der ACE-Hemmer durch eine Umprogrammierung des Nierenstoffwechsels vermittelte: SIRT3 wurde wiederhergestellt, die mitochondriale Fettsäureoxidation wurde verbessert und die abnorme Glukoseverwertung wurde reduziert. Im Gegensatz dazu reduzierte POPi die natürlichen Spiegel, beschleunigte die Fibrose und störte das metabolische Gleichgewicht. Wichtig ist, dass ACE-Hemmer (nicht aber ARBs) die Werte teilweise wiederherstellten und die Fibrose reduzierten. Sowohl ACE-Hemmer als auch Ac-SDKP reduzierten den mesenchymalen Umbau und verringerten die Spiegel von Kollagen I und Fibronektin in diabetischen Nieren [47].
In der Krebstherapie trug das Ac-SDKP-Analogon dazu bei, die Blutzellen während der Chemotherapie zu erhalten. Carde et al. (1992) testeten Seraspenid in einer doppelblinden, gekreuzten Phase-I-II-Studie mit 53 Patienten, die Cytarabin oder Ifosfamid erhielten. Im Vergleich zu einer Kontrollgruppe schützten die mit Seraspenid behandelten Patienten ihre peripheren Blutzellen besser vor der Toxizität der Chemotherapie. Das Medikament wurde gut vertragen und zeigte keine unerwünschten Wirkungen. Diese Ergebnisse legen nahe, dass Ac-SDKP-ähnliche Peptide das Knochenmark während einer zytotoxischen Behandlung schützen können [48]. In einer anderen Studie verringerte das Peptid die Bluttoxizität nicht, war aber sicher. Cappelaere et al. (1995) untersuchten 84 Patienten mit fortgeschrittenem Plattenepithelkarzinom, die Carboplatin und eine kontinuierliche Dosis von 5-Fluorouracil erhielten, zusammen mit
Placebo oder Goralatid (Ac-SDKP) in einer Dosis von 12,5 oder 62,5 µg/kg/Tag. Während der 221 Zyklen der Chemotherapie gab es keine Unterschiede zwischen den Gruppen bei den niedrigsten Blutwerten für Leukozyten, Granulozyten, Thrombozyten oder Hämoglobin. Auch die Dauer der Toxizität blieb unverändert. Allerdings traten Anämie und Lymphopenie unter Goralatid häufiger auf. Insgesamt wurde das Medikament gut vertragen, konnte aber in diesen Dosierungen den chemotherapiebedingten Blutzellverlust nicht verhindern [49].
Sowohl bei Typ-1- als auch bei Typ-2-Diabetes verbesserte das Peptid die Narbenbildung und die Nierenfunktion. Nitta et al. (2016) behandelten CD-1-Mäuse mit Streptozotocin-induziertem Typ-1-Diabetes und db/db-Mäuse mit Typ-2-Diabetes mit oralem Ac-SDKP, Imidapril (ACE-Hemmer) oder einer Kombination beider Medikamente. Die orale Behandlung, entweder allein oder in Kombination, reduzierte die glomeruläre Sklerose und die tubulointerstitielle Fibrose. Die Plasmakonzentrationen von Cystatin C, die bei Nierenerkrankungen erhöht sind, kehrten auf normale Werte zurück. Bei allen Therapien wurde die Unterdrückung der antifibrotischen microRNAs (miR-29 und let-7) wiederhergestellt, wobei die größte Verbesserung in der Gruppe beobachtet wurde, die eine Kombinationsbehandlung erhielt. Die Peptidspiegel im Urin waren in der Gruppe, die eine Kombinationstherapie erhielt, am höchsten, was auf eine Verbesserung der systemischen Exposition hinweist [50]. Bei immunvermittelten Nierenerkrankungen führte dies zu einer Senkung der Proteinwerte im Urin und zu einer Verringerung von Entzündungen und Fibrose. Tan et al. (2012) verabreichten MRL/lpr 1,0 mg/kg/Tag über 8 Wochen an Mäuse mit Lupus. Im Vergleich zu unbehandelten Mäusen mit Lupus hatten die Mäuse, die das Peptid erhielten, weniger Proteinurie und eine bessere Nierenfunktion. Das Nierengewebe enthielt weniger infiltrierende T-Zellen und Makrophagen. Mechanistisch gesehen kam es zu einer Verringerung der NF-κB-Aktivierung und der TNF-α-Produktion sowie zu einer Verringerung der pro-fibrotischen Marker (TGF-β1, α-SMA und Fibronectin). Die Phosphorylierung von Smad2/3 wurde gehemmt und Smad7 erhöht. Wichtig ist, dass die Ablagerung von Immunkomplexen und die Spiegel von Anti-dsDNA-Antikörpern nicht verändert wurden, was darauf hindeutet, dass die Vorteile eher auf eine Verringerung von Entzündung und Fibrose als auf eine Veränderung der Antikörperbildung zurückzuführen sind [51].
Bei Fettleibigkeit und hohem Salzkonsum schützte es die Nieren, indem es Entzündungen, Fibrose und sogar den Blutdruck reduzierte. Maheshwari et al. (2018) untersuchten schlanke (ZL) und fettleibige (ZO) Zucker-Ratten, die 8 Wochen lang mit normalem Salz (0,4%) oder hohem Salz (4%) gefüttert wurden, wobei die ZO-Untergruppe eine
1,6 mg/kg/Tag. Hoher Salzgehalt verschlimmerte die Nierenentzündung und Fibrose in beiden Gruppen, wobei fettleibige Ratten die stärkste Makrophageninfiltration aufwiesen (87,8 ± 10,8 gegenüber 19,14 ± 1,5 Zellen/mm² bei mageren Ratten). Die Behandlung reduzierte die Makrophageninfiltration bei fettleibigen Ratten auf 32,18 ± 2,4 Zellen/mm² (P<0,05) und verringerte die glomeruläre Sklerose sowie die interstitielle Fibrose sowohl in der Rinde als auch in der Medulla (P<0,05). Der systolische Blutdruck der mit Salz gefütterten fettleibigen Ratten sank ebenfalls von 164 ± 6,9 auf 144,05
± 14,1 mmHg (P=0,004). Die Albuminurie war bei fettleibigen Ratten höher als bei mageren Ratten, wurde aber durch die Salzaufnahme oder -behandlung nicht signifikant verändert [52].
Ac-SDKP für die Gesundheit von Gehirn und Nerven (auf der Grundlage von Tierversuchen)
Schutz in Modellen der Parkinson-Krankheit
Dieses Peptid trägt zum Schutz der Dopamin-produzierenden Neuronen bei und fördert bessere motorische Fähigkeiten und Gedächtnisleistungen in Modellen der Parkinson-Krankheit. Kamarehei und Zahednasab (2025) waren die ersten, die in Zellexperimenten zeigten, dass die Vorbehandlung von SH-SY5Y-Nervenzellen mit 20 nM dieses Peptids sie vor 6-OHDA schützte, einem Toxin, das häufig zur Nachahmung der Parkinson-Krankheit verwendet wird. In Studien mit Ratten wurden bei täglicher Verabreichung von 800 µg/kg nach einer 6-OHDA-Gehirnschädigung mehr Dopamin-Neuronen erhalten und der Zelltod durch Verringerung der Caspase-3- und Caspase-12-Aktivität reduziert. Die behandelten Ratten zeigten auch eine bessere motorische Koordination, ein besseres räumliches Gedächtnis und weniger Symptome von Angst und Depression. Mechanistisch gesehen sind die Vorteile auf den verringerten oxidativen Stress, den verminderten Stress des endoplasmatischen Retikulums (ER) und die verringerten Entzündungssignale im Gehirn zurückzuführen, was das Überleben und die Regeneration der Neuronen fördert [53].
Regeneration nach Rückenmarksverletzungen
Außerdem beschleunigt es die Genesung und lenkt die Entzündung nach einer Rückenmarksverletzung in Richtung Heilung um. Hashemizadeh et al. (2022) verabreichten Wistar-Ratten sieben Tage lang einmal täglich 0,8 mg/kg subkutan, beginnend zwei bis sechs Stunden nach einer Rückenmarksverletzung, die durch einen Gewichtsverlust verursacht wurde. Im Vergleich zu unbehandelten Tieren erlangten die behandelten Ratten eine bessere Gehfähigkeit, verloren weniger Motoneuronen und wiesen niedrigere Werte von TNF-α (einem pro-inflammatorischen Signal) und Caspase-3 auf. Gleichzeitig stieg der mRNA-Spiegel von CD206, einem Marker für pro-aging M2-Makrophagen. Gewebeuntersuchungen zeigten kleinere Schadensbereiche. Insgesamt änderte sich durch die Behandlung die Immunantwort von einer schädigenden Aktivität des Typs M1 zu einer schützenden Aktivität des Typs M2, was sowohl funktionelle als auch strukturelle Vorteile mit sich brachte [54].
Schutz nach traumatischen Hirnverletzungen (TBI)
Ac-SDKP trägt zum Schutz des Gehirns bei und fördert die Reparatur des Gehirns, wenn es kurz nach der Verletzung verabreicht wird. Zhang et al. (2017) verursachten kontrollierte kortikale Verletzungen bei Ratten und verabreichten ihnen diesen Wirkstoff (0,8 mg/kg/Tag) über eine Minipumpe für drei Tage, beginnend eine Stunde nach der Verletzung. Von Tag 7 bis Tag 35 verbesserten sich die sensorisch-motorischen Testergebnisse, und an den Tagen 33-35 war auch das räumliche Lernen im Vergleich zur Kontrollgruppe besser (p < 0,05). Am Ende der Studie waren die kortikalen Schäden und der Verlust von Hippocampus-Neuronen zurückgegangen, während das Wachstum der Blutgefäße, die Bildung neuer Neuronen und die dendritische Spike-Dichte höher waren. Eine frühzeitige Behandlung verringerte auch die Fibrinansammlung und dämpfte die Aktivierung von Immunzellen. Mechanistische Tests zeigten, dass die Blockierung der TGF-β1/NF-κB-Signalübertragung einen Großteil der entzündungshemmenden Wirkung erklärte [55].
Vorteile bei einer Krankheit, die der Multiplen Sklerose (MS) ähnelt
Es reduziert auch Stress und Entzündungen im Gehirn in Modellen der Multiplen Sklerose. Pejman et al. (2020) setzten C57BL/6-Mäuse einer experimentellen Autoimmun-Enzephalomyelitis (EAE) aus. Typischerweise erhöht EAE die ER-Stressmarker (Caspase-12, CHOP, PDI), den oxidativen Stress und den Zustrom von Immunzellen in den Hippocampus. Durch die Behandlung sanken die Caspase-12- und CHOP-Spiegel in den Oligodendrozyten, die Caspase-3-Aktivierung ging zurück, die ROS-Oxidation und die Lipidperoxidation nahmen ab, die antioxidative Kapazität verbesserte sich und die IL-6/IL-1β-Spiegel gingen zurück. Gehirnscans bestätigten eine geringere Schädigung des Hippocampus und eine geringere Infiltration von Immunzellen, was auf ein langsameres Fortschreiten der Krankheit hindeutet [56].
Ac-SDKP für die Gesundheit der Leber (auf der Grundlage von Tierversuchen)
Verlangsamung der durch Chemikalien verursachten Lebervernarbung
Das Ac-SDKP-Peptid trägt zum Schutz der Leber vor chemischen Schäden bei, indem es einen wichtigen Genkontrollschalter und Wachstumsweg reguliert. Wei et al. (2022) untersuchten Ratten, deren Leber durch Tetrachlorkohlenstoff (CCl₄) geschädigt worden war, und stellten ein geringeres Absterben von Stellatzellen fest - den wichtigsten narbenbildenden Zellen in der Leber. Auch die Fibrose wurde reduziert. Mechanistische Tests zeigten, dass die Behandlung die Konzentration von WTAP, dem Enzym, das m⁶A-Marker an RNA anhängt, reduzierte. Diese Veränderung stabilisierte die RNA Ptch1 und regulierte die Aktivität des Hedgehog-Signalwegs, des wichtigsten Treibers der Narbenbildung. Insgesamt weisen die Ergebnisse auf eine antifibrotische Wirkung über den WTAP/m⁶A/Ptch1-Signalweg hin, der die Hedgehog-Signalisierung reguliert [59].
Schutz bei Fibrose, die durch Gallengänge verursacht wird
Ac-SDKP schützt die Leber auch, wenn die Vernarbung durch einen Gallenstau verursacht wird. Zhang et al. (2012) verwendeten das Modell der Gallengangsligatur (BDL) bei Ratten und behandelten sie zwei Wochen lang kontinuierlich. Im Vergleich zu unbehandelten Tieren hatten die Tiere, die das Peptid erhielten, eine gehemmte TGF-β1-Signalisierung und niedrigere Werte von Markern, die mit aktivierten Sternzellen assoziiert sind (α-SMA, FSP-1). Die Expression von kollagenbezogenen Genen (Col I, Col III) und Umsatzenzymen (MMP-2, TIMP-1, TIMP-2) war ebenfalls verringert. Die Blutmarker für die Leberfunktion verbesserten sich: ALT, AST, Bilirubin und Prothrombinzeit näherten sich der Norm. Bei Gewebepräparaten wurden weniger Mastzellen, eine geringere Kollagenanhäufung und ein allgemeiner Rückgang von Fibrose und Entzündung beobachtet [60].
Aufrechterhaltung der natürlichen Abwehr- und Reparatursignale
Es hilft der Leber, ihre natürliche Widerstandskraft bei anhaltender chemischer Schädigung zu erhalten. Chen et al. (2010) fanden heraus, dass bei kontinuierlicher Exposition gegenüber CCl₄ die natürlichen Peptidspiegel mit der Zeit sanken. Die Ersetzung des Peptids durch eine Infusion (800 µg/kg/Tag über acht Wochen) hielt die Ausgangswerte aufrecht und reduzierte Leberschäden, Entzündungen und Fibrose. Die Leberenzymwerte im Blut gingen zurück, die CD45⁺-Entzündungszellen nahmen ab.
und die Kollagen- und α-SMA-Ablagerungen nahmen ab. Pro-fibrotische Signale wie TGF-β1 und Phospho-Smad2/3 nahmen ab, während reparaturbezogene Signale, BMP-7 und Phospho-Smad1/5/8, zunahmen. In zellulären Assays blockierte es direkt die Aktivierung der Sternzellen, was eine antifibrotische Wirkung auf zellulärer Ebene bestätigt [61].
Ac-SDKP für die Haut- und Gewebereparatur (basierend auf Tierversuchen) H3. Hydrogel-Hautkleber zur Beschleunigung der Heilung und Verringerung der Narbenbildung
Ein spezieller Hautklebstoff auf Zellulosebasis (Dopa-OCMC-PAA, im Vergleich zu OCMC-PAA) wurde für die Aufnahme und Freisetzung von Ac-SDKP entwickelt. Beide Versionen zeigten gute Quellungs- und Abbauprofile, hohe mechanische Festigkeit und Sicherheit bei der Verwendung mit Zellen, wobei Dopa-OCMC-PAA am besten abschnitt. Bei Mäusen mit Leberblutungen stoppte dieser Klebstoff die Blutung schneller. In Tests mit Fibroblasten erhöhte es die Werte der für den Gewebeumbau verantwortlichen Enzyme (MMP-1 und MMP-3), während es die Aktivität der Kollagengene verringerte. Bei Kaninchen mit verdickten Narben am Ohr reduzierte Dopa-OCMC-PAA in Kombination mit einem Peptid die Narbenwerte, verringerte die Zellzahl, verbesserte die Kollagenstruktur und zeigte wiederum höhere Werte von MMP-1/MMP-3 bei geringerer Kollagengenaktivität. Zusammengefasst zeigten diese Ergebnisse eine bessere Wundheilung und weniger Narbenbildung [62].
Die topische Anwendung verbessert das Überleben und die Reparatur der Haut
Bei Hautlappenoperationen an Ratten (abdominal und dorsal) erhöhten Injektionen von Ac-SDKP in einer Dosis von 5 µg/kg zweimal täglich über drei Tage die Überlebensrate der gesunden Haut. Die Fläche des lebensfähigen Lappens stieg von 50,9 ± 19,3% auf 66,4 ± 7,5% für ventrale Lappen und von 53,4 ± 4,2% auf 74,7 ± 6,6% für dorsale Lappen. Bei UVB-geschädigtem Hautgewebe verbesserte die topische Anwendung das Überleben. Die topische Anwendung beschleunigte auch das Wachstum neuer Haut, erhöhte den Keratin-14-Spiegel (ein Marker für hautbildende Zellen) und den Fibronektin-Spiegel, was seine Rolle bei der Entwicklung und Reparatur von Blutgefäßen belegt [63].
Schutz der Blutbildung während der Chemotherapie
Bei Mäusen, die das Chemotherapeutikum Doxorubicin erhielten, verringerte die Verabreichung von Ac-SDKP in einer Dosis von 2,4 µg/Tag (kontinuierlich oder geteilt) ab 48 Stunden vor der Behandlung die Sterblichkeit und schützte die für die Blutbildung zuständigen Stammzellen (LTRC, CFU-S, HPP-CFC und CFU-GM). Der Zusatz von G-CSF beschleunigte die Erholung von CFU-GM weiter. Der Zeitpunkt der Verabreichung war entscheidend - zum Schutz vor kurzfristiger Knochenmarkschädigung und langfristigem Stammzellverlust war es notwendig, die Verabreichung vor der Chemotherapie zu beginnen [64].
Stärkere antifibrotische Wirkung durch verbesserte Analoga und Kombination von ACE-Hemmern
In Experimenten mit Lungenfibroblasten reduzierte die ACE-resistente Form von Ac-SDKP die Vernarbungssignale (TGF-β/Smad3) und die Kollagenanreicherung besser als die natürliche Form. Das verkürzte Fragment (Ac-DKP) hatte nur eine schwache Wirkung und wurde von ACE langsam abgebaut. In Kombination mit ACE-Hemmern hemmte das Peptid Hydroxyprolin (ein Marker für Kollagen) stärker als allein, was eine stärkere Wirkung und klinisches Potenzial zeigt. In Dosen von 10-⁶ bis 10-¹⁷ M verringerten sowohl Thymosin-β4 (Tβ4) als auch das Peptid das Wachstum von Mastzellen (am besten bei 10-¹⁴ M) und induzierten ungewöhnliche Kernveränderungen, die mit einem Zellzyklusstillstand verbunden sind. Bei einer Konzentration von 10-⁸ M induzierten sie auch die Freisetzung von Chemikalien aus Mastzellen (Degranulation), wobei das Peptid eine stärkere Wirkung zeigte (~89%) als Tβ4 (~57%). Andere Tβ4-Fragmente zeigten keine Wirkung, was zeigt, dass die Wirkung spezifisch für intaktes Tβ4 und das Peptid war [65, 66].
Ac-SDKP-Dosis
In präklinischen Studien wird Ac-SDKP meist subkutan über eine Minipumpe in einer Dosis von etwa 0,8 mg/kg/Tag verabreicht, um Fibrose und Entzündungen im Herzen/Gefäßsystem und in den Nieren zu verringern. In Studien an Mäusen nach Herzinfarkt wird manchmal eine Dosis von 1,6 mg/kg/Tag verwendet, um einen frühen Schutz zu bieten. Bei Gehirn/Neuronen wird in der Regel eine Dosis von etwa 0,8 mg/kg/Tag für 3-7 Tage in kurzen Zyklen verwendet, die innerhalb von Stunden nach der Verletzung beginnen. In zellulären Studien ist es üblich, mit einer Dosis von etwa 10 nM vorzubehandeln. In der Leber wird in Antifibrotik-Protokollen bei chronischen Verletzungen häufig eine Dosis von etwa 0,8 mg/kg/Tag verabreicht. In der Lunge wurde im Bleomycin-Modell eine Dosis von 0,6 mg/kg intraperitoneal mit wiederholten Gaben ab Tag 0 oder Tag 7 verwendet. In der Haut/Wundheilung umfasste die topische Dosierung 5 µg/kg pro Injektion zweimal täglich über drei Tage oder Hydrogele, die Peptide zur topischen Freisetzung enthalten. In der Hämatologie/Knochenmarkreparatur werden sehr niedrige Mikrogramm-Dosen verwendet, wie z. B. 2,4 µg/Tag bei Mäusen vor einer Chemotherapie und kurze Behandlungen von µg/kg/Tag in frühen klinischen Studien.
Haftungsausschluss
Dieser Artikel wurde zu Bildungszwecken verfasst und soll das Bewusstsein für den besprochenen Stoff schärfen. Es ist wichtig zu beachten, dass der Artikel über die Substanz im Allgemeinen handelt - er ist keine Beschreibung eines spezifischen Produkts (chemisches Reagens). Wir schlagen nicht die Anwendung chemischer Reagenzien am Menschen vor - dies ist gesetzlich verboten, denn damit ein Produkt zur Behandlung eingesetzt werden kann, muss es als Arzneimittel zugelassen sein. Die in diesem Text enthaltenen Informationen beruhen auf verfügbaren wissenschaftlichen Untersuchungen und sind nicht als medizinischer Ratschlag oder zur Förderung der Selbstmedikation gedacht. Der Leser sollte bei allen Gesundheits- und Behandlungsentscheidungen eine qualifizierte medizinische Fachkraft konsultieren.
Referenzen
- Wang, W., Jia, W. und Zhang, C. (2022). Die Rolle der Tβ4-POP-Ac-SDKP-Achse bei Organfibrose. Internationale Zeitschrift für Molekularwissenschaften, 23(21), 13282. https://doi.org/10.3390/ ijms232113282
- Nakagawa, P., Romero, C. A., Jiang, X., D'Ambrosio, M., Bordcoch, G., Peterson, E. L., Harding, P., Yang, X. P. und Carretero, O. A. (2018). Ac-SDKP reduziert die Sterblichkeit und das Risiko einer Herzruptur nach einem akuten Myokardinfarkt. PLoS Eins, 13(1), e0190300. https://doi.org/10.1371/ journal.pone.0190300 https://pubmed.ncbi.nlm.nih.gov/29364896/
- Peng, H., Carretero, O. A., Brigstock, D. R., Oja-Tebbe, N. und Rhaleb, N. E. (2003). Ac-SDKP kehrt die Herzfibrose bei Ratten mit renaler vaskulärer Hypertonie um. Bluthochdruck, 42(6), 1164–1170. https://doi.org/10.1161/01.HYP.0000100423.24330.96 https://pubmed.ncbi.nlm.nih.gov/14581293/
- Yang, F., Yang, X. P., Liu, Y. H., Xu, J., Cingolani, O., Rhaleb, N. E., & Carretero, O. A. (2004). Ac-SDKP kehrt Entzündung und Fibrose bei Ratten mit Herzversagen nach Myokardinfarkt um. Bluthochdruck, 43(2), 229-236. https://doi.org/10.1161/01.HYP.0000107777.91185.89 https:// pubmed.ncbi.nlm.nih.gov/14691195/
- Rasoul, S., Carretero, O. A., Peng, H., Cavasin, M. A., Zhuo, J., Sanchez-Mendoza, A., Brigstock,
D. R. und Rhaleb, N. E. (2004). Antifibrotische Wirkungen von Ac-SDKP und Angiotensin-Converting-Enzyme-Hemmung bei Bluthochdruck. Zeitschrift für Bluthochdruck, 22(3), 593-603. https://doi.org/ 10.1097/00004872-200403000-00023 https://pubmed.ncbi.nlm.nih.gov/15076166/
- Rhaleb, N. E., Peng, H., Harding, P., Tayeh, M., LaPointe, M. C. und Carretero, O. A. (2001). Auswirkungen von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin auf die DNA- und Kollagensynthese in Ratten-Herzfibroblasten. Bluthochdruck, 37 (3), 827-832. https://doi.org/10.1161/01.hyp.37.3.827 https:// pubmed.ncbi.nlm.nih.gov/11244003/
- Liu, Y.-H., D'Ambrosio, M., Liao, T.-D., Peng, H., Rhaleb, N.-E., Sharma, U., André, S., Gabius, H.-J. und Carretero, O. A. (2009). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin verhindert Herzumbau und -dysfunktion, die durch Galektin-3, ein Lektin, das Adhäsion/Wachstum bei Säugetieren reguliert, ausgelöst werden. American Journal of Physiology-Heart and Circulatory Physiology, 296(2), H404-H412. https://doi.org/ 10.1152/ajpheart.00747.2008 https://pubmed.ncbi.nlm.nih.gov/19098114/
- Rhaleb, N. E., Peng, H., Yang, X. P., Liu, Y. H., Mehta, D., Ezan, E. und Carretero, O. A. (2001). Langfristige Auswirkungen von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin auf die linksventrikuläre Kollagenablagerung bei Ratten mit Bluthochdruck durch Schädigung von zwei Nieren und Abklemmen einer davon. Auflage, 103(25), 3136-3141. https://doi.org/ 10.1161/01.cir.103.25.3136 https://pubmed.ncbi.nlm.nih.gov/11425781/
- Cavasin M. A. (2006). Therapeutisches Potenzial von Thymosin beta4 und seinem N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin-Derivat (Ac-SDKP) bei der Behandlung des Herzens nach Myokardinfarkt. Amerikanische Zeitschrift für kardiovaskuläre Medikamente: Medikamente, Geräte und andere Interventionen, 6(5), 305-311. https://doi.org/ 10.2165/00129784-200606050-00003 https://pubmed.ncbi.nlm.nih.gov/17083265/
- Rhaleb, N. E., Pokharel, S., Sharma, U. C., Peng, H., Peterson, E., Harding, P., Yang, X. P. und Carretero, O. A. (2013). N-Acetyl-Ser-Asp-Lys-Pro hemmt die Aktivierung von Matrix-Metalloproteinase durch Interleukin-1β in kardialen Fibroblasten. Pflügers Archiv - Europäische Zeitschrift für
Physiologie, 465(10), 1487-1495. https://doi.org/10.1007/s00424-013-1262-8 https:// pubmed.ncbi.nlm.nih.gov/23652767/
- Nakagawa, P., Liu, Y., Liao, T. D., Chen, X., González, G. E., Bobbitt, K. R., Smolarek, D., Peterson, E. L., Kedl, R., Yang, X. P., Rhaleb, N. E. und Carretero, O. A. (2012). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin-Behandlung verhindert experimentelle Autoimmun-Myokarditis bei Ratten. American Journal of Physiology - Herz- und Kreislaufphysiologie, 303(9), H1114-H1127. https:// doi.org/10.1152/ajpheart.00300.2011 https://pubmed.ncbi.nlm.nih.gov/22923621/
- González, G. E., Rhaleb, N. E., Nakagawa, P., Liao, T. D., Liu, Y., Leung, P., Dai, X., Yang, X. P. und Carretero, O. A. (2014). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin reduziert kardiale Kollagenvernetzung und Entzündung bei Angiotensin-II-induzierten hypertensiven Ratten. Klinische Wissenschaft, 126(1), 85-
- Peng, H., Xu, J., Yang, X. P., Kassem, K. M., Rhaleb, I. A., Peterson, E. und Rhaleb, N. E. (2019). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin-Behandlung schützt das Herz vor übermäßiger Myokardschädigung und Herzversagen bei Mäusen. Kanadische Zeitschrift für Physiologie und Pharmakologie, 97(8), 753-765. https://doi.org/10.1139/cjpp-2019-0047 https://pubmed.ncbi.nlm.nih.gov/30998852/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Perego, C., Perego, L., Mancini, M., Leopizzi, M., Corradi, B., Perlini, S., Zerbini, G. und Stella, A. (2009). Prävention der Myokardfibrose durch N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin bei diabetischen Ratten. Klinische Wissenschaft, 118(3), 211-220. https:// doi.org/10.1042/cs20090234 https://pubmed.ncbi.nlm.nih.gov/20310083/
- Sharma, U. C., Sonkawade, S. D., Baird, A., Chen, M., Xu, S., Sexton, S., Singh, A. K., Groman, A., Turowski, S. G., Spernyak, J. A., Mahajan, S. D. und Pokharel, S. (2018). Auswirkungen eines neuartigen Ac-SDKP-Peptids auf strahleninduzierte koronare Endothelschäden und den Myokardblutfluss in Ruhe. Kardio-Onkologie, 4, 8. https://doi.org/10.1186/s40959-018-0034-1 https:// pubmed.ncbi.nlm.nih.gov/31057947/
- Suhail, H., Peng, H., Matrougui, K. und Rhaleb, N. E. (2024). Ac-SDKP dämpft die durch ER-Stress stimulierte Kollagenproduktion in kardialen Fibroblasten durch CHOP-vermittelte Hemmung der NF-κB-Expression. Frontiers in Pharmacology, 15, 1352222. https://doi.org/10.3389/fphar.2024.1352222 https://pubmed.ncbi.nlm.nih.gov/38495093/
- Zhu, L., Yang, X. P., Janic, B., Rhaleb, N. E., Harding, P., Nakagawa, P., Peterson, E. L. und Carretero, O. A. (2016). Ac-SDKP hemmt TNF-α-induzierte ICAM-1-Expression in Endothelzellen durch Hemmung der IκB-Kinase und NF-κB-Aktivierung. American Journal of Physiology - Herz- und Kreislaufphysiologie, 310(9), H1176-H1183. https://doi.org/10.1152/ajpheart.00252.2015 https://pubmed.ncbi.nlm.nih.gov/26945075/
- Lin, C. X., Rhaleb, N. E., Yang, X. P., Liao, T. D., D'Ambrosio, M. A. und Carretero, O. A. (2008). Prävention der Aortenfibrose durch N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin bei Angiotensin-II-induzierter Hypertonie. American Journal of Physiology-Heart and Circulatory Physiology, 295(3), H1253-H1261. https://doi.org/10.1152/ajpheart.00481.2008 https://pubmed.ncbi.nlm.nih.gov/18641275/
- Sharma, U. C., Sonkawade, S. D., Spernyak, J. A., Sexton, S., Nguyen, J., Dahal, S., Attwood, K. M., Singh, A. K., van Berlo, J. H. und Pokharel, S. (2018). Das kleine Peptid Ac-SDKP hemmt
Strahleninduzierte Kardiomyopathie. Circulation: Herzinsuffizienz, 11(8), e004867. https://doi.org/ 10.1161/CIRCHEARTFAILURE.117.004867 https://pubmed.ncbi.nlm.nih.gov/30354563/
- Conte, E., Iemmolo, M., Fruciano, M., Fagone, E., Gili, E., Genovese, T., Esposito, E., Cuzzocrea, S. und Vancheri, C. (2015). Auswirkungen von Thymosin β4 und seinem N-terminalen Fragment Ac-SDKP auf TGF-β-behandelte menschliche Lungenfibroblasten und in einem Mausmodell der Bleomycin-induzierten Lungenfibrose. Sachverständigengutachten zur biologischen Therapie, 15(Suppl 1), S211-S221. https://doi.org/ 10.1517/14712598.2015.1026804 https://pubmed.ncbi.nlm.nih.gov/26098610/
- Liu, S., Jin, R., Zheng, G., Wang, Y., Li, Q., Jin, F., Li, Y., Li, T., Mao, N., Wei, Z., Li, G., Fan, Y.,
Xu, H., Li, S. und Yang, F. (2023). Ac-SDKP fördert die KIF3A-vermittelte β-Catenin-Hemmung durch einen ziliären Mechanismus zur Begrenzung der Siliziumdioxid-induzierten epithelial-myofibroblastischen Transformation. Biomedizin und Pharmakotherapie, 166, 115411. https://doi.org/10.1016/j.biopha.2023.115411 https://pubmed.ncbi.nlm.nih.gov/37651800/
- Cai, J., Chen, Q., Mehrabi Nasab, E. und Athari, S. S. (2022). Immunmodulatorische Auswirkungen von N-Acetyl-Seryl-Aspartyl-Prolin und vasoaktivem intestinalem Peptid auf die Pathophysiologie der chronisch obstruktiven Lungenerkrankung. Grundlegende und klinische Pharmakologie, 36(6), 1005-1010. https:// doi.org/10.1111/fcp.12811 https://pubmed.ncbi.nlm.nih.gov/35763864/
- Wang, J., Qian, Y., Gao, X., Mao, N., Geng, Y., Lin, G., Zhang, G., Li, H., Yang, F. und Xu, H. (2020). Synthese und Identifizierung eines neuartigen Ac-SDK (Biotin)-Prolin-Peptids, das antifibrotische Wirkungen bei Ratten mit Silikose hervorrufen kann. Entwurf, Entwicklung und Therapie von Arzneimitteln, 14, 4315–4326. https://doi.org/10.2147/DDDT.S262716 https://pubmed.ncbi.nlm.nih.gov/33116418/
- Conte, E., Fagone, E., Gili, E., Fruciano, M., Iemmolo, M., Pistorio, M. P., Impellizzeri, D., Cordaro, M., Cuzzocrea, S., & Vancheri, C. (2016). Präventive und therapeutische Effekte des N-terminalen Thymosin-β4-Fragments Ac-SDKP in einem Bleomycin-induzierten Lungenfibrosemodell. Oncotarget, 7(23), 33841-33854. https://doi.org/10.18632/oncotarget.8409 https:// pubmed.ncbi.nlm.nih.gov/27029074/
- Cao, W., Yao, S. S., Gong, H. B., Zhu, L. Y., Miao, Z. Y. und Deng, H. J. (2022). Regulierende Wirkung von Ac-SDKP auf den phosphorylierten Hitzeschockprotein 27/SNAI1-Signalweg bei Ratten mit Silikose. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 40(2), 90-96. https://doi.org/10.3760/ cma.j.cn121094-20201218-00702 https://pubmed.ncbi.nlm.nih.gov/35255573/
- Gong, H. B., Zhang, C. M., Tang, X. Y., Gong, R. B., Miao, Z. Y. und Deng, H. J. (2023). Meta-Analyse der Hemmung der Lungenfibrose durch Ac-SDKP in Tiermodellen. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing An Zhi, 41 (4), 262-270. https://doi.org/10.3760/ cma.j.cn121094-20211115-00565 https://pubmed.ncbi.nlm.nih.gov/37248179/
- Li, Q., Yang, F., Zhang, L.-J., Yan, J.-B., Chen, P., Li, D.-D. und Wu, K.-F. (2009). [Antifibrotische Wirkung von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin über die Regulierung der Expression von transformierendem Wachstumsfaktor Beta und Bindegewebswachstumsfaktor bei Ratten mit Silikose]. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 27(7), 390-394. PMID: 20039536 https:// pubmed.ncbi.nlm.nih.gov/20039536/
28. Yan, J.-B., Zhang, L.-J. und Li, Q. (2008). [Antifibrotische Wirkung von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin in den Lungen von Ratten mit Silikose]. Zhonghua Lao Dong Wei Sheng Zhi Ye Bing Za Zhi, 26(7), 401-405. PMID: 19080377 https://pubmed.ncbi.nlm.nih.gov/19080377/
- Jin, F., Geng, F., Xu, D., Li, Y., Li, T., Yang, X., Liu, S., Zhang, H., Wei, Z., Li, S., Gao, X., Cai, W.,
Mao, N., Yi, X., Liu, H., Sun, Y., Yang, F. und Xu, H. (2021). Ac-SDKP dämpft die Aktivierung von Lungenmakrophagen und Knochenosteoklasten bei Siliziumdioxid-exponierten Ratten durch Hemmung der TLR4- und RANKL-Signalwege. Journal of Inflammation Research, 14, 1647-1660. https://doi.org/10.2147/ JIR.S306883 https://pubmed.ncbi.nlm.nih.gov/33948088/
- Xu, H., Yang, F., Sun, Y., Yuan, Y., Cheng, H., Wei, Z., Li, S., Cheng, T., Brann, D. und Wang, R. (2012). Ein neues antifibrotisches Ziel von Ac-SDKP: Hemmung der Myofibroblasten-Differenzierung in der Lunge von Ratten mit Silikose. PLoS Eins, 7(7), e40301. https://doi.org/10.1371/journal.pone.0040301 https:// pubmed.ncbi.nlm.nih.gov/22802960/
- Wang, X., Liu, Y., Xu, H., Zhang, X., Li, S., Xu, D., Gao, X., Zhang, L., Zhang, B., Wei, Z., Wang, R., Brann, D. and Yang, F. (2016). Acetyliertes α-Tubulin, das durch N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin (Ac-SDKP) reguliert wird, übt antifibrotische Wirkungen auf die durch Siliziumdioxid induzierte Lungenfibrose bei Ratten aus. Wissenschaftliche Berichte, 6, 32257. https://doi.org/10.1038/srep32257 https://pubmed.ncbi.nlm.nih.gov/27577858/
- Deng, H., Xu, H., Zhang, X., Sun, Y., Wang, R., Brann, D. und Yang, F. (2016). Schützende Effekte von Ac-SDKP auf Follikelepithelzellen durch TGF-β1/ROCK1-Signalweg-vermittelte EMT-Hemmung bei Silikose in Ratten. Toxikologie und angewandte Pharmakologie, 294, 1-10. https://doi.org/10.1016/ j.taap.2016.01.010 https://pubmed.ncbi.nlm.nih.gov/26785300/
- Zhang, L., Xu, D., Li, Q., Yang, Y., Xu, H., Wei, Z., Wang, R., Zhang, W., Liu, Y., Geng, Y., Li, S., Gao, X. and Yang, F. (2018). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin (Ac-SDKP) mildert silikotische Fibrose durch Hemmung der Apoptose von Typ-II-Alveolarepithelzellen über die Vermittlung von endoplasmatischem Retikulumstress. Toxikologie und angewandte Pharmakologie, 350, 1-10. https://doi.org/10.1016/ j.taap.2018.04.025 https://pubmed.ncbi.nlm.nih.gov/29684394/
- Nakagawa, P., Masjoan-Juncos, J. X., Basha, H., Janic, B., Worou, M. E., Liao, T. D., Romero, C. A., Peterson, E. L. und Carretero, O. A. (2017). Auswirkungen von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin auf Blutdruck, Nierenschäden und Mortalität bei systemischem Lupus erythematodes. Physiologische Berichte, 5(2), e13084. https://doi.org/10.14814/phy2.13084 https://pubmed.ncbi.nlm.nih.gov/ 28126732/
- Worou, M. E., Liao, T. D., D'Ambrosio, M., Nakagawa, P., Janic, B., Peterson, E. L., Rhaleb, N. E. und Carretero, O. A. (2015). Schützende Wirkung von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin auf die Niere von Dahl-Salz-empfindlichen Ratten. Bluthochdruck, 66(4), 816-822. https://doi.org/10.1161/ HYPERTENSIONAHA.115.05970 https://pubmed.ncbi.nlm.nih.gov/26324505/
- Liao, T. D., Nakagawa, P., Janic, B., D'Ambrosio, M., Worou, M. E., Peterson, E. L., Rhaleb, N. E., Yang, X. P. und Carretero, O. A. (2015). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin: Mechanismen des Nierenschutzes in einem Mausmodell des systemischen Lupus erythematodes. Amerikanische Zeitschrift für Physiologie - Nierenphysiologie, 308 (10), F1146-F1154. https://doi.org/10.1152/ajprenal.00039.2015 https://pubmed.ncbi.nlm.nih.gov/25740596/
37. Rhaleb, N. E., Pokharel, S., Sharma, U. und Carretero, O. A. (2011). Renal protective effects of N-acetyl-Ser-Asp-Lys-Pro in deoxycorticosterone acetate-salt-induced hypertensive mice. Zeitschrift für Bluthochdruck, 29(2), 330-338. https://doi.org/10.1097/HJH.0b013e32834103ee https:// pubmed.ncbi.nlm.nih.gov/21052020/
- Shibuya, K., Kanasaki, K., Isono, M., Sato, H., Omata, M., Sugimoto, T., Araki, S., Isshiki, K., Kashiwagi, A., Haneda, M. und Koya, D. (2005). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin verhindert Nierenversagen und mesangiale Matrixproliferation bei db/db-Mäusen mit Diabetes. Diabetes, 54(3), 838-845. https://doi.org/10.2337/diabetes.54.3.838 https://pubmed.ncbi.nlm.nih.gov/15734863/
- Castoldi, G., di Gioia, C. R. T., Bombardi, C., Preziuso, C., Leopizzi, M., Maestroni, S., Corradi, B., Zerbini, G. und Stella, A. (2013). Antifibrotische Wirkungen von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin auf die Niere von diabetischen Ratten. Amerikanische Zeitschrift für Nephrologie, 37(1), 65-73. https://doi.org/10.1159/000346116 https://pubmed.ncbi.nlm.nih.gov/23327833/
- Zhang, R., Hu, Z., Wang, Y., Qiu, R., Wang, G., Wang, L. und Hu, B. (2022). Biomimetisches Doppelnetz-Hydrogel lindert die Nierenfibrose und fördert die Nierenregeneration. Zeitschrift für Werkstoffchemie B, 10 (45), 9424-9437. https://doi.org/10.1039/d2tb01939f https:// pubmed.ncbi.nlm.nih.gov/36378134/
- Zuo, Y., Chun, B., Potthoff, S. A., Kazi, N., Brolin, T. J., Orhan, D., Yang, H.-C., Ma, L.-J., Kon, V., Myöhänen, T., Rhaleb, N.-E., Carretero, O. A. und Fogo, A. B. (2013). Thymosin β4 und sein Abbauprodukt, Ac-SDKP, sind neuartige Reparaturmittel bei Nierenfibrose. Kidney International, 84(6), 1166-1175. https://doi.org/10.1038/ki.2013.209 https://pubmed.ncbi.nlm.nih.gov/23739235/
- Wang, M., Liu, R., Jia, X., Mu, S. und Xie, R. (2010). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin mildert Nierenentzündung und tubulointerstitielle Fibrose bei Ratten. Internationale Zeitschrift für molekulare Medizin, 26 (6), 795-801. https://doi.org/10.3892/ijmm_00000527 https:// pubmed.ncbi.nlm.nih.gov/21042772/
- Liao, T.-D., Yang, X.-P., D'Ambrosio, M., Zhang, Y., Rhaleb, N.-E. und Carretero, O. A. (2010). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin mildert Nierenschäden und -dysfunktion bei hypertensiven Ratten mit reduzierter Nierenmasse: Hypertension Research Council. Bluthochdruck, 55(2), 459-467. https://doi.org/10.1161/HYPERTENSIONAHA.109.144568 https://pubmed.ncbi.nlm.nih.gov/ 20026760/
- Peng, H., Carretero, O. A., Raij, L., Yang, F., Kapke, A. und Rhaleb, N. E. (2001). Antifibrotische Wirkungen von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin auf Herz und Niere bei Aldosteron-Salz-induzierten hypertensiven Ratten. Bluthochdruck, 37(2 Pt 2), 794-800. https://doi.org/10.1161/01.hyp.37.2.794 https:// pubmed.ncbi.nlm.nih.gov/11230375/
- Omata, M., Taniguchi, H., Koya, D., Kanasaki, K., Sho, R., Kato, Y., Kojima, R., Haneda, M. und Inomata, N. (2006). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin mildert das Fortschreiten der Nierenfunktionsstörung und Fibrose bei WKY-Ratten mit etablierter Glomerulonephritis. Zeitschrift der Amerikanischen Gesellschaft für Nephrologie, 17(3), 674-685. https://doi.org/10.1681/ ASN.2005040385 https://pubmed.ncbi.nlm.nih.gov/16452498/
- Nagai, T., Kanasaki, M., Srivastava, S. P., Nakamura, Y., Ishigaki, Y., Kitada, M., Shi, S., Kanasaki, K. und Koya, D. (2014). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin hemmt diabetesbedingte
Diabetes-bedingte Nierenfibrose und endothelial-mesenchymaler Übergang. BioMed Research International, 2014, 696475. https://doi.org/10.1155/2014/696475 https://pubmed.ncbi.nlm.nih.gov/24783220/
- Srivastava, S. P., Goodwin, J. E., Kanasaki, K. und Koya, D. (2020). Metabolische Reprogrammierung mit N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin schützt vor diabetischer Nierenerkrankung. Britische Zeitschrift der Pharmakologie, 177 (16), 3691-3711. https://doi.org/10.1111/bph.15087 https:// pubmed.ncbi.nlm.nih.gov/32352559/
- Carde, P., Chastang, C., Goncalves, E., Mathieu-Tubiana, N., Vuillemin, E., Delwail, V., Corbion, O., Vekhoff, A., Isnard, F., Ferrero, J. M., et al. (1992). [Seraspenid (AcetylSDKP): Eine klinische Studie der Phase I-II über einen hämatopoetischen Inhibitor, der vor der Toxizität der Monochemotherapie mit Aracyclin und Ifosfamid schützt]. Klinische Studie C R Acad Sci III, 315(13), 545-550. PMID: 1300237 https:// pubmed.ncbi.nlm.nih.gov/1300237/
- Cappelaere, P., Hecquet, B., Rolland, F., Meeus, L., Domenge, C., Krakowski, I., De Gislain, C., Chauvergne, J., Dufour-Esquerré, F., Carde, P. (1995). [Randomisierte Placebo-Studie zum Schutz des Knochenmarks mit Goralatid bei Patienten mit Plattenepithelkarzinomen der oberen Atemwege und des Magen-Darm-Trakts oder der Speiseröhre, die mit einer Kombination aus Carboplatin und Fluorouracil behandelt wurden.] Bull Cancer, 82(9), 732-737. PMID: 8535033 https://pubmed.ncbi.nlm.nih.gov/8535033/
- Nitta, K., Shi, S., Nagai, T., Kanasaki, M., Kitada, M., Srivastava, S. P., Haneda, M., Kanasaki, K. und Koya, D. (2016). Die orale Verabreichung von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin verbessert die Nierenerkrankung bei Mäusen mit Typ-1- und Typ-2-Diabetes durch ein therapeutisches Schema. BioMed-Forschung International, 2016 , 9172157 . https://doi.org/10.1155/2016/9172157 https:// pubmed.ncbi.nlm.nih.gov/27088094/
- Tan, H., Zhao, J., Wang, S., Zhang, L., Wang, H., Huang, B., Liang, Y., Yu, X. und Yang, N. (2012). Ac-SDKP mildert das Fortschreiten der Lupusnephritis bei MRL/lpr-Mäusen. Internationale Immunopharmakologie, 14(4), 401–409. https://doi.org/10.1016/j.intimp.2012.07.023https:// pubmed.ncbi.nlm.nih.gov/22922317/
- Maheshwari, M., Romero, C. A., Monu, S. R., Kumar, N., Liao, T. D., Peterson, E. L. und Carretero,
O. A. (2018). Nierenschützende Effekte von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin (Ac-SDKP) bei fettleibigen Ratten mit salzreicher Ernährung. Amerikanische Zeitschrift für Bluthochdruck, 31(8), 902-909. https://doi.org/ 10.1093/ajh/hpy052 https://pubmed.ncbi.nlm.nih.gov/29722788/
- Kamarehei, M., & Zahednasab, H. (2025). Neuroprotektive Wirkungen von Ac-SDKP-Peptid in SH-SY5Y-Zellen und einem Rattenmodell der Parkinson-Krankheit gegen 6-OHDA-induzierten oxidativen Stress und ER-Stress. Neuropeptide, 112, 102534. https://doi.org/10.1016/j.npep.2025.102534 https:// pubmed.ncbi.nlm.nih.gov/40544680/
- Hashemizadeh, S., Pourkhodadad, S., Hosseindoost, S., Pejman, S., Kamarehei, M., Badripour, A., Omidi, A., Pestehei, S. K., Seifalian, A. M. und Hadjighassem, M. (2022). Ac-SDKP-Peptid verbessert die funktionelle Erholung nach Rückenmarksverletzungen in einem präklinischen Modell. Neuropeptide, 92, 102228. https://doi.org/10.1016/j.npep.2022.102228 https://pubmed.ncbi.nlm.nih.gov/ 35101843/
- Zhang, Y., Zhang, Z. G., Chopp, M., Meng, Y., Zhang, L., Mahmood, A. und Xiong, Y. (2017). Behandlung von traumatischen Hirnverletzungen bei Ratten mit N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin. Zeitschrift für
Neurochirurgie, 126(3), 782-795. https://doi.org/10.3171/2016.3.JNS152699 http:// pubmed.ncbi.nlm.nih.gov/28245754/
- Pejman, S., Kamarehei, M., Riazi, G., Pooyan, S. und Balalaie, S. (2020). Ac-SDKP mildert das Fortschreiten der experimentellen Autoimmun-Enzephalomyelitis durch Hemmung von ER und oxidativem Stress im Hippocampus von C57BL/6-Mäusen. Bulletin für Hirnforschung, 154, 21–31. https://doi.org/10.1016/j.brainresbull.2019.09.014 https://pubmed.ncbi.nlm.nih.gov/31589901/
- Zhang, L., Chopp, M., Teng, H., Ding, G., Jiang, Q., Yang, X. P., Rhaleb, N. E. und Zhang, Z. G. (2014). Kombinationsbehandlung von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin und Gewebeplasminogenaktivator bietet starke Neuroprotektion bei Ratten nach Schlaganfall. Schlaganfall, 45(4), 1108-1114. https:// doi.org/10.1161/STROKEAHA.113.004399 https://pubmed.ncbi.nlm.nih.gov/24549864/
- Kim, D. H., Moon, E.-Y., Yi, J. H., Lee, H. E., Park, S. J., Ryu, Y.-K., Kim, H.-C., Lee, S. und Ryu, J.
H. (2015). Das Thymosin-β4-Peptidfragment fördert die Neurogenese im Hippocampus und erleichtert das räumliche Gedächtnis. Neurowissenschaften, 310, 51-62. https://doi.org/10.1016/j.neuroscience.2015.09.017 https://pubmed.ncbi.nlm.nih.gov/26363149/
- Wei, A., Zhao, F., Hao, A., Liu, B. und Liu, Z. (2022). N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin (AcSDKP) dämpft die Leberfibrose über die WTAP/m6A/Ptch1-Achse und den Hedgehog-Weg. Gen, 813, 146125. https://doi.org/10.1016/j.gene.2021.146125 https://pubmed.ncbi.nlm.nih.gov/34921949/
- Zhang, L., Xu, L. M., Chen, Y. W., Ni, Q. W., Zhou, M., Qu, C. Y. und Zhang, Y. (2012). Antifibrotische Wirkung von N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin auf die Leberfibrose, die durch die Ligatur der Gallenwege bei Ratten ausgelöst wird. Weltweite Zeitschrift für Gastroenterologie, 18(37), 5283-5288. https://doi.org/10.3748/wjg.v18.i37.5283 https://pubmed.ncbi.nlm.nih.gov/23066324/
- Chen, Y. W., Liu, B. W., Zhang, Y. J., Chen, Y. W., Dong, G. F., Ding, X. D., Xu, L. M., Pat, B.,
Fan, J. G. und Li, D. G. (2010). Die Aufrechterhaltung der Basalwerte von AcSDKP schwächt die durch Tetrachlorkohlenstoff induzierte Leberfibrose bei Ratten ab. Zeitschrift für Hepatologie, 53(3), 528-536. https://doi.org/10.1016/ j.jhep.2010.03.027 https://pubmed.ncbi.nlm.nih.gov/20646773/
- Ameri, Z., Shahabi, A., Farsinejad, A., Sattarzadeh Bardsiri, M., Javedani, H., Bagher, Z., Saraee, A. und Brouki Milan, P. (2025). Cellulose-basiertes adhäsives Hydrogel, das N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin-Peptid enthält, um die Wundheilung zu beschleunigen und Narbenbildung in einem In-vivo-Kaninchenohr-Narbenmodell zu verhindern. Internationale Zeitschrift für biologische Makromoleküle, 322(Pt 1), 144981. https:// doi.org/10.1016/j.ijbiomac.2025.144981 https://pubmed.ncbi.nlm.nih.gov/40480579/
- Fromes, Y., Liu, J. M., Kovacevic, M., Bignon, J. und Wdzieczak-Bakala, J. (2006). Acetyl-Serin-Asparaginyl-Lysin-Prolin-Tetrapeptid verbessert das Überleben von Hautlappen und beschleunigt die Wundheilung. Reparatur von Wunden und Regeneration, 14 (3), 306-312. https://doi.org/10.1111/ j.1743-6109.2006.00125.x https://pubmed.ncbi.nlm.nih.gov/16808809/
- Massé, A., Ramirez, L. H., Bindoula, G., Grillon, C., Wdzieczak-Bakala, J., Raddassi, K., Deschamps de Paillette, E., Mencia-Huerta, J. M., Koscielny, S., Potier, P., Sainteny, F. und Carde,
P. (1998). Acetyl-N-Ser-Asp-Lys-Pro-Tetrapeptid (Goralatide) schützt vor Doxorubicin-induzierter Toxizität: verbesserte Überlebensrate von Mäusen und Schutz von Stamm- und Vorläuferzellen des Knochenmarks. Blut, 91(2), 441-449. PMID: 9427696 https://pubmed.ncbi.nlm.nih.gov/9427696/
65. Ramasamy, V., Ntsekhe, M. und Sturrock, E. (2021). Untersuchung des antifibrotischen Potenzials von Peptiden mit einer N-Acetyl-Seryl-Aspartyl-Lysyl-Prolin-Sequenz. Klinische und experimentelle Pharmakologie und Physiologie, 48(11), 1558-1565. https://doi.org/10.1111/1440-1681.13565 https:// pubmed.ncbi.nlm.nih.gov/34347311/
- Leeanansaksiri, W., DeSimone, S. K., Huff, T., Hannappel, E. und Huff, T. F. (2004). Thymosin beta
4 und sein N-terminales Tetrapeptid, AcSDKP, hemmen die Proliferation und induzieren dysplastische, nicht-apoptotische Zellkerne und Mastzelldegranulation. Chemie und biologische Vielfalt, 1(7), 1091–1100. https://doi.org/10.1002/cbdv.200490081 https://pubmed.ncbi.nlm.nih.gov/17191900/